REVIEW

Research Progress on Metabolic Mechanism of Branched-Chain Amino Acids in Animals

  • CHEN Xinhang ,
  • LUAN Xinhong ,
  • YANG Qunhui , *
Expand
  • College of Animal Science and Veterinary Medicine, Shenyang Agricultural University, Shenyang 110866, China
* associate professor, E-mail:

Received date: 2026-02-03

  Online published: 2026-09-12

Abstract

Branched-chain amino acids (BCAAs), named for the methyl side-chain branches in their molecular structure, are classified as aliphatic neutral amino acids and constitute essential amino acids that animals must acquire through exogenous dietary intake. BCAAs not only serve as important raw materials for protein synthesis and energy metabolism substrates, but also act as significant nutritional signaling molecules to participate in the regulation of multiple cellular signaling pathways, playing a crucial role in animal growth and development, muscle deposition, and the maintenance of metabolic homeostasis. Recent studies have shown that BCAAs metabolic disorders are closely related to metabolic diseases. Therefore, systematically sorting out the mechanisms of BCAAs absorption, tissue transport, and catabolic regulation in animals is of great significance for improving BCAAs metabolic balance and enhancing animal production performance through precise nutritional regulation. This article systematically reviews the recent advances in BCAAs research from four aspects: intestinal absorption, tissue transport, catabolic pathways, and the relationship between BCAAs metabolic disorders and metabolic diseases.

Cite this article

CHEN Xinhang , LUAN Xinhong , YANG Qunhui . Research Progress on Metabolic Mechanism of Branched-Chain Amino Acids in Animals[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 6424 -6433 . DOI: 10.12418/CJAN2026.514

支链氨基酸(BCAAs)是指分子结构中含有甲基侧链分支的脂肪族中性氨基酸,主要包括亮氨酸(Leu)、异亮氨酸(Ile)和缬氨酸(Val),三者均为动物体内不能自身合成,必须从饲粮中获取的必需氨基酸[1]。BCAAs在动物生长发育过程中有着不可替代的作用:一方面,BCAAs作为机体蛋白质合成的重要底物,对肌肉生长和机体氮平衡维持至关重要;另一方面,BCAAs及其代谢中间产物可作为信号分子参与调控多条信号通路,维持机体的代谢稳态。
大量研究表明,BCAAs的摄入过量或其代谢紊乱与多种代谢性疾病相关,如人类和动物的肥胖、2型糖尿病[2]及代谢相关脂肪肝病(MASLD)[3]等,疾病状态下常伴随血浆BCAAs水平升高及代谢通路关键酶活性异常。因此,深入理解BCAAs在动物体内的代谢机制,不仅具有重要的基础理论意义,也为通过营养调控改善动物生长性能和促进健康提供了新思路。本文从BCAAs在动物体内的吸收、转运、分解代谢途径、BCAAs代谢紊乱与代谢性疾病关系4个方面综述近年来的研究进展。

1 BCAAs的吸收与转运

BCAAs进入动物消化道后,首先需经肠道吸收进入血液循环,随后被转运至骨骼肌、肝脏、肾脏等组织器官中进行代谢利用。肠道吸收效率和组织转运能力直接决定BCAAs的生物利用度,BCAAs的吸收与转运依赖于细胞膜上的氨基酸转运载体,并受到肠道屏障功能、肠道菌群及饲粮组成等多种因素的影响。反刍动物比较特殊,饲粮中的蛋白质先经过瘤胃内微生物预处理降解为氨、氨基酸和肽后,一部分被用于瘤胃内微生物蛋白合成;因此反刍动物吸收的BCAAs中有30%~50%来自微生物蛋白,其余来自过瘤胃蛋白[4]

1.1 肠道的吸收

动物从饲粮中摄入的蛋白质在消化道内经胃蛋白酶、胰蛋白酶、糜蛋白酶等蛋白酶以及氨基肽酶、羧基肽酶等多种肽酶的协同作用,最终被分解为游离氨基酸(含BCAAs)和小肽(主要为二肽、三肽),在小肠黏膜上皮细胞被吸收,这一过程主要由小肠刷状缘膜上的氨基酸转运载体和肽转运蛋白介导[5],且在转运过程中受到多种因素的影响。

1.1.1 以氨基酸的形式被转运

参与BCAAs肠道吸收转运的氨基酸载体包括L型氨基酸转运系统(System L)、y+L型氨基酸转运系统(System y+L)、B0型氨基酸转运系统(System B0)。
System L属于Na+非依赖性中性氨基酸转运系统,由轻链和重链组成异二聚体,轻链包括L型氨基酸转运体1[LAT1,编码基因为溶质载体家族7成员5(SLC7A5)]和L型氨基酸转运体2[LAT2,编码基因为溶质载体家族7成员8(SLC7A8)],重链为4F2重链[4F2hc,编码基因为溶质载体家族3成员2(SLC3A2)],该系统是介导BCAAs从肠道进入血液并进一步转运至骨骼肌的重要系统之一[6]。System L对BCAAs、苯丙氨酸、色氨酸等大中性氨基酸具有较高亲和力。在小肠黏膜上皮细胞中,LAT1主要表达于刷状缘膜,负责将肠腔中的BCAAs转运进入细胞;LAT2主要表达于基底侧膜,负责将细胞内的BCAAs转运至血液[7-8]。研究表明,仔猪断奶应激状态下,肠道中LAT1表达量在断奶第10天显著高于第3天,提示断奶应激可通过调节转运载体表达影响肠道对BCAAs的吸收效率[9-10]。System y+L可同时转运碱性氨基酸和中性氨基酸,其转运过程依赖于细胞膜内外的H+浓度梯度,与System L协同作用,共同促进BCAAs在肠道中的吸收[11]
System B0中的B0型中性氨基酸转运体1(B0AT1)由溶质载体家族6成员19(SLC6A19)基因编码,是一种Na+依赖性中性氨基酸转运蛋白,主要表达于小肠黏膜上皮细胞和近端肾小管上皮细胞,SLC6A19基因敲除小鼠血浆中BCAAs水平显著降低,并伴随体重减轻、生长迟缓,表明SLC6A19在BCAAs肠道吸收中具有重要作用[12-13]

1.1.2 以小肽的形式被转运吸收

肠道中的BCAAs还能以小肽形式通过肽转运蛋白1(PepT1)转运吸收。饲粮中蛋白质降解产生的二肽或三肽可通过肠上皮细胞刷状缘膜上的PepT1进行转运[14]。PepT1是一种H+依赖性肽转运蛋白,对二肽和三肽具有高度特异性,可将这些肽转运进入细胞,随后在细胞内被肽酶水解为游离氨基酸,再释放到血液循环中[15-16]。研究证实,PepT1在pH 4.5~6.5范围内对二肽和三肽的转运效率较高,且对N端为疏水性残基的肽具有更高亲和力,提示PepT1在BCAAs吸收中具有重要互补作用[17]

1.1.3 影响因素

肠道对BCAAs的吸收效率受到饲粮组成、肠道微生物、动物生理阶段等多种因素的影响。肉鸡饲粮BCAAs总量适宜范围为3.93%~4.82%,低于3.04%会导致机体蛋白质合成原料不足,高于5.71%则引发采食量下降与肠道损伤[18]。在一定范围内补充Leu(1.37%~2.20%)可显著增加肉鸡空肠和回肠的绒毛高度,扩大吸收面积,从而提高BCAAs吸收效率,然而,当饲粮中Leu与Val、Ile配比失衡时,反而会抑制肠道对BCAAs的吸收[19-20]。对攸县麻鸭的研究表明,当饲粮中Leu∶Val∶Ile=1∶0.9∶0.8(质量比)时,肠道的微生物多样性最高,肠道屏障功能和BCAAs吸收效率均得到改善,进而提升生长性能[21]。研究发现,肠道中普雷沃氏菌可以提高小鼠体内的BCAAs水平[22];副拟杆菌能够增强BCAAs分解,降低血液中Leu水平,使Rag鸟苷三磷酸酶(Rag GTPases)无法被激活,最终导致哺乳动物雷帕霉素靶蛋白(mTOR)通路被抑制[23]。类似地,Hai等[24]研究发现,肌细胞生长抑制素敲除牛的瘤胃中普雷沃氏菌和副拟杆菌丰度显著增加,使得瘤胃内BCAAs生物合成增强并促进BCAAs的分解代谢。

1.2 组织转运

BCAAs经肠道吸收进入血液循环后,需通过组织细胞膜上的氨基酸转运载体进入细胞进行代谢。不同组织器官由于功能差异,其转运载体的表达谱和转运效率存在显著不同,从而导致BCAAs在各组织器官中的代谢强度和代谢流向存在差异。

1.2.1 骨骼肌中的转运

骨骼肌是BCAAs代谢的主要场所,其对BCAAs的摄取和代谢能力较强,约占动物机体BCAAs总代谢量的59%[25]。骨骼肌细胞膜上参与BCAAs转运的载体有LAT1、LAT2、钠耦合中性氨基酸转运体2(SNAT2)。LAT1在骨骼肌中具有较高的表达水平,对BCAAs尤其是Leu具有高亲和力,是介导BCAAs进入肌细胞的关键转运体[7]。研究证实,人类经过抗阻训练后骨骼肌中LAT1的表达上调,BCAAs的摄取量增加,Leu可抑制Sestrin2的抑制功能,也可激活亮氨酰-tRNA合成酶(LRS),这2条通路协同促进Rag GTPases活化,继而激活哺乳动物雷帕霉素靶蛋白复合物 1(mTORC1)信号通路,促进骨骼肌蛋白质合成和能量代谢,但是LAT1过表达也可能导致BCAAs过度摄取和分解,反而不利于蛋白质沉积[26-27],表明BCAAs转运与代谢之间存在精细平衡。
SNAT2由溶质载体家族38成员2(SLC38A2)基因编码,属于A型氨基酸转运系统(System A),是一种Na+依赖性中性氨基酸转运蛋白,可转运丙氨酸、谷氨酰胺等小中性氨基酸,其活性依赖于细胞内外Na+浓度梯度;SNAT2通过摄取谷氨酰胺等建立胞内小型和中性氨基酸浓度梯度,为LAT1/LAT2的交换转运提供驱动力,进而间接促进BCAAs进入骨骼肌细胞,同时上调mTORC1通路抑制BCAAs分解代谢,最终促进骨骼肌蛋白质合成[28]。研究显示,在热应激状态下,肉鸡采食量下降,同时小肠和骨骼肌中LAT1、SNAT2表达降低,导致BCAAs摄入量减少,进而影响肌肉蛋白质合成的生长发育[29-30]

1.2.2 肝脏中的转运

肝脏是BCAAs代谢的重要器官,主要负责BCAAs的氧化分解和代谢调控。肝细胞膜上表达的BCAAs转运载体包括LAT2、B0AT1等。LAT2在肝细胞膜的表达丰富,可转运多种中性氨基酸,是BCAAs及支链α-酮酸(BCKAs)进入肝细胞的重要途径[31]
与骨骼肌不同,肝细胞中支链氨基酸转氨酶(BCAT)活性相对较低,而支链α-酮酸脱氢酶复合体(BCKDC)活性较高,因此,BCAAs往往先在肝外组织(如骨骼肌)中转氨生成BCKAs,再被转运至肝脏进一步氧化分解,为机体的生理活动提供能量或参与其他代谢过程[25,32]

1.2.3 肾脏中的转运

肾脏在BCAAs的重吸收和排泄调节中发挥重要作用。肾脏近曲小管的刷状缘膜和基底侧膜上表达多种氨基酸转运载体,如LAT2、y+LAT1[由溶质载体家族7成员7(SLC7A7)基因编码]、y+LAT2[由溶质载体家族7成员6(SLC7A6)基因编码]及B0AT1等,可高效重吸收原尿中的BCAAs,从而减少其随尿液流失[12,33]。在人类和啮齿类动物中,SLC6A19基因的突变可导致Hartnup综合征,其特征为氨基酸尿及相关代谢异常,已有研究表明,针对SLC6A19基因的高亲和力抑制剂具有良好生物利用度,可在体内达到足以抑制肾脏重吸收的血浆浓度,表明其可能为治疗Hartnup综合征提供新策略[33-34]
动物体内的BCAAs转运载体的编码基因、组织分布和转运机制见表1
表1 动物体内的BCAAs转运载体

Table 1 Transporters for BCAAs in animals

转运系统
Transporter
systems
蛋白质名称
Protein name
编码基因
Coding genes
组织分布
Tissue
distribution
转运机制
Transport
mechanism


L型氨基酸转运系统
System L
LAT1 SLC7A5 骨骼肌、脑组织、
肿瘤细胞等
与中性氨基酸交换转运[35]
LAT2 SLC7A8 小肠、肾脏、肝脏、骨骼肌等 与中性氨基酸交换转运[36]


y+L型氨基酸转运系统
System y+L
y+LAT1 SLC7A7 小肠、肾脏、脾脏等 与Na+协同转运中性氨基酸,
同时与阳离子氨基酸交换[37]
y+LAT2 SLC7A6 小肠、心脏、肾脏、脑组织等 与Na+协同转运中性氨基酸,
同时与阳离子氨基酸交换[38]


ASC型氨基酸转运系统
System ASC
ASCT1 SLC1A4 脑组织、骨骼肌、
肾脏、脾脏等
调节细胞内氨基酸池浓度,间接
影响支链氨基酸(BCAAs)摄取[39]
ASCT2 SLC1A5 小肠、骨骼肌、
肿瘤细胞、胎盘等
通过谷氨酰胺与
BCAAs反向交换[40]
A型氨基酸转运系统
System A
SNAT2 SLC38A2 小肠、肾脏、
骨骼肌、肝脏等
与Na+协同转运小中性氨基酸,
间接影响BCAAs转运[41]

B0型氨基酸转运系统
System B0
B0AT1 SLC6A19 小肠、肾脏等 与Na+协同转运中性氨基酸[34]
B0AT2 SLC6A15 中枢神经等 与Na+协同转运BCAAs[42]

LAT1:L型氨基酸转运体1 L-type amino acid transporter 1;LAT2:L型氨基酸转运体2 L-type amino acid transporter 2;y+LAT1:y+L型氨基酸转运体1 y+ L-type amino acid transporter 1;y+LAT2:y+L型氨基酸转运体2 y+ L-type amino acid transporter 2;ASCT1:丙氨酸-丝氨酸-半胱氨酸转运体1 alanine-serine-cysteine transporter 1;ASCT2:丙氨酸-丝氨酸-半胱氨酸转运体2 alanine-serine-cysteine transporter 2;SNAT2:钠耦合中性氨基酸转运体2 sodium-coupled neutral amino acid transporter 2;B0AT1:B0型中性氨基酸转运体1 B(0)-type neutral amino acid transporter 1;B0AT2:B0型系统中性氨基酸转运体2 B(0)-type neutral amino acid transporter 2;SLC7A5:溶质载体家族7成员5 solute carrier family 7 member 5;SLC7A8:溶质载体家族7成员8 solute carrier family 7 member 8;SLC7A7:溶质载体家族7成员7 solute carrier family 7 member 7;SLC7A6:溶质载体家族7成员6 solute carrier family 7 member 6;SLC1A4:溶质载体家族1成员4 solute carrier family 1 member 4;SLC1A5:溶质载体家族1成员5 solute carrier family 1 member 5;SLC38A2:溶质载体家族38成员2 solute carrier family 38 member 2;SLC6A19:溶质载体家族6成员19 solute carrier family 6 member 19;SLC6A15:溶质载体家族6成员15 solute carrier family 6 member 15。

2 BCAAs分解代谢途径

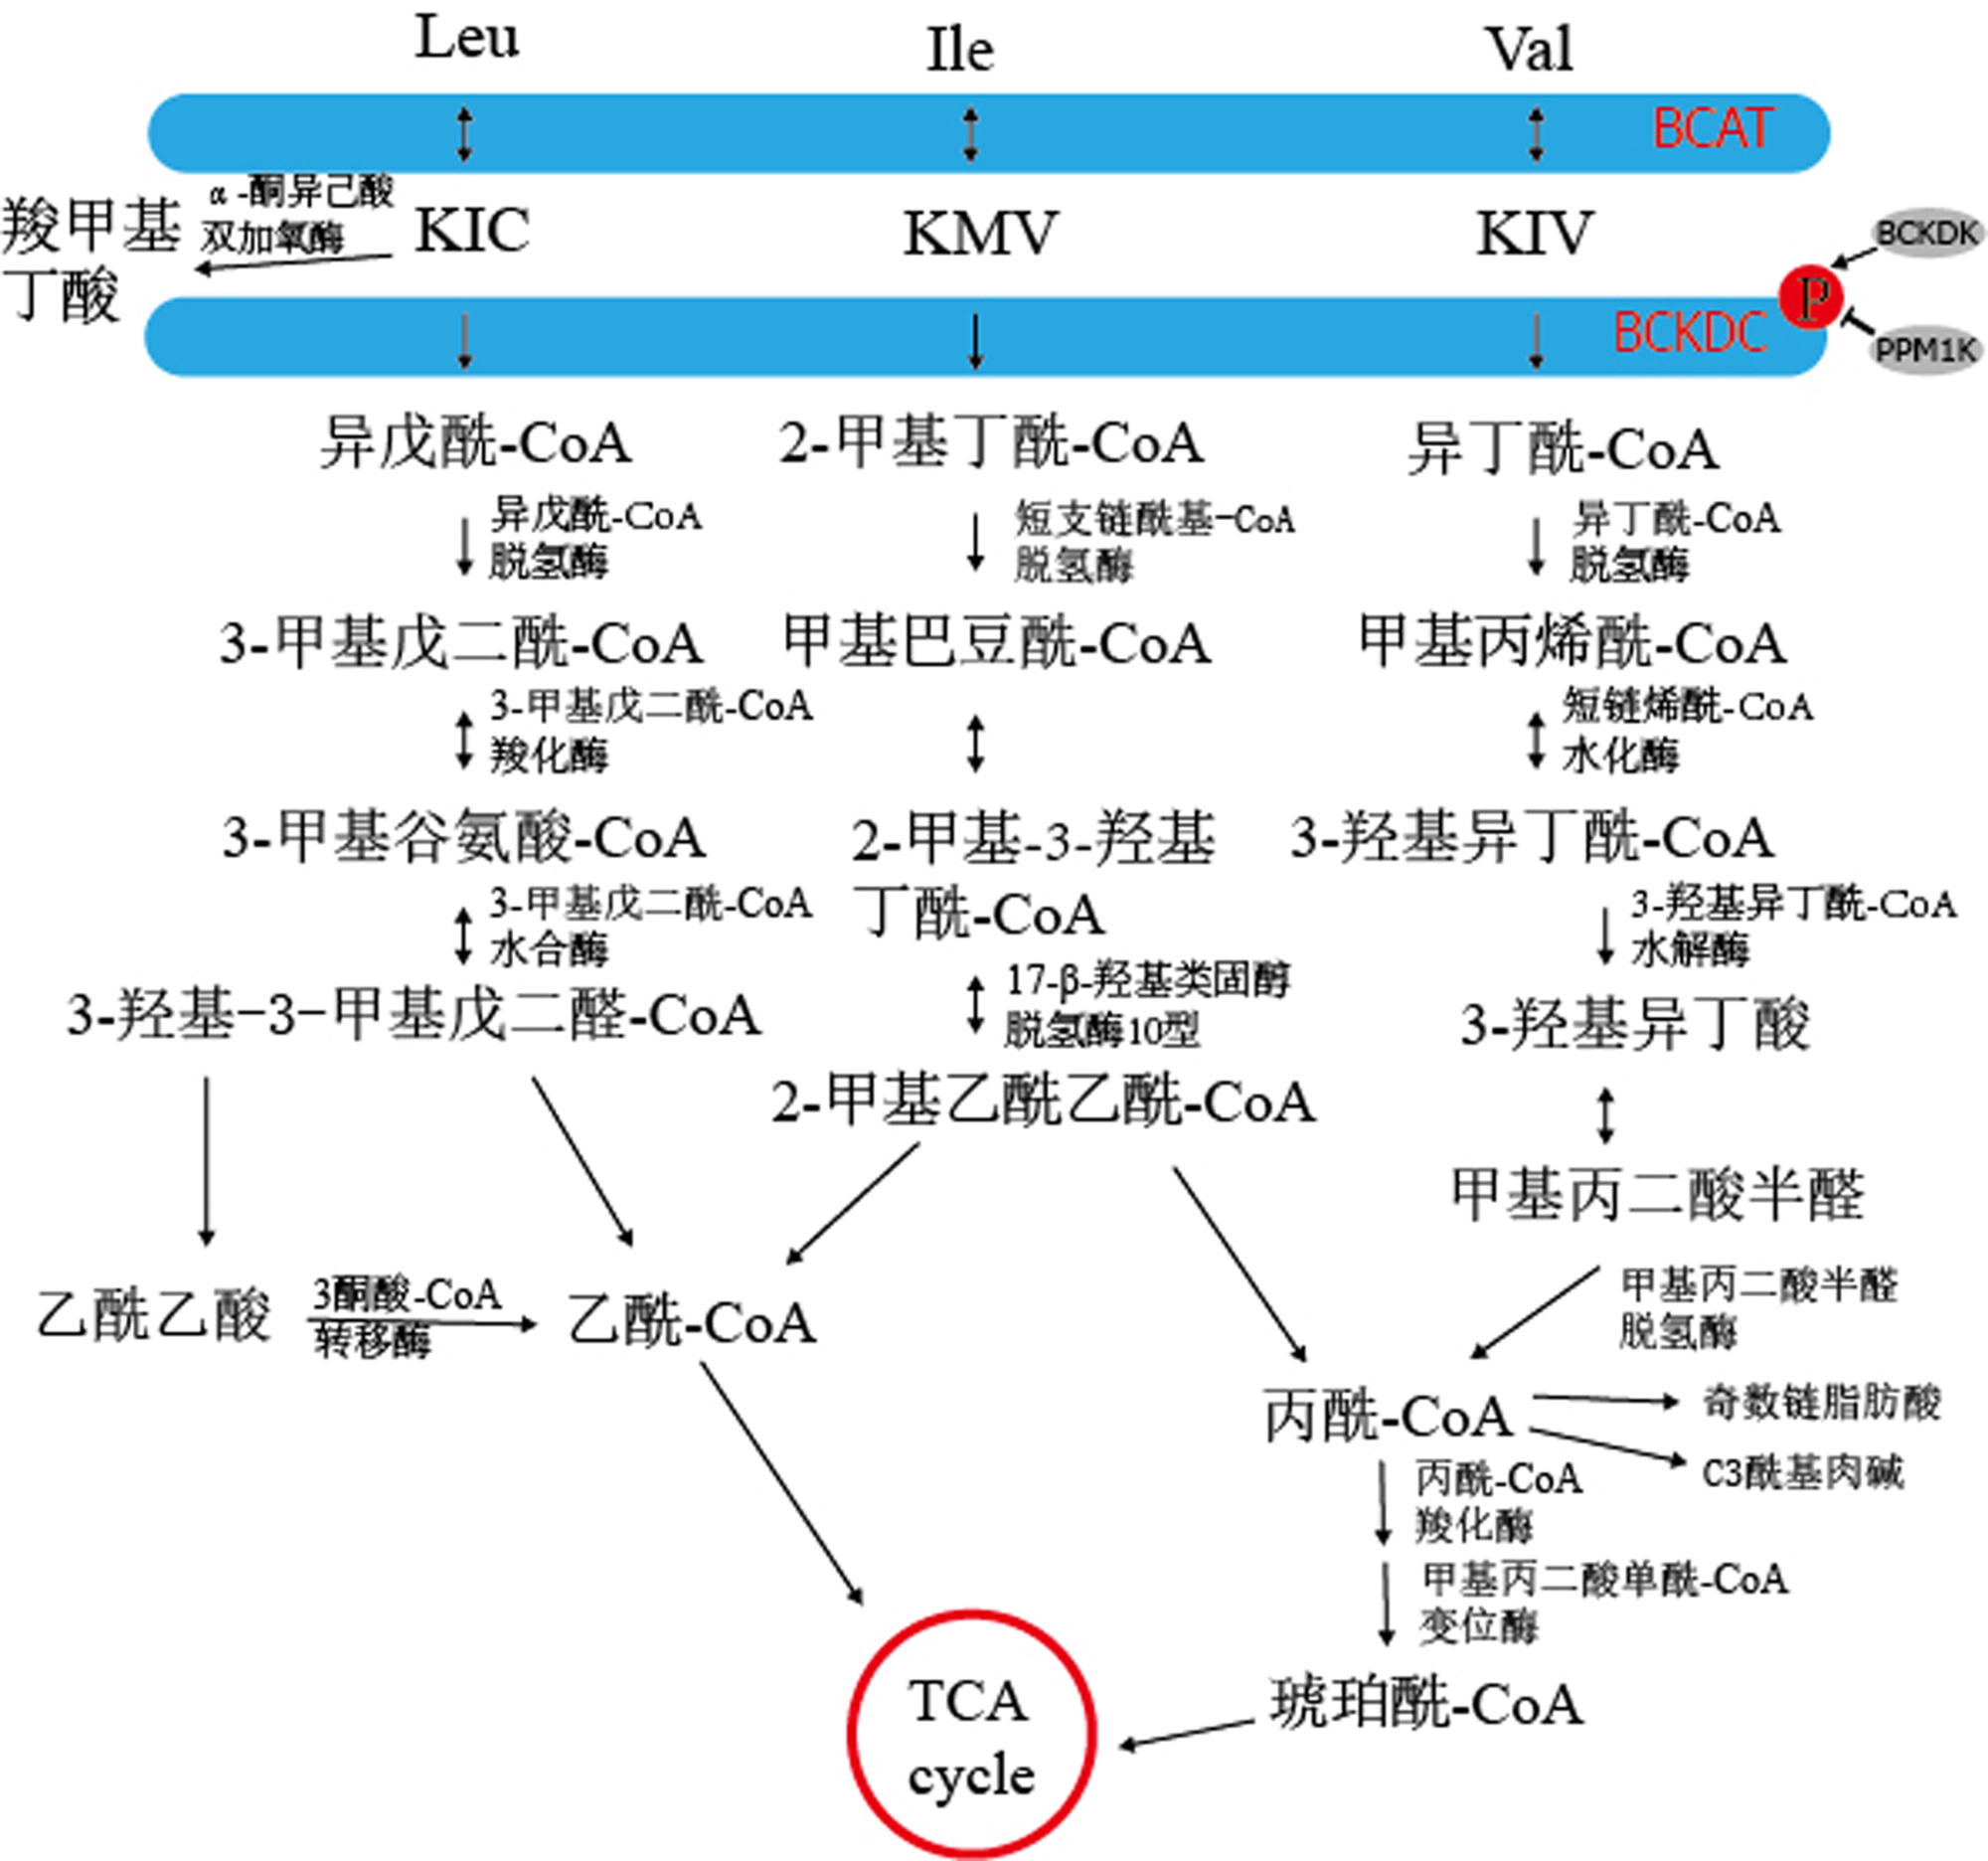
BCAAs进入骨骼肌、肝脏等组织后,经过转氨基作用和氧化脱羧作用进行分解代谢,最终的代谢产物可参与三羧酸循环(TCA循环)、糖异生或脂肪合成过程,为机体提供能量或作为生物大分子合成的底物。单胃动物肝脏内BCAT活性较低,BCAAs的清除率约为9%;反刍动物肝脏中BCAT和BCKDC活性极低,肝脏BCAAs清除率不足5%,BCAAs主要在骨骼肌、乳腺等组织进行分解代谢[4]。因Leu、Ile、Val主链碳骨架结构高度相似,所以它们的代谢途径基本相似,但由于侧链结构的差异,它们的中间产物和最终去向有所不同,具体过程如图1所示。
图1 BCAAs分解代谢示意图

Leu:亮氨酸 leucine;Ile:异亮氨酸 iso-leucine;Val:缬氨酸 valine;KIC:α-酮异己酸 α-ketoisocaproic acid;KMV:2-酮-3-甲基戊酸 3-methyl-2-oxopentanoic acid;KIV:α-酮异戊酸 α-ketoisovaleric acid;BCAT:支链氨基酸转氨酶 branched-chain amino acid transaminase;BCKDC:支链α-酮酸脱氢酶复合体branched-chain α-ketoacid dehydrogenase complex;BCKDK:支链α-酮酸脱氢酶激酶 branched-chain α-keto acid dehydrogenase kinase;PPM1K:Mg2+/Mn2+依赖性蛋白磷酸酶1K protein phosphatase, Mg2+/Mn2+ dependent 1K;CoA:辅酶A coenzyme A;TCA cycle:三羧酸循环 tricarboxylic acid cycle。

Fig.1 Schematic diagram of decomposition of BCAAs[43]

2.1 转氨基作用

转氨基作用是BCAAs代谢的第1步,主要在细胞质内进行,由BCAT催化完成。BCAT作为BCAAs代谢过程的关键酶,分为胞质型(BCAT1)和线粒体型(BCAT2),二者在组织分布和功能上存在差异:BCAT1主要分布于脑、卵巢和某些增殖细胞中,参与细胞增殖和肿瘤代谢重编辑,而BCAT2主要分布于骨骼肌、心肌等代谢活跃器官,更侧重于能量代谢和BCAAs氧化分解[44]。在BCAT的催化下,BCAAs将氨基转移给α-酮戊二酸,生成相应的BCKAs和谷氨酸,即Leu转化为α-酮异己酸(KIC),Ile转化为2-酮-3-甲基戊酸(KMV),Val转化为α-酮异戊酸(KIV)[45]
BCAT的表达量与活性直接影响BCAAs转氨基的效率,进而影响机体蛋白质合成与能量代谢的平衡。Portero等[46]研究发现,BCAT2基因突变的小鼠的BCAAs转氨过程受阻,BCKAs生成量减少,导致血液和尿液中BCAAs大量蓄积,慢性高BCAAs会激活心肌细胞mTOR通路,使总mTOR及磷酸化mTOR(Ser2448)表达上调,进而诱发氧化应激与钙稳态失衡,导致心肌细胞动作电位时程延长、复极异质性增加,还会引发房室传导和QT间期延长等电生理异常,进而引发心律失常。在肥胖状态下,BCAT2活性降低,BCAAs在组织中蓄积,可诱导M1型巨噬细胞极化并增强炎症反应,抑制白色脂肪褐变,促进脂肪纤维化,最终加剧胰岛素抵抗[47]。相反,BCAT活性过高则可能导致BCAAs过度分解,造成机体蛋白质合成原料不足。例如,BCAT1过表达可促进BCAAs分解及BCKAs蓄积,能够激活磷脂酰肌醇3激酶(PI3K)-蛋白激酶B(AKT)-mTOR信号通路与核因子-κB(NF-κB)炎症通路,抑制细胞自噬并促进细胞凋亡,加速骨关节炎的软骨退化[48]
此外,维生素B6的活化形式5'-磷酸吡哆醛(PLP)是BCAT的重要辅酶,在部分胃切除术的大鼠模型中,补充维生素B6可上调BCAT2的mRNA表达,同时降低BCKDC活性中心E1α亚基(BCKDHA)表达,提示维生素B6可促进BCAAs转氨过程[49];该研究还发现,在BCAAs中添加维生素B6可改善氮平衡、促进肌肉蛋白质合成并保护肠道黏膜[49],表明维生素B6在BCAAs代谢调控中具有重要作用。

2.2 氧化脱羧作用

BCKAs(KIC、KMV、KIV)在线粒体中进行不可逆的氧化脱羧反应,生成相应的酰基辅酶A(CoA)即KIC生成异戊酰-CoA,KMV生成异丁酰-CoA,KIV生成α-甲基丁酰-CoA[43]。这一步反应是BCAAs代谢的限速过程,由BCKDC催化完成。
BCKDC是BCAAs氧化分解的核心限速酶,由E1(支链α-酮酸脱氢酶)、E2(二氢硫辛酰转乙酰基酶)和E3(二氢硫辛酰脱氢酶)3个亚基组成,对BCKDHA活性位点Ser293进行磷酸化和去磷酸化的精准调控,能够改变BCKAs的通量[44,50]。支链α-酮酸脱氢酶激酶(BCKDK)可特异性磷酸化BCKDHA,从而抑制BCKDC活性;而定位于线粒体基质的,Mg2+/Mn2+依赖性蛋白磷酸酶蛋白磷酸酶2Cm[PP2Cm,由Mg2+/Mn2+依赖性蛋白磷酸酶1K(PPM1K)基因编码]则可使BCKDHA去磷酸化,激活BCKDC[51-52]BCKDKPPM1K之间的平衡直接决定BCKDC活性,进而影响BCAAs分解代谢速率。研究证实,全身敲除BCKDK基因的小鼠血浆BCAAs水平下降超过50%[53]
近年来还有研究发现,多种癌症(如肝癌、胃癌)可通过抑制BCKDC活性,阻断BCAAs氧化分解,使BCAAs在肿瘤组织中蓄积,持续激活PI3K-AKT-mTOR信号通路,促进肿瘤细胞增殖并抑制其凋亡[54]。White等[55]通过试验证实,与正常大鼠相比,肥胖大鼠的骨骼肌中BCKDC活性升高,而肝脏中BCKDC活性降低;其他研究也发现,在多种糖尿病模型中,肝脏BCKDC的磷酸化水平升高、活性降低[56-57]。由此可见,肥胖、糖尿病状态下BCKDC活性呈显著的组织特异性差异,骨骼肌与肝脏的BCAAs分解代谢调控失衡,是机体BCAAs代谢紊乱的重要特征,这既反映了不同组织BCAAs代谢的病理适应性改变,也印证了BCAAs代谢异常是代谢性疾病发生发展的重要环节,为相关机制研究和靶点探索提供了方向。

2.3 BCAAs代谢的最终去向

BCAAs经转氨基和氧化脱羧生成的酰基CoA(异戊酰-CoA、异丁酰-CoA、α-甲基丁酰-CoA)可进一步代谢,最终可转化为乙酰-CoA、琥珀酰-CoA等关键代谢中间产物,参与机体TCA循环、糖异生和脂肪合成等过程,为机体提供能量或用于生物大分子合成,少量未被利用的BCAAs及其代谢产物可通过尿液或粪便排出体外。
Leu的代谢产物异戊酰-CoA最终转化为乙酰-CoA和乙酰乙酸[58]。乙酰-CoA可以直接进入TCA循环,彻底氧化分解为二氧化碳和水,释放大量能量;也能够作为脂肪合成的原料,在脂肪组织和肝脏中促进甘油三酯生成与沉积[59-61]。乙酰乙酸可分解为乙酰-CoA,参与上述反应过程;其也是机体重要的酮体之一,可被骨骼肌、大脑等组织利用,在能量需求较高或葡萄糖供应不足时发挥重要作用[62]
Ile的代谢产物α-甲基丁酰-CoA经分解代谢生成乙酰-CoA和丙酰-CoA;Val的代谢产物异丁酰-CoA则主要转化为丙酰-CoA[59,61]。丙酰-CoA在丙酰-CoA羧化酶和甲基丙二酰-CoA变位酶的作用下生成琥珀酰-CoA,进入TCA循环参与机体的能量代谢[59]。此外,Ile和Val的代谢产物还能参与γ-氨基丁酸等神经递质[63]和丙氨酸等非必需氨基酸[64]的合成,在神经系统功能调节和维持机体氨基酸平衡中发挥重要作用。

2.4 BCAAs代谢紊乱与代谢性疾病

BCAAs代谢紊乱直接参与肥胖、糖尿病肾病、肿瘤等疾病的病理进程。

2.4.1 BCAAs代谢紊乱与糖尿病肾病

肾小球足细胞中BCAAs分解代谢缺陷是糖尿病肾病发生的重要驱动因素,Zhao等[2]研究揭示,足细胞内BCAAs代谢障碍可直接诱导丙酮酸激酶M2异构体(PKM2)解聚并丧失活性,能够抑制细胞内葡萄糖的氧化磷酸化过程,使糖代谢途径发生重编程,转向丝氨酸合成与叶酸代谢;解聚后的PKM2可与DDIT3共转运进入细胞核,二者作为共转录因子协同促进DDIT3下游谷胱甘肽特异性γ-谷氨酰环转移酶1(Chac1)和Tribbles同源蛋白3(Trib3)基因的表达,直接触发足细胞凋亡,最终引发肾小球病理损伤、蛋白尿等典型糖尿病肾病表型,该研究将BCAAs代谢异常与糖尿病肾病的核心发病机制直接关联,明确了其在糖尿病肾病起始与进展中的关键作用。

2.4.2 BCAAs代谢紊乱与胰岛素抵抗

BCAAs代谢异常与胰岛素抵抗的分子机制紧密围绕代谢稳态失衡与信号通路紊乱展开。BCAAs代谢关键酶活性异常或表达缺陷,导致BCAAs及其代谢产物(如KIC)在体内蓄积,一方面通过直接激活mTORC1信号通路,促进下游S6K1磷酸化,进而诱导胰岛素受体底物1(insulin receptor substrate 1,IRS1)丝氨酸位点磷酸化,抑制PI3K-Akt信号传导,削弱胰岛素介导的葡萄糖转运与糖原合成;另一方面,BCAT2缺失会阻断KIC向Leu的可逆转氨反应,间接加剧胰岛素敏感性下降[65-66]。此外,BCAAs代谢缺陷还会通过干扰AMPK通路激活、抑制转录因子Kruppel样因子15(KLF15)表达,以及影响脂肪组织棕色化与线粒体功能,进一步破坏糖和脂代谢平衡,最终形成胰岛素抵抗的恶性循环,这一机制在肥胖、糖尿病等代谢性疾病中均得到验证[65]

2.4.3 BCAAs代谢紊乱与肿瘤代谢

BCAAs代谢紊乱还参与肿瘤细胞的代谢重编程过程,打破了对BCAAs仅作为营养物质的传统认知。Demetriadou等[67]的研究发现,Ile是胰腺导管腺癌(PDA)细胞内丙酰-CoA的主要合成来源,且BCAAs分解代谢关键酶(包括BCKDC)可发生核定位,通过调控组蛋白丙酰化(Kpr)修饰,介导肿瘤相关基因的转录调控,这一核内BCAAs代谢通路的发现,揭示了BCAAs代谢在肿瘤表观遗传调控中的新功能,也为解析氨基酸代谢与肿瘤发生的关联提供了全新视角。

3 小结

综上可知,BCAAs的吸收转运依赖System L等载体转运系统与PepT1肽转运系统,分解代谢以BCAT介导的转氨基作用和BCKDC调控的氧化脱羧作用为核心,最终产物参与机体能量代谢与生理调控,其代谢平衡与动物生长性能、肠道健康及代谢疾病密切相关。现有研究虽明确了核心机制与应用基础,但不同生理阶段的代谢特异性、与肠道菌群的互作分子机制等仍待理清,精准配比标准亦缺乏普适性。未来应建立不同生长阶段、生长目标下的畜禽BCAAs动态需要量模型,为保障动物健康、提升养殖效益提供更坚实的理论支撑与实践指导。
[1]
CHALVON-DEMERSAY T, LUISE D, et al. Functional amino acids in pigs and chickens:implication for gut health[J]. Frontiers in Veterinary Science, 2021, 8:663727.

DOI

[2]
ZHAO H S, SUN D, WANG S, et al. Branched-chain amino acids contribute to diabetic kidney disease progression via PKM2-mediated podocyte metabolic reprogramming and apoptosis[J]. Nature Communications, 2025, 16(1):7846.

DOI

[3]
JIAN H F, XU Q Q, WANG X M, et al. Amino acid and fatty acid metabolism disorders trigger oxidative stress and inflammatory response in excessive dietary valine-induced NAFLD of laying hens[J]. Frontiers in Nutrition, 2022, 9:849767.

DOI

[4]
XU S Y, ZHAO G Y, HANIGAN M D, et al. Branched-chain amino acids in muscle growth:mechanisms,physiological functions,and applications[J]. Journal of Animal Science and Biotechnology, 2025, 16(1):164.

DOI

[5]
FAIRWEATHER S J, BRÖER A, O’MARA M L, et al. Intestinal peptidases form functional complexes with the neutral amino acid transporter B0AT1[J]. Biochemical Journal, 2012, 446(1):135-148.

DOI

[6]
YANG H N, SHI T H, DONG J, et al. Structural insights into the substrate transport mechanism of the amino acid transporter complex[J]. Journal of Biological Chemistry, 2025, 301(9):110569.

DOI

[7]
KHUNWEERAPHONG N, NAGAMORI S, WIRIYASERMKUL P, et al. Establishment of stable cell lines with high expression of heterodimers of human 4F2hc and human amino acid transporter LAT1 or LAT2 and delineation of their differential interaction with α-alkyl moieties[J]. Journal of Pharmacological Sciences, 2012, 119(4):368-380.

PMID

[8]
BAO L Y, FU L Z, SU Y J, et al. Amino acid transporter SLC7A5 regulates cell proliferation and secretary cell differentiation and distribution in the mouse intestine[J]. International Journal of Molecular Sciences, 2024, 20(6):2187-2201.

DOI

[9]
李妍娇, 余淼, 李梦晗, 等. 早期断奶对五指山猪仔猪肠道免疫指标及氨基酸转运载体基因表达的影响[J]. 华北农学报, 2024, 39(增刊1):320-328.

LI Y J, YU M, LI M H, et al. The influence of early weaning on intestinal immunity and the expression of amino acid transporter in Wuzhishan piglets[J]. Acta Agriculturae Boreali-Sinica, 2024,39 (Suppl.1):320-328. (in Chinese)

[10]
MOESER A J, POHL C S, RAJPUT M. Weaning stress and gastrointestinal barrier development:implications for lifelong gut health in pigs[J]. Animal Nutrition, 2017, 3(4):313-321.

DOI

[11]
SEGAWA H, FUKASAWA Y, MIYAMOTO K, et al. Identification and functional characterization of a Na+-independent neutral amino acid transporter with broad substrate selectivity[J]. Journal of Biological Chemistry, 1999, 274(28):19745-19751.

DOI

[12]
JAVED K, BRÖER S. Mice lacking the intestinal and renal neutral amino acid transporter SLC6A19 demonstrate the relationship between dietary protein intake and amino acid malabsorption[J]. Nutrients, 2019, 11(9):2024.

DOI

[13]
BRÖER A, JUELICH T, VANSLAMBROUCK J M, et al. Impaired nutrient signaling and body weight control in a Na+ neutral amino acid cotransporter (Slc6a19)-deficient mouse[J]. Journal of Biological Chemistry, 2011, 286(30):26638-26651.

DOI

[14]
ZHAI C, HU L B, YAN Y H, et al. Investigating dipeptide absorption mechanisms:integrating molecular dynamics and experimental verification based on PepT1 cell model[J]. Food Bioscience, 2025, 72:107442.

DOI

[15]
STAUFFER M, JECKELMANN J M, ILGÜ H, et al. Peptide transporter structure reveals binding and action mechanism of a potent PEPT1 and PEPT2 inhibitor[J]. Communications Chemistry, 2022, 5(1):23.

DOI PMID

[16]
KILLER M, WALD J, PIEPRZYK J, et al. Structural snapshots of human PepT1 and PepT2 reveal mechanistic insights into substrate and drug transport across epithelial membranes[J]. Science Advances, 2021, 7(45):eabk3259.

[17]
XU G, ZHAO W Z, YU Z P. Intestinal epithelial transport of bioactive di/tripeptides through PepT1:molecular mechanism and influencing factors[J]. Food Chemistry, 2025, 496(Pt 3):146851.

DOI

[18]
常银莲, 刘国华, 常文环, 等. 支链氨基酸对肉鸡生长性能及肠道发育的影响[J]. 动物营养学报, 2016, 28(1):79-91.

DOI

CHANG Y L, LIU G H, CHANG W H, et al. Effects of branched-chain amino acids on growth performance and intestinal development of broilers[J]. Chinese Journal of Animal Nutrition, 2016, 28(1):79-91. (in Chinese)

[19]
CHANG Y L, CAI H Y, LIU G H, et al. Effects of dietary leucine supplementation on the gene expression of mammalian target of rapamycin signaling pathway and intestinal development of broilers[J]. Animal Nutrition, 2015, 1(4):313-319.

DOI PMID

[20]
KIM W K, SINGH A K, WANG J Q, et al. Functional role of branched chain amino acids in poultry:a review[J]. Poultry Science, 2022, 101(5):101715.

DOI

[21]
孙悦, 戴求仲, 蒋桂韬, 等. 饲粮支链氨基酸比例对28-63日龄攸县麻鸭肠道菌群的影响[J]. 广西师范大学学报(自然科学版), 2022, 40(2):242-250.

SUN Y, DAI Q Z, JIANG G T, et al. Effect of dietary branched-chain amino acid ratio on intestinal flora of 28-63 days old Youxian duck[J]. Journal of Guangxi Normal University (Natural Science Edition), 2022, 40(2):242-250. (in Chinese)

[22]
LIU X L, WU J Q, TANG J Y, et al. Prevotella copri alleviates sarcopenia via attenuating muscle mass loss and function decline[J]. Journal of Cachexia,Sarcopenia and Muscle, 2023, 14(5):2275-2288.

DOI

[23]
QIAO S S, LIU C, SUN L, et al. Gut Parabacteroides merdae protects against cardiovascular damage by enhancing branched-chain amino acid catabolism[J]. Nature Metabolism, 2023, 4(10):1271-1286.

DOI

[24]
HAI C, HAO Z T, BU L G, et al. Increased rumen Prevotella enhances BCAA synthesis,leading to synergistically increased skeletal muscle in myostatin-knockout cattle[J]. Communications Biology, 2024, 7(1):1575.

DOI

[25]
NEINAST M D, JANG C, HUI S, et al. Quantitative analysis of the whole-body metabolic fate of branched-chain amino acids[J]. Cell Metabolism, 2019, 29(2):417-429.e4.

DOI PMID

[26]
ROBERSON P A, MOBLEY C B, ROMERO M A, et al. LAT1 protein content increases following 12 weeks of resistance exercise training in human skeletal muscle[J]. Frontiers in Nutrition, 2021, 7:628405.

DOI

[27]
COLLAO N, AKOHENE-MENSAH P, NALLABELLI J, et al. The role of L-type amino acid transporter 1 (Slc7a5) during in vitro myogenesis[J]. American Journal of Physiology:Cell Physiology, 2022, 323(2):C595-C605.

[28]
PINILLA J, ALEDO J C, CWIKLINSKI E, et al. SNAT2 transceptor signalling via mTOR:a role in cell growth and proliferation?[J]. Frontiers in Bioscience, 2011, 3(4):1289-1299.

[29]
HABASHY W S, MILFORT M C, ADOMAKO K, et al. Effect of heat stress on amino acid digestibility and transporters in meat-type chickens[J]. Poultry Science, 2017, 96(7):2312-2319.

DOI PMID

[30]
李永洙, 陈常秀, CUI Y Q. 热应激对蛋鸡肠道菌群结构、碱性磷酸酶活性及氨基酸转运载体mRNA表达丰度的影响[J]. 中国农业科学, 2013, 46(20):4378-4387.

DOI

LI Y Z, CHEN C X, CUI Y Q. Effect of heat stress on the intestinal flora structure and alkaline phosphatase activities and mRNA expression of amino acid transporters of layer[J]. Scientia Agricultura Sinica, 2013, 46(20):4378-4387. (in Chinese)

[31]
FOTIADIS D, KANAI Y, PALACÍN M. The SLC3 and SLC7 families of amino acid transporters[J]. Molecular Aspects of Medicine, 2013, 34(2/3):139-158.

DOI

[32]
ANANIEVA E A, VAN HORN C G, JONES M R, et al. Liver BCATm transgenic mouse model reveals the important role of the liver in maintaining BCAA homeostasis[J]. The Journal of Nutritional Biochemistry, 2017, 40:132-140.

DOI

[33]
JAVED K, CHENG Q, CARROLL A J, et al. Development of biomarkers for inhibition of SLC6A19 (B0AT1)—a potential target to treat metabolic disorders[J]. International Journal of Molecular Sciences, 2018, 19(11):3597.

DOI

[34]
XU J Y, HU Z W, DAI L, et al. Molecular basis of inhibition of the amino acid transporter B0AT1 (SLC6A19)[J]. Nature Communications, 2024, 15(1):7224.

DOI

[35]
SINGH N, ECKER G F. Insights into the structure,function,and ligand discovery of the large neutral amino acid transporter 1,LAT1[J]. International Journal of Molecular Sciences, 2018, 19(5):1278.

DOI

[36]
JECKELMANN J M, LEMMIN T, SCHLAPSCHY M, et al. Structure of the human heterodimeric transporter 4F2hc-LAT2 in complex with anticalin,an alternative binding protein for applications in single-particle cryo-EM[J]. Scientific Reports, 2022, 12(1):18269.

DOI

[37]
DAI L, ZENG Q, ZHANG T, et al. Structural basis for the substrate recognition and transport mechanism of the human y+LAT1-4F2hc transporter complex[J]. Science Advances, 2025, 11(12):eadq0558.

[38]
DAI L, XU K T, ZHANG T, et al. Structural insights into the human system y+L amino acid transporter complex[J]. Structure, 2025, 33(7):1224-1232.e5.

DOI

[39]
STEHANTSEV P, STETSENKO A, NEMCHINOVA M, et al. A structural view onto disease-linked mutations in the human neutral amino acid exchanger ASCT1[J]. Computational and Structural Biotechnology Journal, 2021, 19:5246-5254.

DOI PMID

[40]
BOROWSKA A M, CHIARIELLO M G, GARAEVA A A, et al. Structural basis of the obligatory exchange mode of human neutral amino acid transporter ASCT2[J]. Nature Communications, 2024, 15(1):6570.

DOI

[41]
MENCHINI R J, CHAUDHRY F A. Multifaceted regulation of the system A transporter Slc38a2 suggests nanoscale regulation of amino acid metabolism and cellular signaling[J]. Neuropharmacology, 2019, 161:107789.

DOI

[42]
KUKUŁOWICZ J, SIWEK A, WOLAK M, et al. Insight into the structure of the neutral amino acid transporter B0AT2 Enabled the discovery of tiagabine as an inhibitor[J]. ACS Chemical Neuroscience, 2025, 16(2):262-274.

DOI

[43]
MANN G, MORA S, MADU G, et al. Branched-chain amino acids:catabolism in skeletal muscle and implications for muscle and whole-body metabolism[J]. Frontiers in Physiology, 2021, 12:702826.

DOI

[44]
BO T, FUJII J. Primary roles of branched chain amino acids (BCAAs) and their metabolism in physiology and metabolic disorders[J]. Molecules, 2025, 30(1):56.

DOI

[45]
CHEN C, NAVEED H, CHEN K P. Research progress on branched-chain amino acid aminotransferases[J]. Frontier in Genetics, 2023, 14:1233669.

[46]
PORTERO V, NICOL T, PODLIESNA S, et al. Chronically elevated branched chain amino acid levels are pro-arrhythmic[J]. Cardiovascular Research, 2022, 118(7):1742-1757.

DOI

[47]
MANSOORI S, HO M Y M, NG K K W, et al. Branched-chain amino acid metabolism:pathophysiological mechanism and therapeutic intervention in metabolic diseases[J]. Obesity Reviews, 2025, 26(2):e13856.

DOI

[48]
唐铭泽. BCAT1介导的支链氨基酸代谢紊乱促进骨关节炎软骨降解的机制研究[D]. 硕士学位论文. 广州: 南方医科大学, 2025.

TANG M Z.Mechanism of BCAT1 promoted cartilage degradation via mediating branched-chain amino acid metabolic dysregulation in osteoarthritis[D].Master’s Thesis. Guangzhou: Southern Medical University, 2025. (in Chinese)

[49]
WANG Y, ZHAO X N, MA Y M, et al. The effects of vitamin B6 on the nutritional support of BCAAs-enriched amino acids formula in rats with partial gastrectomy[J]. Clinical Nutrition, 2023, 42(6):954-961.

DOI PMID

[50]
REIFENBERG P, ZIMMER A. Branched-chain amino acids:physico-chemical properties,industrial synthesis and role in signaling,metabolism and energy production[J]. Amino Acids, 2024, 56(1):51.

DOI

[51]
DU C, LIU W J, YANG J, et al. The role of branched-chain amino acids and branched-chain α-keto acid dehydrogenase kinase in metabolic disorders[J]. Frontiers in Nutrition, 2022, 9:932670.

DOI

[52]
MAO Y L, FENG J. Phosphatase activity-based PPM1K:a key player in the regulation of mitochondrial function and its multifaceted impact in diseases[J]. Molecular and Cellular Biochemistry, 2025, 480(5):2815-2826.

DOI

[53]
JOSHI M A, JEOUNG N H, OBAYASHI M, et al. Impaired growth and neurological abnormalities in branched-chain α-keto acid dehydrogenase kinase-deficient mice[J]. Biochemical Journal, 2006, 400(1):153-162.

DOI

[54]
ERICKSEN R E, HAN W P. Malignant manipulaTORs of metabolism:suppressing BCAA catabolism to enhance mTORC1 activity[J]. Molecular & Cellular Oncology, 2019, 6(3):1585171.

[55]
WHITE P J, LAPWORTH A L, AN J, et al. Branched-chain amino acid restriction in Zucker-fatty rats improves muscle insulin sensitivity by enhancing efficiency of fatty acid oxidation and acyl-glycine export[J]. Molecular Metabolism, 2016, 5(7):538-551.

DOI PMID

[56]
SHE P X, VAN HORN C, REID T, et al. Obesity-related elevations in plasma leucine are associated with alterations in enzymes involved in branched-chain amino acid metabolism[J]. American Journal of Physiology-Endocrinology and Metabolism, 2007, 293(6):E1552-E1563.

[57]
LIAN K, DU C S, LIU Y, et al. Impaired adiponectin signaling contributes to disturbed catabolism of branched-chain amino acids in diabetic mice[J]. Diabetes, 2015, 64(1):49-59.

DOI PMID

[58]
SON S M, PARK S J, LEE H, et al. Leucine signals to mTORC1 via its metabolite acetyl-coenzyme A[J]. Cell Metabolism, 2019, 29(1):192-201.e7.

DOI PMID

[59]
ARNOLD P K, FINLEY L W S. Regulation and function of the mammalian tricarboxylic acid cycle[J]. Journal of Biological Chemistry, 2023, 299(2):102838.

DOI

[60]
GREEN C R, WALLACE M, DIVAKARUNI A S, et al. Branched-chain amino acid catabolism fuels adipocyte differentiation and lipogenesis[J]. Nature Chemical Biology, 2016, 12(1):15-21.

DOI PMID

[61]
INIGO M, DEJA S, BURGESS S C. Ins and outs of the TCA cycle:the central role of anaplerosis[J]. Annual Review of Nutrition, 2021, 41:19-47.

DOI

[62]
LI Y, LIU Q Y, JIA Z H, et al. Ketone bodies in exercise,health and disease:metabolic mechanisms,pathophysiology,and therapeutic implications[J]. Advanced Exercise and Health Science, 2025, 2(2):83-93.

DOI

[63]
ZHANG Q L, ZHU L, LI H L, et al. Insights and progress on the biosynthesis,metabolism,and physiological functions of gamma-aminobutyric acid (GABA):a review[J]. PeerJ, 2024, 12:e18712.

DOI

[64]
SPERRINGER J E, ADDINGTON A, HUTSON S M. Branched-chain amino acids and brain metabolism[J]. Neurochemical Research, 2017, 42(6):1697-1709.

DOI PMID

[65]
陈嘉艺, 周昕博, 单安山, 等. 支链氨基酸对动物糖脂代谢的调控及作用机理[J]. 动物营养学报, 2020, 32(9):4078-4085.

DOI

CHEN J Y, ZHOU X B, SHAN A S, et al. Regulation and mechanism of branched-chain amino acids on animal glycolipid metabolism[J]. Chinese Journal of Animal Nutrition, 2020, 32(9):4078-4085. (in Chinese)

[66]
MOGHEI M, TAVAJOHI-FINI P, BEATTY B, et al. Ketoisocaproic acid,a metabolite of leucine,suppresses insulin-stimulated glucose transport in skeletal muscle cells in a BCAT2-dependent manner[J]. American Journal of Physiology:Cell Physiology, 2016, 311(3):C518-C527.

[67]
DEMETRIADOU C, NOJI M, GOOD A L, et al. A nuclear branched-chain amino acid catabolism pathway controls histone propionylation in pancreatic cancer[EB/OL].(2025-04-26)[2026-01-05].https://doi.org/10.1101/2025.04.23.650241.

Outlines

/