RESEARCH PAPER

Effects of Gypenosides on Growth Performance, Slaughter Performance, Meat Quality and Antioxidant Capacity of Broilers under Heat Stress and Their Association Analysis with Extracellular Regulated Protein Kinase/Forkhead Box O3 Protein Signaling Pathway

  • YANG Qi ,
  • WANG Jiaxin ,
  • LI Jungang ,
  • ZHANG Xueqi ,
  • MIAO Jiajun ,
  • HE Shaojun ,
  • DING Jinxue , *
Expand
  • College of Animal Science, Anhui Science and Technology University, Chuzhou 233100, China
* lecturer, E-mail:

Received date: 2026-02-09

  Online published: 2026-09-12

Abstract

This study aimed to explore the effects of gypenosides (GPS) on growth performance, slaughter performance, meat quality and antioxidant capacity of broilers under heat stress, and to analysis their association with extracellular regulated protein kinase (ERK)/forkhead box O3 (FOXO3) protein signaling pathway. A total of 120 healthy 28-day-old Arbor Acres (AA) broilers with similar body weight were randomly divided into 5 groups with 3 replicates per group and 8 broilers per replicate. Broilers in the normal control group (NS group) and heat stress model group (HS group) were fed basal diets, and others in low dose intervention group (GPS-L group), medium dose intervention group (GPS-M group) and high dose intervention group (GPS-H group) were fed basal diets supplemented with 200, 300 and 450 mg/kg GPS (purity≥98%), respectively. Except for the NS group, the broilers in other groups were subjected to heat stress treatment at (33±1) ℃ for 10 h/d. The experimental period lasted for 14 days. The results showed as follows: 1) at heat stress for 7 and 14 days, compared with the NS group, the average daily gain (ADG), average daily feed intake (ADFI) and half-eviscerated yield percentage of the HS group were significantly decreased (P<0.05), and the feed to gain ratio (F/G) was significantly increased (P<0.05); the breast muscle drip loss was significantly increased (P<0.05), and the redness (a*) value was significantly decreased (P<0.05); the breast muscle malondialdehyde (MDA) content was significantly increased (P<0.05), and the total antioxidant capacity (T-AOC) and catalase (CAT) activity were significantly decreased (P<0.05); the breast muscle FOXO3 mRNA relative expression level was significantly increased (P<0.05), and the mitogen activated protein kinase 2 (MEK2) and extracellular regulated protein kinase 1/2 (ERK1/2) mRNA relative expression levels were significantly decreased (P<0.05). 2) At heat stress for 7 and 14 days, compared with the HS group, the ADG and half-eviscerated yield percentage of GPS-M group and GPS-H group were significantly increased (P<0.05), and the F/G was significantly decreased (P<0.05); the breast muscle drip loss was significantly decreased (P<0.05); the breast muscle CAT activity was significantly increased (P<0.05), and the MDA content was significantly decreased (P<0.05); the breast muscle FOXO3 mRNA relative expression level was significantly decreased (P<0.05). 3) The network pharmacology predicted that the ERK/FOXO3 signaling pathway was closely related to the oxidative stress regulation, and it was the core pathway of GPS. In conclusion, dietary supplemented with GPS can alleviate the decline in growth performance, slaughter performance and meat quality caused by heat stress in broilers, enhance the body antioxidant capacity, and this effect is associated with changes in the activity of the ERK/FOXO3 signaling pathway. Under the conditions of this experiment, dietary 450 mg/kg GPS shows the best relief effect on breast muscle oxidative damage in broilers at heat stress for 14 days.

Cite this article

YANG Qi , WANG Jiaxin , LI Jungang , ZHANG Xueqi , MIAO Jiajun , HE Shaojun , DING Jinxue . Effects of Gypenosides on Growth Performance, Slaughter Performance, Meat Quality and Antioxidant Capacity of Broilers under Heat Stress and Their Association Analysis with Extracellular Regulated Protein Kinase/Forkhead Box O3 Protein Signaling Pathway[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 6629 -6644 . DOI: 10.12418/CJAN2026.531

随着全球气候变暖以及家禽养殖集约化程度不断提高,热应激(heat stress,HS)已成为家禽养殖业面临的严峻挑战之一[1]。家禽由于其自身特殊的生理结构,如高代谢率、浓密羽毛以及缺乏汗腺,对高温环境极为敏感[2]。当环境温度超过其适宜温度范围时,家禽就会发生热应激反应。高温引起的热应激对家禽有不利影响,包括采食量降低、饲料效率降低、体重下降和死亡率增加等[3]。热应激对家禽的影响是多方面的,其中对肌肉的损伤尤为显著。热应激会导致家禽肌肉生长受阻,蛋白质合成减少,分解代谢增强,从而使肌肉品质下降,如肉色苍白、系水力降低、嫩度变差等[4]。这些变化不仅影响家禽肌肉的口感和营养价值,还会降低其市场价值,给家禽养殖业带来巨大的经济损失。相关研究表明,在高温环境下,肉鸡的生长速度和饲料转化率显著下降,肌肉品质变差;而蛋鸡在热应激条件下不仅产蛋性能下降,肌肉也会出现不同程度的损伤,影响淘汰鸡的肉品质[1]
绞股蓝苷(gypenosides,GPS)是葫芦科、绞股蓝属草质攀缘植物绞股蓝的主要有效成分,属于三萜皂苷类化合物。传统中医药认为,绞股蓝味苦、性寒,具有消炎解毒、止咳祛痰等功效;现代药理学研究表明,GPS具有调节机体代谢、免疫调节、抗氧化、降血糖、抗疲劳、抗炎等多种生物活性[5-6],为其在畜禽应激调控领域的应用提供了重要理论依据。研究证实,GPS可通过抑制活性氧(ROS)生成和上调抗氧化相关蛋白表达,减轻氧化应激诱导的细胞损伤[7],提示其在维持机体氧化-抗氧化平衡中发挥重要作用。热应激可导致肉鸡体内氧化系统失衡,ROS过量蓄积,进而引发代谢紊乱和组织损伤[8]。尽管GPS的抗氧化作用已得到广泛证实,但其缓解畜禽热应激的关键信号通路及分子调控机制仍有待深入阐明。研究发现,细胞外调节蛋白激酶(ERK)/叉头框O3蛋白(FOXO3)信号通路在氧化应激、细胞凋亡及应激响应中具有核心调控功能[9]。深入解析GPS通过ERK/FOXO3信号通路缓解肉鸡热应激的分子机制,对明确其抗应激作用靶点、拓展其在畜禽健康养殖中的应用具有重要科学意义。因此,本试验旨在研究绞股蓝苷对热应激肉鸡生长性能、屠宰性能、肉品质及抗氧化能力的影响,结合网络药理学预测GPS作用的核心信号通路,并验证ERK/FOXO3信号通路关键基因的表达,旨在明确GPS改善热应激肉鸡肉品质的分子机制关联及剂量效应、时间效应,为GPS在肉鸡热应激防控中的精准应用提供理论依据和技术支持。

1 材料与方法

1.1 试验设计与饲养管理

本试验经安徽科技学院实验动物伦理与福利委员会审核批准(批准编号:2025013),肉鸡饲养试验在安徽科技学院动物试验基地完成。
试验选取1日龄爱拔益加(AA)肉鸡150只,于常规条件下饲养至28日龄,期间采用23 h光照+1 h黑暗的光照周期,第1周鸡舍温度维持在(34±1) ℃,自第2周起每周以2~3 ℃幅度递减,至28日龄时稳定在(24±1) ℃。选取体重相近的28日龄健康AA肉鸡120只,随机分为5组,每组3个重复,每重复8只。正常对照组(NS组)和热应激模型组(HS组)饲喂基础饲粮,GPS低剂量干预组(GPS-L组)、GPS中剂量干预组(GPS-M组)和GPS高剂量干预组(GPS-H组)分别在基础饲粮中添加200、300和450 mg/kg的GPS(纯度≥98%)。其中,NS组全程在(24±1) ℃环境下;HS组、GPS-L组、GPS-M组和GPS-H组每日08:00—18:00暴露在(33±1) ℃热应激环境下,其余时段在(24±1) ℃环境下。试验期14 d。基础饲粮根据NRC(1994)家禽营养需求标准推荐值配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of basal diets (DM basis)

项目
Items
1~21日龄
1 to 21
days of age
22~42日龄
22 to 42
days of age
原料Ingredients
玉米Corn 60.90 62.20
豆渣Soybean pulp 28.10 26.80
大豆油Soybean oil 3.50 3.50
鱼粉Fish meal 3.50 3.50
磷酸氢钙CaHPO4 1.50 1.50
食盐NaCl 0.50 0.50
预混料Premix1) 2.00 2.00
合计Total 100.00 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 12.86 13.04
粗蛋白质Crude protein 22.60 22.01
粗脂肪Crude fat 5.88 5.96
粗纤维Crude fiber 2.49 2.44
粗灰分Crude ash 3.65 3.60
钙Ca 1.20 1.20
磷P 0.70 0.67

1)预混料为每千克饲粮提供 Premix provided the following per kilogram of diets:MnSO4 66 mg,ZnO 44 mg,CuSO4 9 mg,FeSO4 50 mg,KI 0.4 mg,VA 7 000 IU,VD3 875 IU,VE 20 IU,VK3 1 mg,VB2 4.5 mg,VB6 2.5 mg,VB12 0.6 mg,烟碱 nicotine 50 mg,D-泛酸 D-pantothenic acid 12 mg。

==2)代谢能为计算值,其余均为实测值。ME was a calculated value, while the others were measured values.

1.2 样品采集与处理

分别于热应激7和14 d,每组从3个重复中随机选取共8只肉鸡,禁食12 h后称重,颈动脉放血屠宰。屠宰后取左侧胸肌中间部位样品,一部分用于肉品质测定,另一部分迅速置于液氮中冷冻,随后转移至-80 ℃冰箱保存,用于氧化损伤指标测定和采用实时荧光定量PCR(qRT-PCR)试验。

1.3 指标测定

1.3.1 饲粮营养成分

代谢能根据《中国饲料成分及营养价值表(2018年第29版)》计算。粗蛋白质、粗脂肪、粗纤维、粗灰分、钙、磷含量分别参照GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2022、GB/T 6438—2007、GB/T 6436—2018、GB/T 6437—2018的方法进行测定。

1.3.2 生长性能

试验期间,每天08:00记录各组的采食量并称重,统计分析热应激7和14 d肉鸡的平均日采食量(ADFI)、平均日增重(ADG)、料重比(F/G)。

1.3.3 屠宰性能

宰前称量活重后屠宰,记录屠体重(放血去羽毛后的重量,用湿拔羽法要沥干后称重)、半净膛重(屠体重去气管、食道、嗉囊、肠道、脾脏、胰脏、胆和生殖器官,保留心脏、肝脏、肾脏、腺胃、肌胃,肌胃需去除角质膜和内容物)、全净膛重(半净膛重去心脏、肝脏、腺胃、肌胃、肺脏、脂肪及头、脚的重量),分离腹脂、胸肌和腿肌并称重,计算公式如下:
屠宰率(%)=(屠体重/宰前活重)×100;
半净膛率(%)=(半净膛重/宰前活重)×100;
全净膛率(%)=(全净膛重/宰前活重)×100;
腹脂率(%)=(腹脂重/全净膛重)×100;
胸肌率(%)=(胸肌重/全净膛重)×100;
腿肌率(%)=(腿肌重/全净膛重)×100。

1.3.4 肉品质

失水率:取新鲜胸肌,去筋腱、脂肪、肌膜后称重,记为W1;切片后置18层滤纸间,采用肉品系水力测定仪(RH-1000型,广州润湖仪器有限公司)加35 kg压力5 min,之后称重,记为W2。计算失水率,计算公式如下:
失水率(%)=[(W1-W2)/W1]×100。
滴水损失:宰后2 h内取1.0 cm×2.0 cm×3.0 cm大小的肉样称重,记为W3;悬挂于充气袋(不贴壁),4 ℃冷藏24 h后称重,记为W4。滴水损失计算公式如下:
滴水损失(%)=[(W3-W4)/W3]×100。
熟肉率:取约30 g胸肌称重,记为W5;加3~5倍热水煮沸40 min,晾5 min后称熟肉重,记为W6。熟肉率计算公式如下:
熟肉率(%)=(W6/W5)×100。
肉色:采用色度仪(CR-410型,日本Konica Minolta公司)测定胸肌亮度(L*)、红度(a*)、黄度(b*)值,对每个样本3个非连续区域进行检测,取平均值。
嫩度:新鲜胸肌修切为1.0 cm×0.5 cm的长条,采用嫩度仪(RH-N50型,广州润湖仪器有限公司)测定剪切力,每个样本平行测定3次,取平均值。

1.3.5 胸肌氧化损伤指标

取-80 ℃保存的胸肌样品,按照试剂盒说明书操作,检测肌肉组织匀浆中氧化损伤指标。过氧化氢酶(catalase,CAT)活性、丙二醛(malondialdehyde,MDA)含量和总抗氧化能力(total antioxidant capacity,T-AOC)检测试剂盒购自南京建成生物工程研究所;超氧化物歧化酶(superoxide dismutase,SOD)活性检测试剂盒购自北京索莱宝科技有限公司。

1.3.6 网络药理学预测GPS作用机制

运用网络药理学方法,预测GPS干预热应激肉鸡肌肉损伤的潜在分子机制。首先,通过TCMSP数据库、NovoPro数据库、SwisstargetPrediction数据库、PharmMapper数据库和STRING数据库获取GPS对应的主要活性成分和基因靶点;然后,基于GeneCards、OMIM和DisGeNet数据库获取热应激肌肉损伤相关核心基因,通过STRING数据库、CytoscaPe软件构建蛋白质-蛋白质互作(PPI)网络,筛选关键枢纽靶点;最后,利用Kobas、微生信网站进行GO功能富集和KEGG通路富集,挖掘GPS可能参与的信号通路。

1.3.7 ERK/FOXO3信号通路中关键基因表达

采用qRT-PCR测定胸肌组织中ERK/FOXO3信号通路中关键基因FOXO3、丝裂原活化蛋白激酶激酶1(MEK1)、丝裂原活化蛋白激酶激酶2(MEK2)、细胞外调节蛋白激酶1/2(ERK1/2)的表达情况。使用TRIzol试剂从胸肌组织中提取总RNA,根据反转录试剂盒说明书,将RNA反转录为cDNA,置于-20 ℃冰箱保存备用。使用Primer 5软件设计qRT-PCR引物,并经NCBI Primer-Blast工具进行种属特异性验证,引物序列信息见表2。按照qRT-PCR试剂盒说明书操作,反应体系为20 μL。反转录试剂盒、qRT-PCR试剂盒购自武汉爱博泰克生物科技有限公司,引物由安徽合肥生工生物工程股份有限公司合成。以β-肌动蛋白(β-actin)作为内参基因,采用2-ΔΔCt法计算目标基因的相对表达水平。
表2 引物序列信息

Table 2 Primer sequence information

基因
Genes
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
GenBank登录号
GenBank accession
number
叉头框O3蛋白FOXO3 F:TGCGTATGCGCAAGGAAATG
R:TCTGGAATTCGGTCGGTTGG
102 XM_001234495.7
丝裂原活化蛋白激酶激酶1 MEK1 F:AGCTCTGCCGAGACAAACTT
R:TGAACACCACCCCACCATTC
181 NM_001005830.2
丝裂原活化蛋白激酶激酶2 MEK2 F:TGCTGATGAATCACACCTTCAT
R:TGCTGGGCTGGTTTAACCTC
96 NM_205388.2
细胞外调节蛋白激酶1/2 ERK1/2 F:GCATGCTCAAACGTTGCTGT
R:CAACAATGGGCGTTACGCAT
198 NM_204150.2
β-肌动蛋白β-actin F:CGGACTGTTACCAACACCCA
R:TCCTGAGTCAAGCGCCAAAA

1.4 数据统计分析

试验数据采用SPSS 27.0软件进行进行统计分析,其中NS组与HS组之间数据采用t检验进行差异显著性分析,热应激处理组(HS组、GPS-L组、GPS-M组和GPS-H组)之间数据采用单因素方差分析(one-way ANOVA)和Duncan氏法进行组间多重比较,并进行线性和二次回归分析。数据用平均值和均值标准误(SEM)表示,P<0.05表示差异显著。

2 结果与分析

2.1 GPS对热应激肉鸡生长性能的影响

表3可知,在热应激7 d时,与NS组相比,HS组的ADG、ADFI显著降低(P<0.05),F/G显著提高(P<0.05);在热应激条件下,与HS组相比,GPS-L组、GPS-M组和GPS-H组的ADG显著提高(P<0.05),F/G显著降低(P<0.05);GPS-H组的ADFI显著提高(P<0.05)。在热应激14 d时,与NS组相比,HS组的ADG、ADFI显著降低(P<0.05),F/G显著提高(P<0.05);在热应激条件下,与HS组相比,GPS-M组和GPS-H组的ADG、ADFI显著提高(P<0.05),F/G显著降低(P<0.05)。线性和二次回归分析显示,在热应激7和14 d时,ADG、ADFI和F/G与GPS添加量存在显著线性相关(P<0.05);在热应激7 d时,F/G与GPS添加量存在显著二次曲线相关(P<0.05)。综合分析表明,GPS-H组肉鸡生长性能表现最优。
表3 GPS对热应激肉鸡生长性能的影响

Table 3 Effects of GPS on growth performance of broilers under heat stress

项目
Items
组别Groups SEM P1
P1-value
P2P2-value
NS HS GPS-L GPS-M GPS-H 方差分析
ANOVA
线性
Linear
二次
Quadratic
热应激7 d Heat stress for 7 days
平均日增重
ADG/g
114.64 63.04c 90.89b 95.89b 108.39a 3.018 <0.001 <0.001 <0.001 0.095
平均日采食量
ADFI/g
158.84 123.36b 133.83ab 137.77ab 153.50a 6.365 0.004 0.027 0.003 0.527
料重比F/G 1.39 1.98a 1.49b 1.45b 1.43b 0.054 <0.001 <0.001 <0.001 0.002
热应激14 d Heat stress for 14 days
平均日增重
ADG/g
90.89 40.54c 50.89bc 57.32ab 66.79a 3.674 <0.001 0.001 <0.001 0.800
平均日采食量
ADFI/g
166.82 131.92b 141.85ab 154.00a 159.48a 6.243 0.001 0.022 0.002 0.959
料重比F/G 1.84 3.85a 2.89ab 2.75b 2.43b 0.232 0.013 0.036 0.004 0.449

P1值代表NS组与HS组之间t检验的P值,P2值代表热应激处理组(HS组、GPS-L组、GPS-M组和GPS-H)之间单因素方差分析的P值。热应激处理组之间同行数据肩标无字母或相同字母表示差异不显著(P>0.05),肩标不同字母表示差异显著(P<0.05)。下表同。

P1-value represented the P-value of the t-test between the NS group and HS group, and P2-value represented the P-value of the one-way analysis of variance among the heat stress treatment groups (HS group, GPS-L group, GPS-M group and GPS-H group). In the same row among the heat stress treatment groups, values with no letter or the same letter superscripts indicated no significant difference (P>0.05), while different letter superscripts indicated significant difference (P<0.05). The same as below.

2.2 GPS对热应激肉鸡屠宰性能的影响

表4可知,在热应激7 d时,与NS组相比,HS组的半净膛率显著降低(P<0.05);在热应激条件下,与HS组相比,GPS-L组、GPS-M组和GPS-H组的半净膛率显著提高(P<0.05)。在热应激14 d时,与NS组相比,HS组的半净膛率、全净膛率显著降低(P<0.05),腹脂率显著提高(P<0.05);在热应激条件下,与HS组相比,GPS-L组和GPS-M组和GPS-H组的半净膛率、全净膛率显著提高(P<0.05),腹脂率显著降低(P<0.05)。线性和二次回归分析显示,在热应激7 d时,半净膛率与GPS添加量存在显著线性相关(P<0.05);在热应激14 d时,半净膛率、全净膛率、腹脂率、胸肌率与GPS添加量存在显著线性相关(P<0.05)。综合分析表明,GPS对热应激肉鸡屠宰性能的调节具有剂量效应。
表4 GPS对热应激肉鸡屠宰性能的影响

Table 4 Effects of GPS on slaughter performance of broilers under heat stress

项目
Items
组别Groups SEM P1
P1-value
P2P2-value
NS HS GPS-L GPS-M GPS-H 方差分析
ANOVA
线性
Linear
二次
Quadratic
热应激7 d Heat stress for 7 days
屠宰率
Dressing
percentage
94.82 94.57 95.52 94.65 95.14 0.358 0.466 0.347 0.521 0.561
半净膛率
Half-eviscerated
yield percentage
87.34 81.62c 88.36a 85.76b 88.56a 0.550 0.001 <0.001 <0.001 0.065
全净膛率
Eviscerated yield
percentage
75.78 75.27 75.34 76.54 77.03 0.589 0.687 0.229 0.053 0.610
胸肌率
Breast muscle
percentage
29.86 29.68 28.77 28.69 29.50 0.787 0.709 0.880 0.848 0.427
腿肌率
Leg muscle
percentage
18.43 19.25 18.16 19.25 18.86 0.597 0.421 0.529 0.839 0.513
热应激14 d Heat stress for 14 days
屠宰率
Dressing
percentage
94.79 94.76 94.60 95.21 94.80 0.346 0.949 0.616 0.695 0.795
半净膛率
Half-eviscerated
yield percentage
89.66 87.19c 88.44b 88.54b 90.98a 0.327 0.003 <0.001 <0.001 0.051
全净膛率
Eviscerated yield
percentage
76.83 73.78c 76.53b 77.13ab 78.50a 0.436 0.017 <0.001 <0.001 0.355
腹脂率
Abdominal fat
percentage
0.71 1.31a 0.86b 0.87b 0.74b 0.062 <0.001 <0.001 <0.001 0.069
胸肌率
Breast muscle
percentage
29.76 28.28 29.91 31.70 30.57 0.714 0.095 0.058 0.033 0.179
腿肌率
Leg muscle
percentage
21.58 20.69 21.01 21.35 21.23 0.467 0.107 0.812 0.382 0.731

2.3 GPS对热应激肉鸡肉品质的影响

表5可知,在热应激7 d时,与NS组相比,HS组的胸肌滴水损失显著提高(P<0.05),熟肉率、a*值显著降低(P<0.05);在热应激条件下,与HS组相比,GPS-L组、GPS-M组和GPS-H组的胸肌滴水损失显著降低(P<0.05),a*值显著提高(P<0.05);GPS-L组和GPS-M组的胸肌熟肉率显著提高(P<0.05);GPS-M组和GPS-H组的胸肌L*值显著降低(P<0.05)。在热应激14 d时,与NS组相比,HS组的胸肌滴水损失显著提高(P<0.05),a*值显著降低(P<0.05);在热应激条件下,与HS组相比,GPS-M组和GPS-H组的胸肌滴水损失、失水率显著降低(P<0.05)。线性和二次回归分析显示,在热应激7 d时,胸肌滴水损失、剪切力及L*、a*值与GPS添加量存在显著线性相关(P<0.05),熟肉率及L*、a*值与GPS添加量存在显著二次曲线相关(P<0.05);在热应激14 d时,胸肌滴水损失、失水率及L*、a*值与GPS添加量存在显著线性相关(P<0.05)。综合分析表明,GPS-H组的肉鸡在保水性和嫩度方面表现最优。
表5 GPS对热应激肉鸡肉品质的影响

Table 5 Effects of GPS on meat quality of broilers under heat stress

项目
Items
组别Groups SEM P1
P1-value
P2P2-value
NS HS GPS-L GPS-M GPS-H 方差分析
ANOVA
线形
Linear
二次
Quadratic
热应激7 d Heat stress for 7 days
滴水损失
Drip loss/%
1.62 3.66a 2.37b 2.40b 1.58b 0.282 0.009 0.010 <0.001 0.673
熟肉率
Cooked meat
rate/%
66.60 60.52c 64.99a 63.41b 61.91bc 0.530 <0.001 <0.001 0.348 <0.001
失水率
Water loss rate/%
10.00 14.00 12.64 11.67 11.17 1.248 0.132 0.329 0.057 0.820
亮度L* 51.72 55.44b 58.67a 51.84c 49.79d 0.754 0.077 <0.001 0.005 0.015
红度a* 5.96 4.47b 7.47a 6.59a 6.45a 0.358 0.014 0.002 0.041 0.005
黄度b* 2.21 2.06 2.41 2.14 2.05 0.229 0.762 0.577 0.876 0.266
剪切力
Shear force/N
18.96 19.72 18.18 16.12 15.37 1.179 0.689 0.118 0.014 0.946
热应激14 d Heat stress for 14 days
滴水损失
Drip loss/%
2.44 5.15a 5.15a 3.09b 3.29b 0.365 0.006 0.001 0.003 0.818
熟肉率
Cooked meat
rate/%
65.77 63.10 63.55 63.17 64.41 0.680 0.082 0.413 0.179 0.482
失水率
Water loss rate/%
24.23 24.99a 22.05ab 16.21bc 12.38c 1.651 0.823 0.003 <0.001 0.507
亮度L* 50.38 51.82 51.92 49.99 50.26 0.596 0.241 0.072 0.042 0.876
红度a* 2.37 1.64 2.00 2.31 2.24 0.168 0.047 0.058 0.012 0.321
黄度b* 2.43 2.47 2.34 2.43 2.42 0.447 0.911 0.973 0.878 0.764
剪切力
Shear force/N
22.20 21.32 22.67 20.59 21.38 1.212 0.676 0.792 0.858 0.789

2.4 GPS对热应激肉鸡胸肌氧化损伤指标的影响

表6可知,在热应激7 d时,与NS组相比,HS组的胸肌MDA含量显著提高(P<0.05),T-AOC和CAT活性显著降低(P<0.05);在热应激条件下,与HS组相比,GPS-M组和GPS-H组的胸肌CAT活性显著提高(P<0.05),GPS-L组、GPS-M组和GPS-H组的胸肌MDA含量显著降低(P<0.05)。在热应激14 d时,与NS组相比,HS组的胸肌T-AOC和CAT、SOD活性显著降低(P<0.05),MDA含量显著提高(P<0.05);在热应激条件下,与HS组相比,GPS-L组、GPS-M组和GPS-H组的胸肌T-AOC和CAT活性显著提高(P<0.05),MDA含量显著降低(P<0.05)。线性和二次回归分析显示,在热应激7 d时,胸肌MDA含量与GPS添加量存在线性和二次曲线相关(P<0.05),T-AOC和CAT、SOD活性与GPS添加量存在显著线性相关(P<0.05);在热应激14 d时,胸肌T-AOC和MDA含量与GPS添加量存在显著线性和二次曲线相关(P<0.05),CAT、SOD活性与GPS添加量存在显著线性相关(P<0.05)。综合分析表明,GPS-H组的肉鸡抗氧化能力最强,氧化损伤最轻。
表6 GPS对热应激肉鸡胸肌氧化损伤指标的影响

Table 6 Effects of GPS on breast muscle oxidative damage indicators of broilers under heat stress

项目
Items
组别Groups SEM P1
P1-value
P2P2-value
NS HS GPS-L GPS-M GPS-H 方差分析
ANOVA
线形
Linear
二次
Quadratic
热应激7 d Heat stress for 7 days
总抗氧化能力
T-AOC/
(nmol/mg)
125.34 117.29 120.84 124.27 134.79 3.364 <0.001 0.085 0.013 0.327
丙二醛
MDA/(nmol/mg)
0.37 0.87a 0.50b 0.47b 0.37b 0.039 <0.001 <0.001 <0.001 0.020
过氧化氢酶
CAT/(U/g)
13.13 11.04c 11.46bc 12.72ab 13.79a 0.410 0.010 0.008 <0.001 0.319
超氧化物歧化酶
SOD/(U/g)
572.54 626.74 589.70 567.43 567.01 21.352 0.224 0.216 0.040 0.500
热应激14 d Heat stress for 14 days
总抗氧化能力
T-AOC/
(nmol/mg)
123.72 106.11b 123.54a 124.38a 122.52a 2.139 0.005 <0.001 0.001 <0.001
丙二醛
MDA/(nmol/mg)
0.40 0.99a 0.56b 0.44b 0.54b 0.044 <0.001 <0.001 <0.001 <0.001
过氧化氢酶
CAT/(U/g)
10.92 5.70c 9.62b 9.53b 11.72a 0.507 0.004 <0.001 <0.001 0.216
超氧化物歧化酶
SOD/(U/g)
619.73 508.51 605.82 590.24 621.21 27.628 0.017 0.083 0.020 0.340

2.5 网络药理学预测GPS作用的核心信号通路

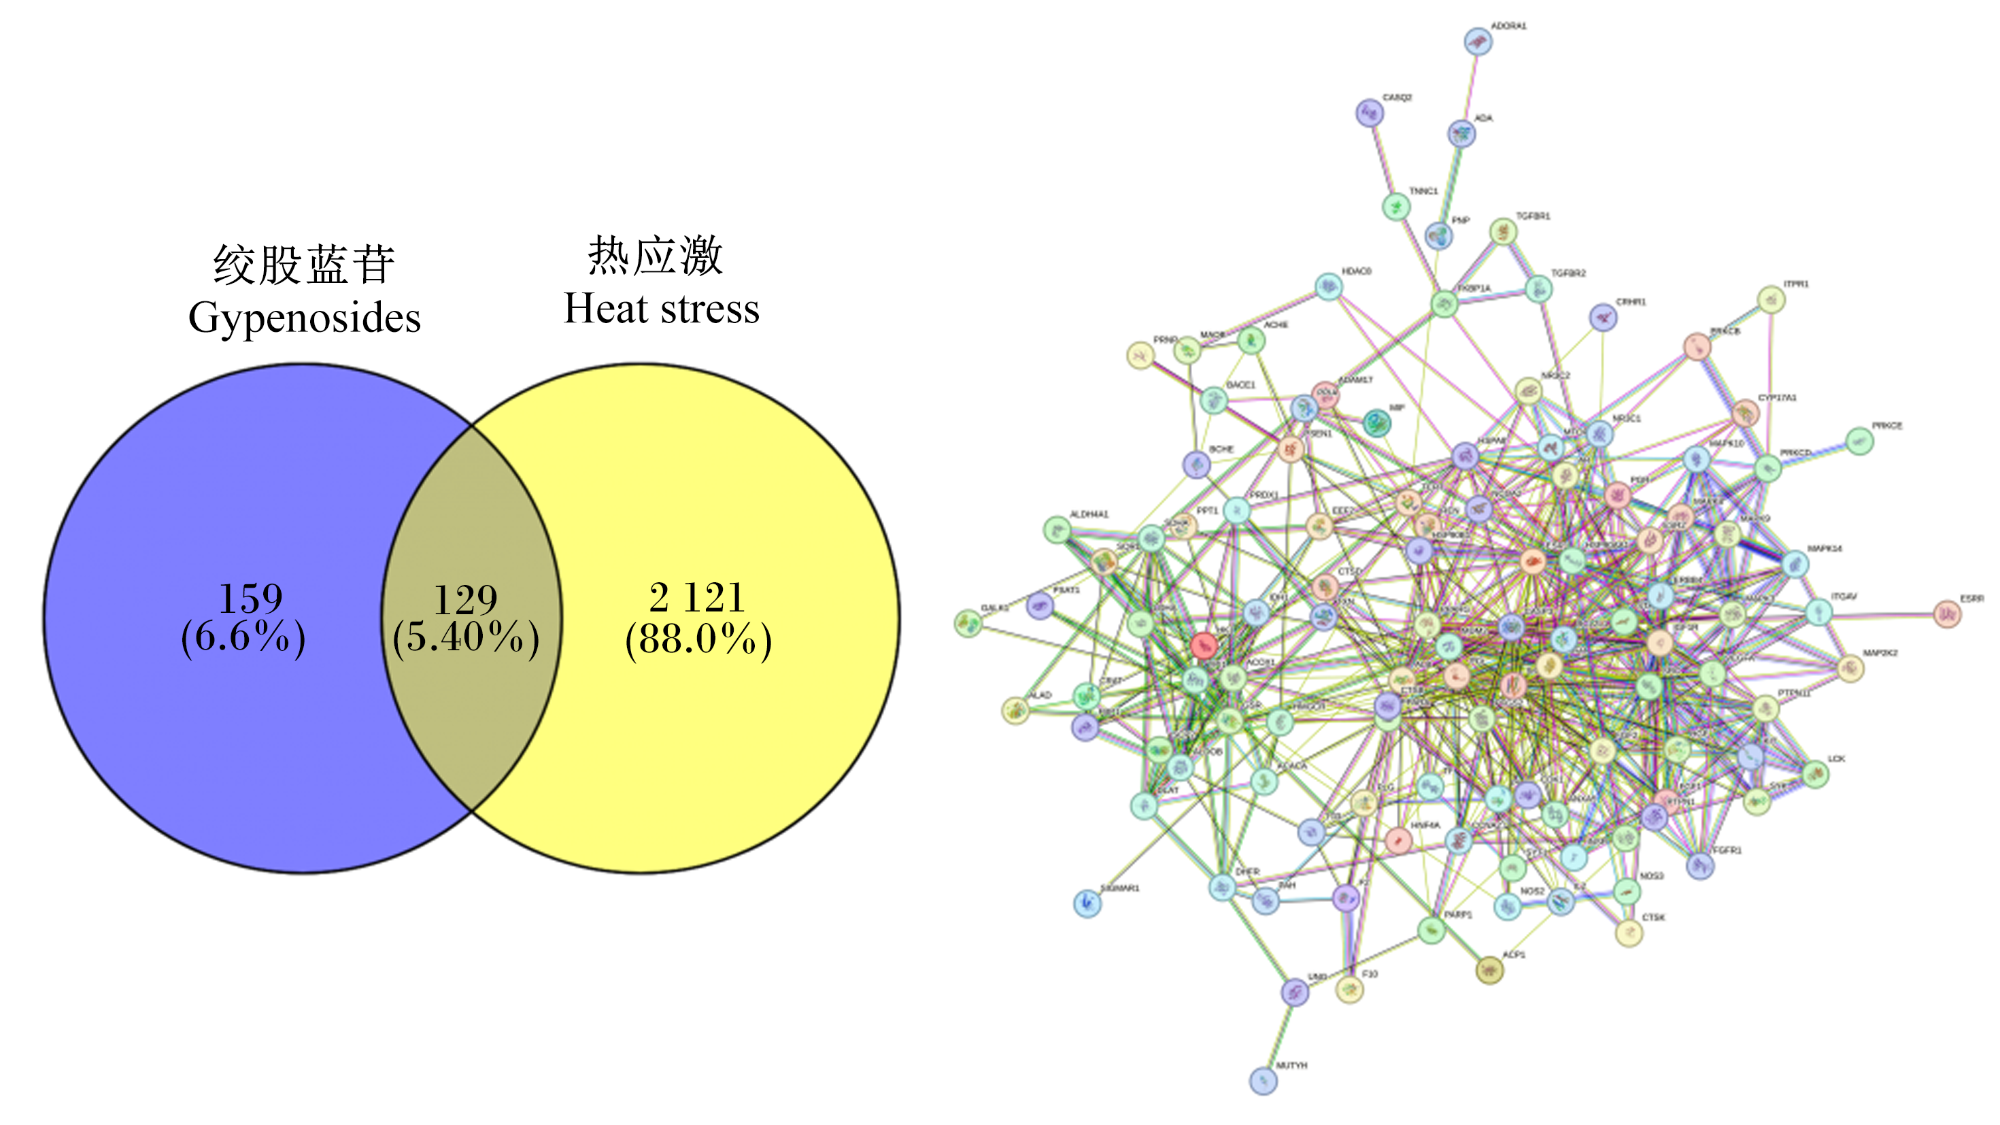
图1所示,通过网络药理学分析,共筛选得到GPS活性成分潜在靶点共228个,热应激肉鸡肌肉相关靶点共2 250个,两者交集靶点129个,为GPS作用于热应激肉鸡肌肉的潜在靶点。如图2所示,PPI网络显示,靶点之间存在相互作用。
图1 交集靶点韦恩图与PPI网络

Fig.1 Venn diagram of intersection targets and PPI network

图2 PPI网络

仅注释主要靶点 only annotate the main targets。ESR1:雌激素受体1 estrogen receptor 1;AR:雄激素受体 androgen receptor;CASP3:半胱氨酸天冬氨酸蛋白酶3 caspase 3;ALB:白蛋白 albumin;EGFR:表皮生长因子受体 epidermal growth factor receptor;PPARG:过氧化物酶体增殖物激活受体γ peroxisome proliferator-activated receptor gamma;SRC:Src原癌基因酪氨酸蛋白激酶 v-src sarcoma viral oncogene homolog;IGF1R:胰岛素样生长因子1受体 insulin like growth factor 1 receptor;IL6:白细胞介素6 interleukin 6;FGF2:成纤维细胞生长因子2 fibroblast growth factor 2;INS:胰岛素 insulin;STAT3:信号传导与转录激活因子3 signal transducer and activator of transcription 3;BCL2L1:B细胞淋巴瘤2样蛋白1 B-cell lymphoma 2 like protein 1。

Fig.2 PPI network

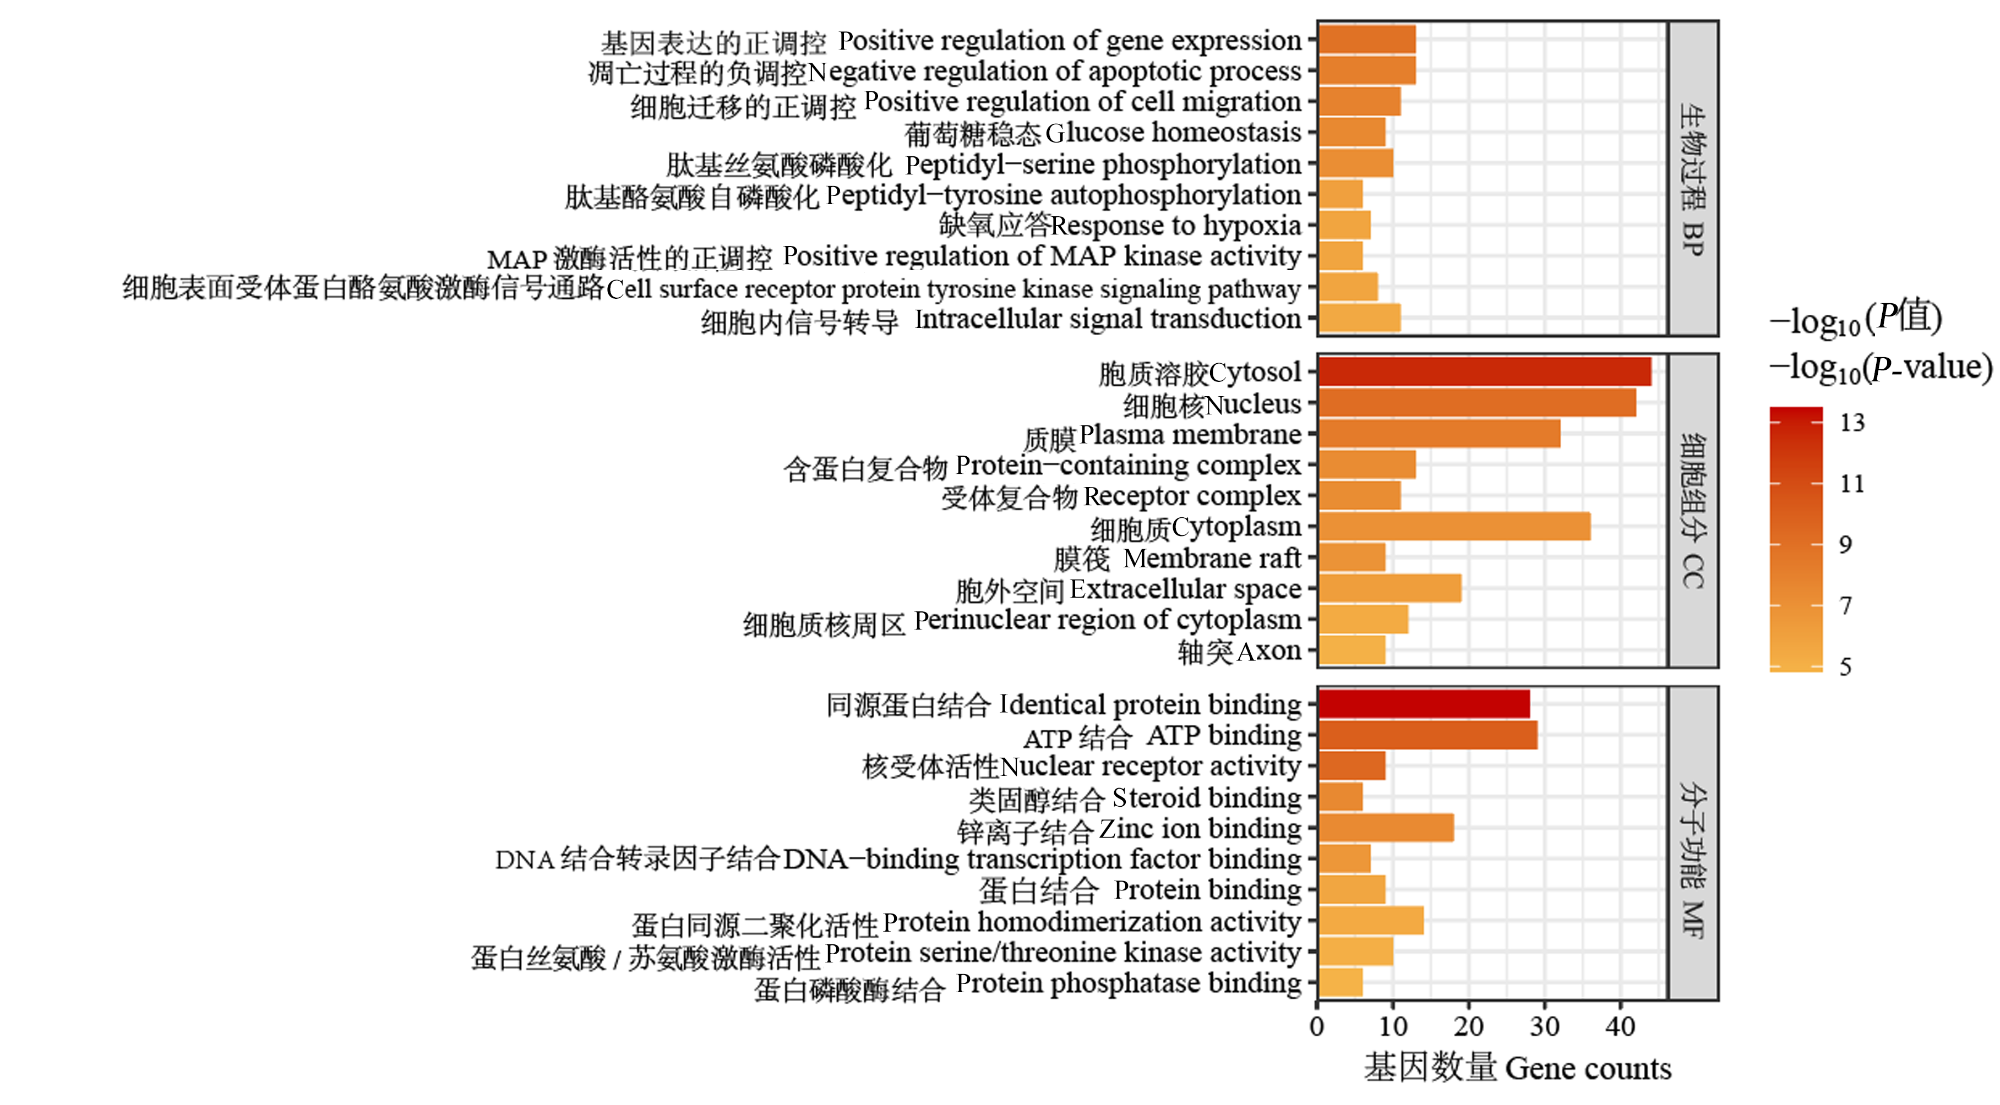
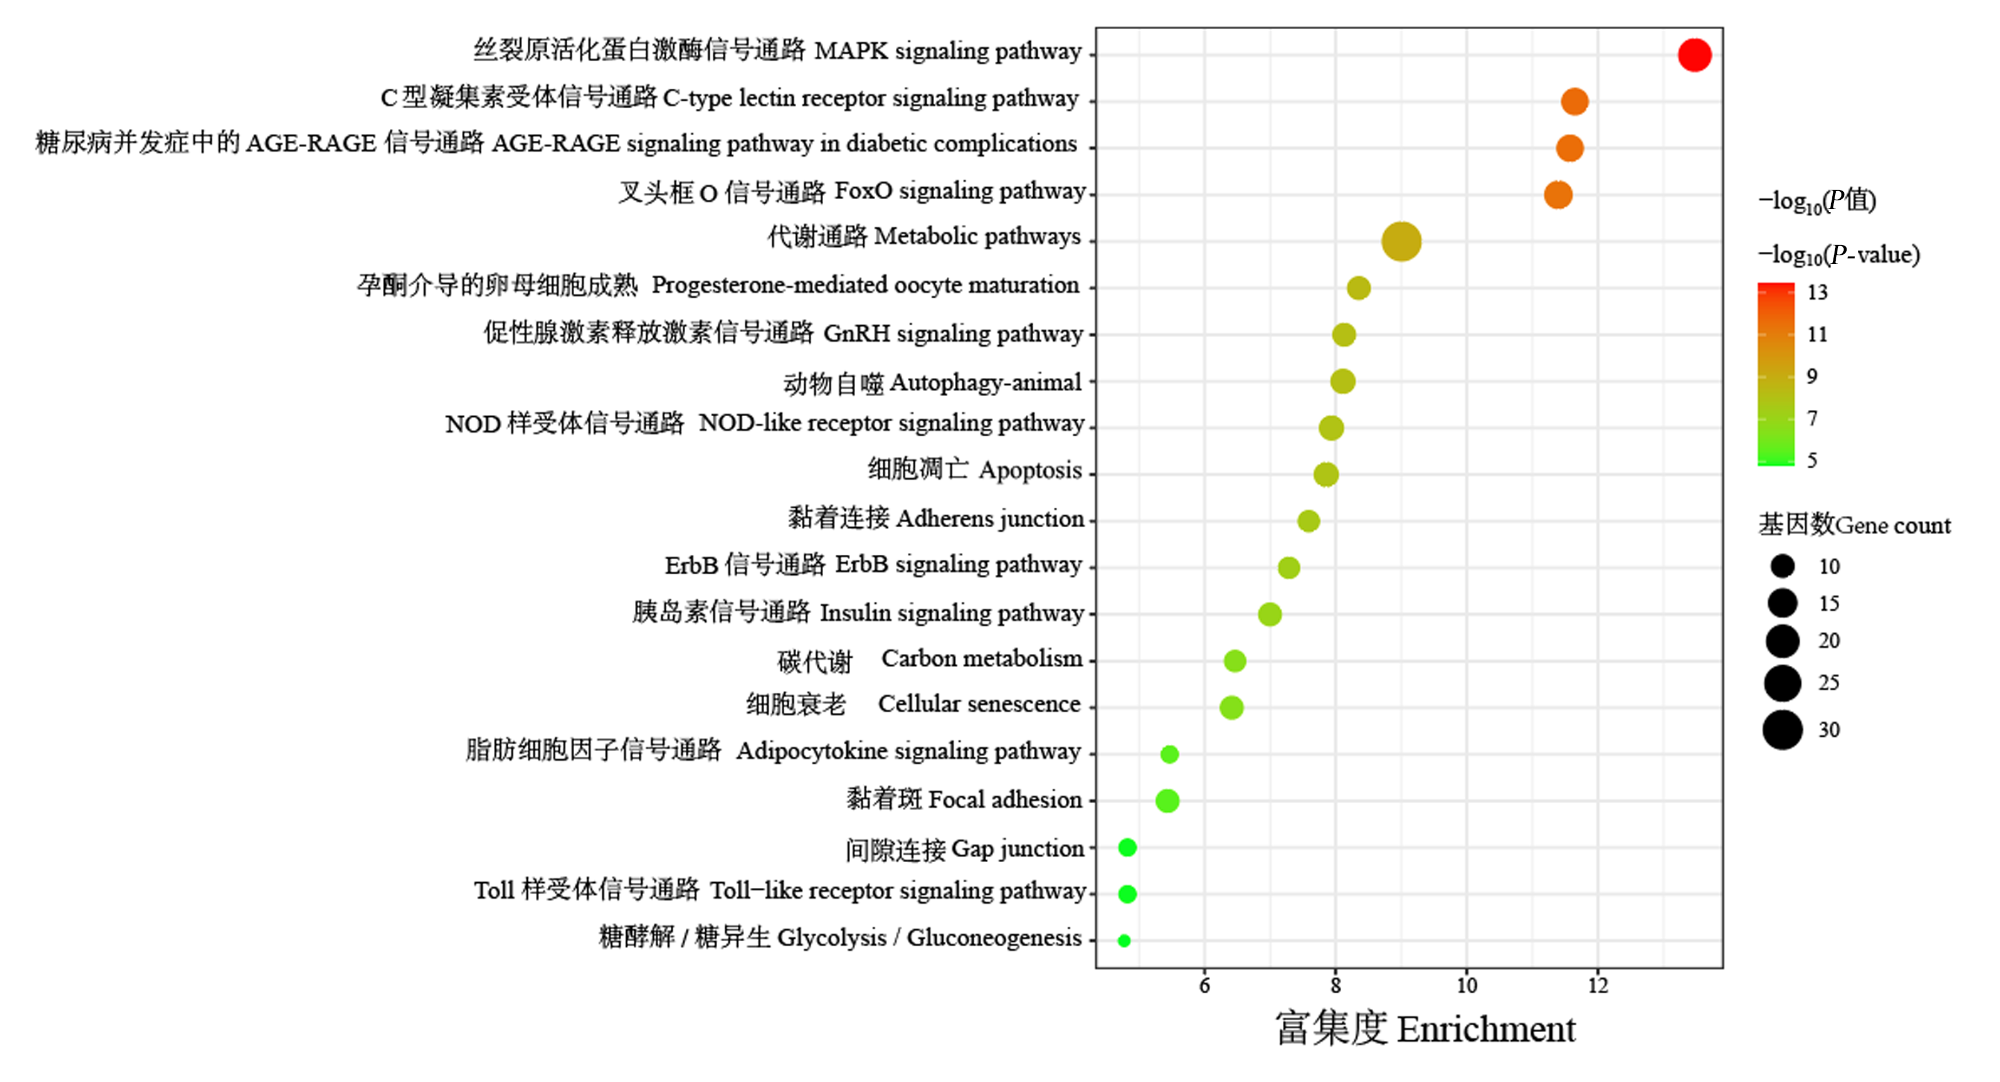
图3图4所示,在P<0.05的情况下,GO功能富集分析共计发现了363个条目,其中243条属于生物过程(biological process,BP),主要涉及基因表达的正向调控、细胞迁移的正向调控等方面;41条属于细胞组分(cell component,CC),主要涉及相同蛋白质结合、ATP结合等方面;79条属于分子功能(molecular function,MF),主要涉及细胞质基质、细胞核等方面;KEGG通路富集分析共计发现了47条信号通路,主要涉及丝裂原活化蛋白激酶(MAPK)信号通路、叉头框O(FOXO)信号通路等,分别取其P值从小到大排序的前20名进行可视化。其中,ERK/FOXO3信号通路(属于MAPK信号通路和FOXO信号通路的交叉通路)与氧化应激调控密切相关,推测其可能是GPS改善热应激肉鸡胸肌氧化损伤的核心通路。
图3 GO功能富集分析

Fig.3 GO functional enrichment analysis

图4 KEGG通路富集分析

Fig.4 KEGG pathway enrichment analysis

2.6 GPS对热应激肉鸡胸肌ERK/FOXO3信号通路关键基因表达的影响

表7可知,在热应激7 d时,与NS组相比,HS组的胸肌FOXO3的mRNA相对表达水平显著提高(P<0.05),MEK2、ERK1/2的mRNA相对表达水平显著降低(P<0.05);在热应激条件下,与HS组相比,GPS-M组和GPS-H组的胸肌FOXO3的mRNA相对表达水平显著降低(P<0.05)。在热应激14 d时,与NS组相比,HS组的胸肌FOXO3的mRNA相对表达水平显著提高(P<0.05),ERK1/2、MEK1、MEK2的mRNA相对表达水平均显著降低(P<0.05);在热应激条件下,与HS组相比,GPS-L组、GPS-M组和GPS-H组的胸肌FOXO3的mRNA相对表达水平显著降低(P<0.05),GPS-M组和GPS-H组的胸肌ERK1/2的mRNA相对表达水平显著提高(P<0.05),GPS-H组的胸肌MEK1、MEK2的mRNA相对表达水平显著提高(P<0.05)。线性和二次回归分析显示,在热应激7 d时,胸肌FOXO3的mRNA相对表达水平与GPS添加量存在线性相关(P<0.05);在热应激14 d时,胸肌ERK1/2的mRNA相对表达水平与GPS添加量存在显著线性和二次曲线相关(P<0.05),FOXO3、MEK1、MEK2的mRNA相对表达水平与GPS添加量存在显著线性相关(P<0.05)。综合分析表明,GPS-H组肉鸡可有效地回调热应激诱导的胸肌ERK/FOXO3信号通路关键基因异常表达。
表7 GPS对热应激肉鸡胸肌ERK/FOXO3信号通路关键基因表达的影响

Table 7 Effects of GPS on expression of key genes in ERK/FOXO3 signaling pathway in breast muscle of broilers under heat stress

项目
Items
组别Groups SEM P1
P1-value
P2P2-value
NS HS GPS-L GPS-M GPS-H 方差分析
ANOVA
线形
Linear
二次
Quadratic
热应激7 d Heat stress for 7 days
叉头框O3蛋白
FOXO3
1.02 1.83a 1.66a 1.22b 1.08b 0.108 0.007 0.004 <0.001 0.749
丝裂原活化蛋
白激酶激酶1
MEK1
1.00 0.69 0.75 0.87 0.92 0.095 0.063 0.502 0.119 0.937
丝裂原活化蛋
白激酶激酶2
MEK2
1.00 0.68 0.91 0.82 0.86 0.067 0.007 0.228 0.148 0.243
细胞外调节蛋
白激酶1/2
ERK1/2
1.00 0.79 0.90 0.90 0.81 0.069 0.003 0.703 0.826 0.241
热应激14 d Heat stress for 14 days
叉头框O3蛋白
FOXO3
1.01 1.84a 1.43b 1.38b 0.83c 0.107 <0.001 0.003 <0.001 0.385
丝裂原活化蛋
白激酶激酶1
MEK1
1.01 0.63b 0.79b 0.85b 1.24a 0.072 0.030 0.002 <0.001 0.081
丝裂原活化蛋
白激酶激酶2
MEK2
1.00 0.62b 0.78b 0.83b 1.14a 0.058 <0.001 0.009 0.001 0.227
细胞外调节蛋
白激酶1/2
ERK1/2
1.00 0.65c 0.71c 0.85b 1.06a 0.042 0.006 <0.001 <0.001 0.030

3 讨论

3.1 GPS对热应激肉鸡生长性能的影响

在动物饲养中,家禽会对持续高温环境产生一系列非特异性防御反应,包括体温升高、食欲减退和生长性能下降[10-11]。生长性能是反映肉鸡健康状况和养殖效益的核心指标,高温会导致肉鸡饲粮摄入减少,并通过破坏能量代谢和诱发体内氧化应激,对生长和发育产生负面影响。Shakeri等[12]研究发现,热应激会导致肉鸡ADG、ADFI显著降低,F/G显著升高,与本试验结果一致。本试验中,饲粮中添加GPS可改善热应激肉鸡的生长性能,其中,中、高剂量GPS的效果更优,这可能与GPS的生长调控功能和抗氧化活性有关[13]

3.2 GPS对热应激肉鸡屠宰性能的影响

热应激会破坏肉鸡机体的生理平衡,导致消化吸收功能紊乱、生长性能下降,进而影响屠宰性能[14]。热应激一方面通过扰乱机体能量代谢,导致肌肉组织营养供给不足,进而降低屠宰率和净膛率;另一方面可通过诱发氧化应激损伤肌细胞,同时促进脂肪异常沉积,影响屠宰性能[15-16]。Pontalti等[17]研究了不同生长速度的肉鸡品种热应激试验,结果显示,热应激显著降低了所有肉鸡品种的屠宰体重、胸肌率和全净膛率,且快生长肉鸡对热应激更为敏感;Suliman等[18]研究表明,热应激显著降低了胸肌率、胴体特征百分比和全净膛率。由于高温环境下肉鸡的代谢率下降,导致能量利用效率降低,过剩的能量以脂肪形式堆积在腹部,造成腹脂率升高。Lan等[19]研究表明,对照组的腹部脂肪相对重量为14.2 g/kg BW,热应激处理后腹部脂肪相对重量显著增加至17.8 g/kg BW,表明热应激显著促进了肉鸡腹部脂肪的堆积。在本研究中,与NS组相比,HS组在热应激7 d时半净膛率显著降低,在热应激14 d时半净膛率、全净膛率均显著降低,腹脂率显著升高,与以上研究结果相符;而在热应激条件下,饲粮中添加GPS在一定程度上改善了热应激造成的屠宰性能下降,且在热应激14 d时效果最优,表明GPS可缓解热应激对肉鸡生长和屠宰性能的抑制作用,且随着热应激时间延长其缓解效果更好。

3.3 GPS对热应激肉鸡肉品质的影响

肉品质是衡量肉鸡产品价值的重要指标,其中熟肉率、肉色、滴水损失和剪切力是评价肉品质的核心指标。热应激导致肉鸡机体产生大量ROS,引发肌细胞膜脂质过氧化,细胞内钙离子浓度升高,加速肌浆蛋白变性和水分流失,导致肌肉pH下降,L*值升高,滴水损失和剪切力增加[20]。Liu等[21]研究表明,热应激会导致肉鸡体内ROS水平增加,引发脂质过氧化,破坏细胞膜结构(包括肌浆网),从而增加细胞膜通透性,导致细胞内水分流失增加,这与本研究中热应激7和14 d时HS组胸肌滴水损失显著提高的结论一致。本研究中,在热应激7和14 d时,与NS组相比,HS组胸肌L*值有所升高,而a*值显著降低,这一现象通常与肉鸡处于应激状态时的苍白软变形肉(PSE肉)有关,热应激加速了糖原消耗,导致肌肉pH下降,颜色变浅,红色素分解[22];在热应激7 d时,与NS组相比,HS组的胸肌熟肉率降低,剪切力有所增加,这可能与热应激导致的蛋白质变性、结缔组织增生以及肌肉纤维结构破坏有关[23]。本试验结果显示,热应激严重破坏了肉鸡肉品质,而添加不同剂量GPS后,无论是短期(7 d)还是长期(14 d)的热应激,GPS均能改善肉鸡肉品质,低剂量的GPS在长期热应激下对肉色和水分平衡的改善效果最好,而高剂量的GPS在短期热应激下对持水性和肉质结构(剪切力)的提升效果更佳。这一结果与GPS的抗氧化功能密切相关,Kim等[24]研究指出,绞股蓝皂苷L(Gypenoside L)能通过上调过氧化物酶体增殖物激活受体γ共激活因子-1α(PGC-1α)含量来促进小鼠成肌细胞(C2C12)骨骼肌细胞的分化,并激活腺苷酸活化蛋白激酶(AMPK)/P38/沉默信息调节因子1(SIRT1)信号通路,从而增强线粒体代谢和运动性能。

3.4 GPS对热应激肉鸡胸肌氧化损伤指标的影响

氧化损伤是热应激导致肉鸡肉品质下降的重要因素之一,MDA是脂质过氧化的终产物,其含量升高直接反映了细胞膜受损程度[25]。本试验结果显示,与NS组相比,HS组在热应激7和14 d的胸肌MDA含量均显著提高。热应激不仅增加了氧化压力,也抑制了肉鸡体内的内源性抗氧化酶活性。CAT是清除过氧化氢的关键酶,Aryal等[26]研究指出,热应激条件下,肝脏和肌肉中CAT活性往往呈下降趋势。本试验中,与NS组相比,HS组在热应激7和14 d时胸肌CAT活性显著降低。SOD是清除超氧阴离子的首要酶,T-AOC代表了机体整体的抗氧化能力。本试验中,与NS组相比,HS组在热应激14 d时胸肌SOD活性和T-AOC均显著下降,进一步表明肉鸡的整体抗氧化防御能力被削弱[27]。饲粮中添加不同剂量GPS后,在热应激7和14 d时胸肌MDA含量显著降低,在热应激14 d胸肌时T-AOC显著提高,不同剂量GPS对CAT和SOD活性的改善存在差异;虽然低和高剂量GPS均表现出对热应激肉鸡胸肌氧化损伤的保护作用,但综合来看高剂量GPS的恢复效果更好。

3.5 GPS作用的核心信号通路预测与验证

为进一步明确GPS改善热应激肉鸡肉品质的分子机制,本研究通过网络药理学方法进行预测,结果显示MAPK、FOXO信号通路可能是GPS作用的核心通路。FOXO3是叉头框蛋白家族的重要成员,参与氧化应激反应、细胞凋亡、能量代谢等多种生理过程[28-29]。已有研究表明,热应激可诱导FOXO3基因的表达,FOXO3可通过调控下游凋亡相关基因的表达,促进细胞凋亡,加重机体损伤[30-32]。本研究发现,与NS组相比,在热应激7和14 d时,HS的胸肌FOXO3的mRNA相对表达水平显著提高,而饲粮中添加GPS可下调FOXO3的mRNA相对表达水平,这表明GPS可通过抑制FOXO3基因的表达,减少细胞凋亡,缓解热应激对肉鸡的氧化损伤。MAPK/ERK信号通路是机体重要的应激响应通路,参与细胞增殖、分化、凋亡等过程[33-35]。ERK1/2、MEK1、MEK2是该信号通路的关键激酶,MEK1、MEK2可磷酸化激活ERK1/2,进而调控下游基因的表达,参与机体的应激适应[36-37]。本研究发现,与NS组相比,在热应激14 d时,HS组的胸肌ERK1/2、MEK1、MEK2的mRNA相对表达水平显著降低,这表明长期热应激可抑制ERK/MAPK信号通路的活性,影响机体的应激适应能力;而饲粮中添加GPS可上调胸肌ERK1/2、MEK1、MEK2的mRNA相对表达水平,激活ERK/MAPK信号通路,从而增强机体对热应激的适应能力,添加高剂量的GPS在热应激14 d时效果最好。
综合来看,GPS缓解热应激肉鸡肌肉氧化损伤的效应,可能与FOXO3基因表达下调(抑制细胞凋亡)及ERK/MAPK信号通路相关基因表达上调(增强机体应激适应能力)密切相关,进而改善肉鸡生长性能、屠宰性能、肉品质,并增强机体抗氧化能力。

4 结论

饲粮中添加GPS可缓解热应激造成的肉鸡生长性能、屠宰性能和肉品质下降,提高机体抗氧化能力;饲粮中添加GPS后ERK/FOXO3信号通路活性发生变化,推测与GPS的保护效应密切相关。在本试验条件下,饲粮中添加450 mg/kg的GPS,在热应激14 d时对肉鸡胸肌氧化损伤的缓解效果最优。
[1]
OLUWAGBENGA E M, FRALEY G S. Heat stress and poultry production:a comprehensive review[J]. Poultry Science, 2023, 102(12):103141.

DOI

[2]
BRUGALETTA G, TEYSSIER J R, ROCHELL S J, et al. A review of heat stress in chickens.Part Ⅰ:insights into physiology and gut health[J]. Frontiers in Physiology, 2022, 13:934381.

DOI

[3]
HUANG Y Y, CAI H Y, HAN Y S, et al. Mechanisms of heat stress on neuroendocrine and organ damage and nutritional measures of prevention and treatment in poultry[J]. Biology, 2024, 13(11):926.

DOI

[4]
VANDANA G D, SEJIAN V, LEES A M, et al. Heat stress and poultry production:impact and amelioration[J]. International Journal of Biometeorology, 2021, 65(2):163-179.

DOI

[5]
CAI H, LIANG Q L, GE G Q. Gypenoside attenuates β amyloid-induced inflammation in N9 microglial cells via SOCS1 signaling[J]. Neural Plasticity, 2016, 2016(1):6362707.

[6]
李明秀, 张秋娥, 王晓萌, 等. 绞股蓝降糖作用与肠道菌群多样性和肠黏膜屏障关系的实验研究[J]. 中国微生态学杂志, 2025, 37(1):45-55,60.

LI M X, ZHANG Q E, WANG X M, et al. Exploration of the intestinal mucosal barrier and blood glucose impact by Gynostemma pentaphyllum in db/db mice based on gut microbiota diversity[J]. Chinese Journal of Microecology, 2025, 37(1):45-55,60. (in Chinese)

[7]
林燕平, 黄佳纯, 陈桐莹, 等. 绞股蓝皂苷减轻H2O2诱导大鼠成骨细胞氧化应激损伤的机制[J]. 中国组织工程研究, 2020, 24(23):3649-3653.

LIN Y P, HUANG J C, CHEN T Y, et al. Mechanism by which gypenosides alleviate oxidative stress injury induced by H2O2 in rat osteoblasts[J]. Chinese Journal of Tissue Engineering Research, 2020, 24(23):3649-3653. (in Chinese)

[8]
ABDURRAHMAN A, REDDY D. A scoping review of the impact of heat stress on the organs of the Japanese quail (Coturnix japonica)[J]. The Journal of Basic and Applied Zoology, 2023, 84(1):8.

DOI

[9]
FASANO C, DISCIGLIO V, BERTORA S, et al. FOXO3a from the nucleus to the mitochondria:a round trip in cellular stress response[J]. Cells, 2019, 8(9):1110.

DOI

[10]
LI L L, LU Z, WANG Y L, et al. Genistein alleviates chronic heat stress-induced lipid metabolism disorder and mitochondrial energetic dysfunction by activating the GPR30-AMPK-PGC-1α signaling pathways in the livers of broiler chickens[J]. Poultry Science, 2024, 103(1):103251.

DOI

[11]
TANG L P, LIU Y L, ZHANG J X, et al. Heat stress in broilers of liver injury effects of heat stress on oxidative stress and autophagy in liver of broilers[J]. Poultry Science, 2022, 101(10):102085.

DOI

[12]
SHAKERI M, COTTRELL J J, WILKINSON S, et al. Betaine and antioxidants improve growth performance,breast muscle development and ameliorate thermoregulatory responses to cyclic heat exposure in broiler chickens[J]. Animals, 2018, 8(10):162.

DOI

[13]
沈杰, 徐丹, 刘振彬, 等. 绞股蓝提取物的体外及体内抗氧化活性评价[J/OL]. 陕西科技大学学报, 2015:1-12(2025-12-09)[2026-02-01].https://doi.org/10.19481/j.cnki.issn2096-398x.20251209.001.

SHEN J, XU D, LIU Z B, et al. The evaluation of antioxidant activity of Gynostemma pentaphyllum extract in vitro and in vivo[J/OL]. Journal of Shanxi University of Science & Technology, 2015:1-12(2025-12-09)[2026-02-01].https://doi.org/10.19481/j.cnki.issn2096-398x.20251209.001. (in Chinese)

[14]
TEYSSIER J R, PREYNAT A, COZANNET P, et al. Constant and cyclic chronic heat stress models differentially influence growth performance,carcass traits and meat quality of broilers[J]. Poultry Science, 2022, 101(8):101963.

DOI

[15]
MA B B, ZHANG L, LI J L, et al. Heat stress alters muscle protein and amino acid metabolism and accelerates liver gluconeogenesis for energy supply in broilers[J]. Poultry Science, 2021, 100(1):215-223.

DOI PMID

[16]
LI X M, ZHAO X, YU M, et al. Effects of heat stress on breast muscle metabolomics and lipid metabolism related genes in growing broilers[J]. Animals, 2024, 14(3):430.

DOI

[17]
PONTALTI E, PIRRONE F, ZOTTE A D, et al. Impact of heat stress on growth performance and carcass traits of fast- medium- and slow-growing broiler chicken genotypes[J]. Poultry Science, 2025, 104(10):105509.

DOI

[18]
SULIMAN G M, HUSSEIN E O S, AL-OWAIMER A N, et al. Betaine and nano-emulsified vegetable oil supplementation for improving carcass and meat quality characteristics of broiler chickens under heat stress conditions[J]. Frontiers in Veterinary Science, 2023, 10:1147020.

DOI

[19]
LAN R X, WANG Y C, WEI L L, et al. Heat stress exposure changed liver lipid metabolism and abdominal fat deposition in broilers[J]. Italian Journal of Animal Science, 2022, 21(1):1326-1333.

DOI

[20]
YUE K, CAO Q Q, SHAUKAT A, et al. Insights into the evaluation,influential factors and improvement strategies for poultry meat quality:a review[J]. NPJ Science of Food, 2024, 8(1):62.

DOI

[21]
LIU Z, LIU Y S, XING T, et al. Transcriptome analysis reveals the mechanism of chronic heat stress on meat quality of broilers[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):110.

DOI PMID

[22]
LU Z, HE X F, MA B B, et al. Dietary taurine supplementation improves breast meat quality in chronic heat-stressed broilers via activating the Nrf2 pathway and protecting mitochondria from oxidative attack[J]. Journal of the Science of Food and Agriculture, 2019, 99(3):1066-1072.

DOI PMID

[23]
LU J W, LI H X, YU D B, et al. Heat stress inhibits the proliferation and differentiation of myoblasts and is associated with damage to mitochondria[J]. Frontiers in Cell and Developmental Biology, 2023, 11:1171506.

DOI

[24]
KIM Y H, JUNG J I, JEON Y E, et al. Gynostemma pentaphyllum extract and gypenoside L enhance skeletal muscle differentiation and mitochondrial metabolism by activating the PGC-1α pathway in C2C12 myotubes[J]. Nutrition Research and Practice, 2022, 16(1):14-32.

DOI

[25]
HUANG Y W, LEI Y, GONG Z X, et al. Feeding Eucommia ulmoides extract enhances protection against high-temperature stress in chicks[J]. Poultry Science, 2024, 103(7):103827.

DOI

[26]
ARYAL B, KWAKYE J, ARIYO O W, et al. Major oxidative and antioxidant mechanisms during heat stress-induced oxidative stress in chickens[J]. Antioxidants, 2025, 14(4):471.

DOI

[27]
赵云飞, 金太花, 魏明吉, 等. 热应激影响家禽肠道健康的研究进展[J]. 中国家禽, 2024, 46(12):116-123.

ZHAO Y F, JIN T H, WEI M J, et al. Research progress on effects of heat stress on intestinal health in poultry[J]. China Poultry, 2024, 46(12):116-123. (in Chinese)

[28]
RUSSO R, RAGUSA M A, ARANCIO W, et al.Gene, protein,and in silico analyses of FOXO,an evolutionary conserved transcription factor in the sea urchin Paracentrotus lividus[J]. Genes, 2024, 15(8):1078.

DOI

[29]
SCHMITT-NEY M. The FOXO’s advantages of being a family:considerations on function and evolution[J]. Cells, 2020, 9(3):787.

DOI

[30]
FENG Y C, SUO D C, GONG P, et al. Integrated multi-omics analysis reveals the mechanisms of intestinal cell injury under different levels of heat stress[J]. International Journal of Molecular Sciences, 2025, 26(12):5798.

DOI

[31]
付文卓, 张磊, 乔芳芳, 等. 神经元细胞氧化应激模型中FOXO3基因及其下游凋亡基因BIM表达研究[J]. 黑龙江畜牧兽医, 2021(5):17-21.

FU W Z, ZHANG L, QIAO F F, et al. Study on FOXO3 gene and its downstream apoptosis gene BIM expression in neuronal oxidative stress model[J]. Heilongjiang Animal Science and Veterinary Medicine, 2021(5):17-21. (in Chinese)

[32]
LIU X, MA Z H, WANG Y F, et al. Heat stress exposure cause alterations in intestinal microbiota,transcriptome,and metabolome of broilers[J]. Frontiers in Microbiology, 2023, 14:1244004.

DOI

[33]
张登甜, 蒋树龙. MAPK/ERK信号通路在肺癌耐药中的研究进展[J]. 肿瘤学杂志, 2022, 28(3):233-237.

ZHANG D T, JIANG S L. Mechanisms of drug resistance mediated by MAPK/ERK signaling pathway in lung cancer[J]. Journal of Chinese Oncology, 2022, 28(3):233-237. (in Chinese)

[34]
贾璐璐, 李颖, 印加乐, 等. 中医药调控BDNF/TrkB通路治疗帕金森病的研究进展[J]. 中国实验方剂学杂志, 2025, 31(4):315-322.

JIA L L, LI Y, YIN J L, et al. Treatment of Parkinson’s disease with traditional Chinese medicine by regulating BDNF/TrkB signaling pathway:a review[J]. Chinese Journal of Experimental Traditional Medical Formulae, 2025, 31(4):315-322. (in Chinese)

[35]
LI Y, DING H Y, LIU L H, et al. Non-esterified fatty acid induce dairy cow hepatocytes apoptosis via the mitochondria-mediated ROS-JNK/ERK signaling pathway[J]. Frontiers in Cell and Developmental Biology, 2020, 8:245.

DOI PMID

[36]
DEGIRMENCI U, WANG M, HU J C. Targeting aberrant RAS/RAF/MEK/ERK signaling for cancer therapy[J]. Cells, 2020, 9(1):198.

DOI

[37]
ROSKOSKI R Jr. ERK1/2 MAP kinases:structure,function,and regulation[J]. Pharmacological Research, 2012, 66(2):105-143.

DOI

Outlines

/