RESEARCH PAPER

Effects of Rumen-Protected Protease on Growth Performance, Nutrient Apparent Digestibility, and Serum Biochemical Indices and Metabolites of Beef Cattle

  • CUI Shuaipeng , 1 ,
  • WEN Di 1 ,
  • CHEN Yuyi 1 ,
  • LOU Xiaojing 2 ,
  • NIU Yujie 1 ,
  • LI Fengming , 1, *
Expand
  • 1 Xinjiang Branch of National Center for International Research on Animal Gut Nutrition, College of Animal Science, Xinjiang Agricultural University, Urumqi 830052, China
  • 2 Bachu Fenghe Animal Husbandry Development Co., Ltd., Bachu 843800, China
* professor, E-mail:

Received date: 2026-05-17

  Online published: 2026-09-12

Abstract

This experiment was conducted to investigate the effects of rumen-protected protease on growth performance, nutrient apparent digestibility, and serum biochemical indices and metabolites of Simmental beef cattle. Forty-five 10-month-old Simmental beef bulls with similar body weight [(250.69±29.62) kg] and good health status were randomly divided into 3 groups with 15 replicates per group and one bull per replicate. The control (C) group was fed a basal diet, while the low-dose (L) group and high-dose (H) group were fed the basal diet supplemented with 5 and 10 g/(d·head) of rumen-protected protease, respectively. The pre-trial period lasted 14 days, and the formal trial lasted 38 days. The results showed as follows: 1) there were no significant differences in growth performance or nutrient apparent digestibility among all groups (P>0.05). 2) Compared with the C group, the serum urea nitrogen (UN) content of the L and H groups was significantly decreased (P<0.05), and the serum glucose (GLU) content of the L and H groups was significantly increased (P<0.05). Compared with the C group, the serum total cholesterol (TC) and low-density lipoprotein cholesterol (LDL-C) contents and alanine aminotransferase (ALT) activity of the L group were significantly lower (P<0.05). The serum ALT activity of the L group was significantly lower than that of the C and H groups (P<0.05). The serum aspartate aminotransferase (AST) activity of the H group was significantly higher than that of the L group (P<0.05). 3) Kyoto Encyclopedia of Genes and Genomes (KEGG) enrichment analysis of serum differential metabolites showed that the serum differential metabolites between the L and C groups were significantly enriched in metabolic pathways such as tryptophan metabolism and citrate cycle (P<0.05); those between the H and C groups were significantly enriched in citrate cycle and 2-oxocarboxylic acid metabolism (P<0.05); and those between the H and L groups were significantly enriched in biosynthesis of unsaturated fatty acids and arachidonic acid metabolism (P<0.05). In conclusion, under the conditions of this experiment, the appropriate supplemental level of rumen-protected protease in the diet of Simmental beef cattle is 10 g/(d·head).

Cite this article

CUI Shuaipeng , WEN Di , CHEN Yuyi , LOU Xiaojing , NIU Yujie , LI Fengming . Effects of Rumen-Protected Protease on Growth Performance, Nutrient Apparent Digestibility, and Serum Biochemical Indices and Metabolites of Beef Cattle[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 6745 -6760 . DOI: 10.12418/CJAN2026.540

随着畜牧业的快速发展,饲料资源尤其是蛋白质饲料资源日益短缺。豆粕是畜禽饲粮中主要的植物性蛋白质来源,但其生产原料大豆在我国高度依赖进口,这一现状严重制约着我国畜牧业的可持续发展[1]。提高饲粮中蛋白质的利用效率已成为肉牛营养研究与生产实践领域亟待解决的重要问题,对降低饲养成本、提升养殖效益以及促进畜牧业可持续发展具有重大意义。
外源蛋白酶能够水解饲粮中大分子蛋白质生成小肽和氨基酸;降解植物原料中的蛋白酶抑制剂、抗原蛋白和不良非蛋白氨基酸等抗营养因子,缓解抗营养因子对内源酶活性的抑制作用;通过分解细胞壁结构蛋白提高营养物质的消化、吸收和利用,提高饲料转化效率,进而改善动物的生长性能[2-3]。Lee等[4]研究发现,在低蛋白质饲粮条件下,添加蛋白酶能够降低豆粕中胰蛋白酶抑制剂等抗营养因子带来的负面影响,进而提高肉鸡粗蛋白质(CP)和大多数氨基酸的消化率。Eun等[5]研究发现,饲粮中添加160 mg/kg蛋白酶能够显著提高泌乳荷斯坦奶牛干物质、有机物、淀粉和酸性洗涤纤维消化率。
在反刍动物中,蛋白质一部分在瘤胃内被瘤胃微生物降解为小肽、氨基酸和氨,进而被微生物重新合成为微生物蛋白,最终在小肠被消化吸收;另一部分未被瘤胃微生物降解的蛋白质直接进入小肠被消化吸收。这种“分解-再合成”过程使反刍动物能够利用非蛋白氮,通过微生物转化将其纳入自身蛋白质合成,进而进入机体蛋白质代谢循环,显著提高其对饲料氮源的利用效率[6-7]。外源蛋白酶易被瘤胃微生物降解为小肽和氨基酸[8],难以到达小肠发挥作用。采用物理或化学方法包裹外源蛋白酶,可避免其在瘤胃中降解、降低对瘤胃微生物的干扰,使其靶向到达皱胃和小肠,催化饲粮蛋白质水解为小肽和氨基酸,进而促进其在皱胃和小肠的消化吸收[9-11]。本实验室前期研究发现,饲粮中添加10 g/(头·d)过瘤胃蛋白酶能够显著提高泌乳奶牛的产奶量[12]。这一结果表明,包被技术可能是提高反刍动物蛋白质消化吸收的有效方法。
近年来,外源蛋白酶主要在肉鸡、猪等单胃动物饲粮中应用,而在肉牛等反刍动物上鲜有报道,因此本试验以西门塔尔肉牛为研究对象,探究添加不同剂量的过瘤胃蛋白酶对西门塔尔肉牛生长性能、营养物质表观消化率及血清生化指标和代谢物的影响,为过瘤胃蛋白酶在西门塔尔肉牛生产中的应用提供理论依据和数据支持。

1 材料与方法

1.1 试验材料

试验选用的过瘤胃蛋白酶活性为20 000 U/g,其过瘤胃率和小肠释放率均为85.0%。

1.2 试验设计

本试验由新疆农业大学实验动物福利伦理委员会审批(批准号:2024019)。
选取45头体重[(250.69±29.62) kg]相近、健康状况良好的10月龄西门塔尔肉公牛,随机分为3组,每组15个重复,每个重复1头。对照(C)组饲喂基础饲粮,低剂量(L)组、高剂量(H)组分别饲喂在基础饲粮的基础上添加5、10 g/(d·头)过瘤胃蛋白酶(添加量参考实验室前期研究[12]和企业产品推荐量)的饲粮。预试期14 d,正试期38 d。

1.3 饲养管理

本试验于2024年8月10日至2024年10月10日在新疆维吾尔自治区喀什地区巴楚县丰和畜牧业发展有限公司进行。所有试验牛均采用拴系饲养,试验期间环境条件和饲养管理方式保持一致,环境温度为(22.32±3.47) ℃,每天10:00和19:00各饲喂1次,动物自由采食和饮水,每天定时清理圈舍和饮水槽。基础饲粮采用养殖场常规的全混合日粮(TMR),其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)

项目Items 含量Content
原料Ingredients
玉米秸秆Corn stalk 16.63
玉米青贮Corn silage 63.69
玉米Corn 9.91
豆粕Soybean meal 2.83
棉籽粕Cottonseed meal 2.83
棉籽Cottonseed 1.77
预混料Premix1) 1.42
食盐NaCl 0.21
碳酸氢钠NaHCO3 0.71
合计Total 100.00
营养水平Nutrient levels2)
总能GE/(MJ/kg) 18.15
干物质DM 92.92
有机物OM 90.22
粗蛋白质CP 9.07
粗脂肪EE 1.36
中性洗涤纤维NDF 32.01
酸性洗涤纤维ADF 16.44

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 2 520.00 IU,VD3840.00 IU,DL-α-生育酚乙酸酯 DL-α-tocopherol acetate 22.40 mg,烟酸 nicotinic acid 4.48 mg,Ca 2 520.00 mg,P 560.00 mg,NaCl 2 240.00 mg,Mn 39.20 mg,Fe 19.60 mg,Zn 30.80 mg,Cu 3.92 mg,Se 0.11 mg,I 1.12 mg,Co 0.53 mg。

2)营养水平均为测定值。All nutrient levels were measured values.

1.4 样品采集与指标测定

1.4.1 生长性能的测定

在正试期的第1天和第38天晨饲前,测量并记录每头试验牛的体重;正试期间,每天统计每头试验牛的投喂量和槽内余料量,计算平均干物质采食量(ADMI)、平均日增重(ADG)、料重比(F/G)。

1.4.2 饲粮营养水平和营养物质表观消化率的测定

在正试期第32天,采用四分法采集饲粮并混合均匀;在正试期第34~37天的00:00、06:00、12:00、24:00分别采集每头试验牛的直肠粪便,每次收集200 g,其中100 g加入粪样鲜样体积1/4的10%酒石酸溶液进行固氮,用于粗蛋白质含量的测定,剩余粪样用于其他营养成分含量测定。将收集的饲粮及粪便样品放置于-20 ℃冰箱保存,待测。采用内源指示剂法测定营养物质表观消化率,饲粮及粪样中干物质(DM)含量参照GB/T 6435—2014方法进行测定,粗灰分(Ash)含量参照GB/T 6438—2007方法进行测定,粗蛋白质含量参照GB/T 6432—2018方法进行测定,粗脂肪(EE)含量参照GB/T 6433—2006方法进行测定,中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)含量参照Van Soest等[13]的方法进行测定,总能(GE)参照GB/T 45104—2024方法进行测定,有机物含量为干物质含量与粗灰分含量之差,盐酸不溶灰分(AIA)含量参照GB/T 23742—2009方法进行测定。营养物质表观消化率计算公式如下:
Y(%)=[1-( $\frac{\mathit{M}}{\mathit{E}}$× $\frac{\mathit{F}}{\mathit{N}}$)]×100。
式中:Y为某营养物质表观消化率;M为粪便中该营养物质含量;E为饲粮中该营养物质含量;F为饲粮中盐酸不溶灰分含量;N为粪便中盐酸不溶灰分含量。

1.4.3 血清生化指标的测定

在正试期第38天晨饲前,所有试验牛通过颈静脉采血10 mL,静置后,1 500×g离心15 min,取上清液,分别置于-20 ℃冰箱和液氮保存,用于血清生化指标测定和代谢组学分析。
血清生化指标包括尿素氮(UN)、总蛋白(TP)、白蛋白(ALB)、球蛋白(GLB)、总胆固醇(TC)、甘油三脂(TG)、低密度脂蛋白胆固醇(LDL-C)、高密度脂蛋白胆固醇(HDL-C)、葡萄糖(GLU)含量及谷丙转氨酶(ALT)和谷草转氨酶(AST)活性,并计算白球比(A/G)。所有血清生化指标均通过南京建成生物工程研究所的试剂盒测定,操作过程按照试剂盒说明书进行。

1.4.4 血清代谢组学分析

1.4.4.1 样品预处理

每组随机选取10头试验牛的血清样本,将样本从液氮中取出,使其在室温下解冻。取100 μL血清样本置于EP管中,加入400 μL 80%甲醇水溶液;涡旋振荡,冰浴静置5 min,15 000×g、4 ℃条件下离心20 min;取一定量的上清加质谱级水稀释至甲醇含量为53%,再经15 000×g、4 ℃条件下离心20 min,收集上清用于液相色谱-质谱(LC-MS)分析。

1.4.4.2 色谱条件

色谱柱为Hypersil Gold column(C18,Thermo Fisher Scientific,美国),柱温为40 ℃,流速为0.2 mL/min,流动相A为0.1%(v/v)甲酸,流动相B为甲醇。色谱梯度洗脱程序见表2
表2 液相色谱中流动相的梯度洗脱程序

Table 2 Gradient elution procedure for mobile phases in liquid chromatography

时间
Time/min
流动相A
Mobile phase A
流动相B
Mobile phase B
0 98 2
1.5 98 2
3.0 15 85
10.0 0 100
10.1 98 2
11.0 98 2
12.0 98 2

1.4.4.3 质谱条件

质荷比(m/z)扫描范围为100~1 500,喷雾电压为3.5 kV,鞘气流速为35 psi,辅助气流速为10 L/min,离子传输管温度为320 ℃,离子导入射频电平60,辅助气加热器温度为350 ℃。

1.4.4.4 数据处理与代谢物鉴定

将原始数据文件经过ProteoWizard工具转换为mzXML格式,先采用XCMS程序进行色谱峰提取及峰定量,通过保留时间、质荷比等参数,对不同样本进行峰对齐;然后根据设置质量偏差为10 ppm(1×10⁻⁵),并结合加合离子信息,将所得特征与高质量二级谱图数据库进行比对,进行代谢物鉴定。随后用空白样本去除背景离子,对原始定量结果进行标准化处理,得到相对峰面积;并将质量控制(QC)样本中相对峰面积变异系数(CV)>30%的化合物删除,最后得到代谢物的鉴定和相对定量结果。
多元统计分析中,使用代谢组学数据处理软件metaX对数据进行转换后,分别进行主成分分析(PCA)和偏最小二乘法判别分析(PLS-DA),进而得每个代谢物的变量重要性投影(VIP)值。单变量分析中,基于t检验计算各代谢物在组间统计学显著性,差异代谢物筛选标准为VIP>1,P<0.05且差异倍数(FC)>1.2。使用京都基因与基因组百科全书(KEGG)数据库(https://www.genome.jp/kegg/pathway.html)、人类代谢组数据库(HMDB, https://hmdb.ca/metabolites)和脂质代谢物与通路研究计划(LIPID MAPS)数据库(http://www.lipidmaps.org/)对全部已鉴定代谢物进行注释。最后,基于筛选出的差异代谢物情况,使用Spearman相关性分析解析差异代谢物相对丰度与生长性能、血清生化指标之间的相关性。

1.5 数据统计与分析

试验数据采用Excel 2016进行初步统计和分析,之后用SPSS 19.0软件对试验数据进行单因素方差分析,并用Duncan氏法进行多重比较。结果数据用平均值和均值标准误(SEM)表示,P<0.05表示差异显著。

2 结果与分析

2.1 过瘤胃蛋白酶对肉牛生长性能的影响

表3可知,各组间末重、ADMI、ADG和F/G均无显著差异(P>0.05);其中,与C组相比,L组和H组的ADG数值上分别增加了5.77%和23.08%,F/G数值上分别减少了9.42%和18.61%。
表3 过瘤胃蛋白酶对肉牛生长性能的影响

Table 3 Effects of rumen-protected protease on growth performance of beef cattle

项目
Items
组别Groups 均值标准误
SEM
P
P-value
C L H
初重IBW/kg 254.07 247.64 250.36 4.571 0.853
末重FBW/kg 273.93 268.71 274.86 4.663 0.852
平均干物质采食量ADMI/kg 6.17 6.29 6.72 0.109 0.100
平均日增重ADG/kg 0.52 0.55 0.64 0.025 0.126
料重比F/G 13.38 12.12 10.89 0.649 0.300

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 过瘤胃蛋白酶对肉牛营养物质表观消化率的影响

表4可知,各组间干物质、有机物、粗蛋白质、粗脂肪、中性洗涤纤维、酸性洗涤纤维和总能的表观消化率均无显著差异(P>0.05)。
表4 过瘤胃蛋白酶对肉牛营养物质表观消化率的影响

Table 4 Effects of rumen-protected protease on nutrient apparent digestibility of beef cattle

项目
Items
组别Groups 均值标准误
SEM
P
P-value
C L H
干物质DM 57.79 57.75 55.90 1.084 0.740
有机物OM 59.79 60.38 55.70 1.277 0.278
粗蛋白质CP 55.02 56.89 55.51 0.986 0.744
粗脂肪EE 60.22 63.93 61.50 2.218 0.803
中性洗涤纤维NDF 47.84 48.69 41.85 2.067 0.356
酸性洗涤纤维ADF 45.75 47.15 39.43 2.180 0.321
总能GE 65.90 65.40 64.46 1.113 0.876

2.3 过瘤胃蛋白酶对肉牛血清生化指标的影响

表5可知,与C组相比,L组和H组血清UN含量显著降低(P<0.05);L组和H组血清GLU含量显著升高(P<0.05),分别升高了15.08%和11.73%;L组血清TC和LDL-C含量及ALT活性显著降低(P<0.05);L组和H组血清AST活性无显著差异(P>0.05),但H组血清AST活性显著高于L组(P<0.05);H组血清TC和LDL-C含量及ALT活性无显著差异(P>0.05)。
表5 过瘤胃蛋白酶对肉牛血清生化指标的影响

Table 5 Effects of rumen-protected protease on serum biochemical indices of beef cattle

项目
Items
组别Groups 均值标准误
SEM
P
P-value
C L H
总蛋白TP/(g/L) 67.88 68.41 67.51 0.507 0.775
白蛋白ALB/(g/L) 31.84 30.49 31.46 0.280 0.126
球蛋白GLB/(g/L) 35.33 37.93 36.05 0.646 0.242
白球比A/G 0.89 0.81 0.89 0.019 0.154
尿素氮UN/(mmol/L) 1.49a 1.19b 1.21b 0.054 0.039
谷丙转氨酶ALT/(U/L) 37.14a 29.36b 37.71a 1.184 0.003
谷草转氨酶AST/(U/L) 79.64ab 71.14b 88.93a 2.380 0.007
葡萄糖GLU/(mmol/L) 3.58b 4.12a 4.00a 0.081 0.014
甘油三酯TG/(mmol/L) 0.28 0.28 0.30 0.010 0.586
总胆固醇TC/(mmol/L) 2.72a 2.13b 2.48ab 0.089 0.023
高密度脂蛋白胆固醇HDL-C/(mmol/L) 2.10 1.27 1.40 0.216 0.250
低密度脂蛋白胆固醇LDL-C/(mmol/L) 0.45a 0.32b 0.41a 0.020 0.013

2.4 过瘤胃蛋白酶对肉牛血清代谢物的影响

2.4.1 PCA

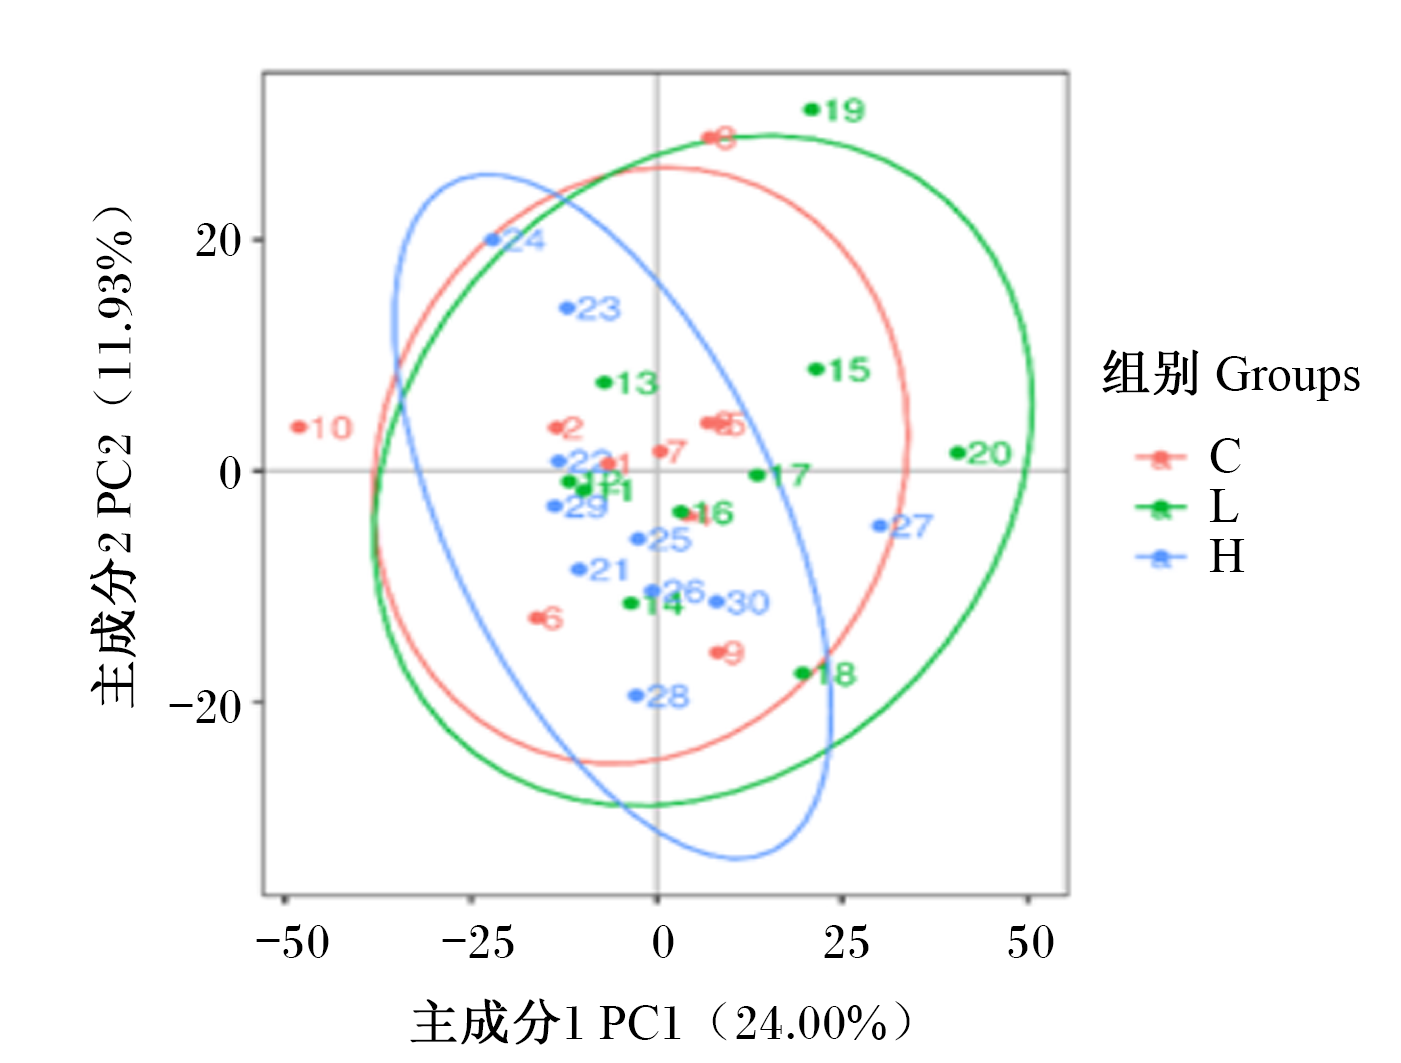
由PCA(图1)可知,主成分1(PC1)贡献率为24.00%,主成分2(PC2)贡献率为11.93%,各组间血清样本有分离趋势,但存在明显重叠现象,进一步运用PLS-DA进行分析。
图1 血清代谢物PCA得分图

Fig.1 PCA score plot of serum metabolites

2.4.2 PLS-DA

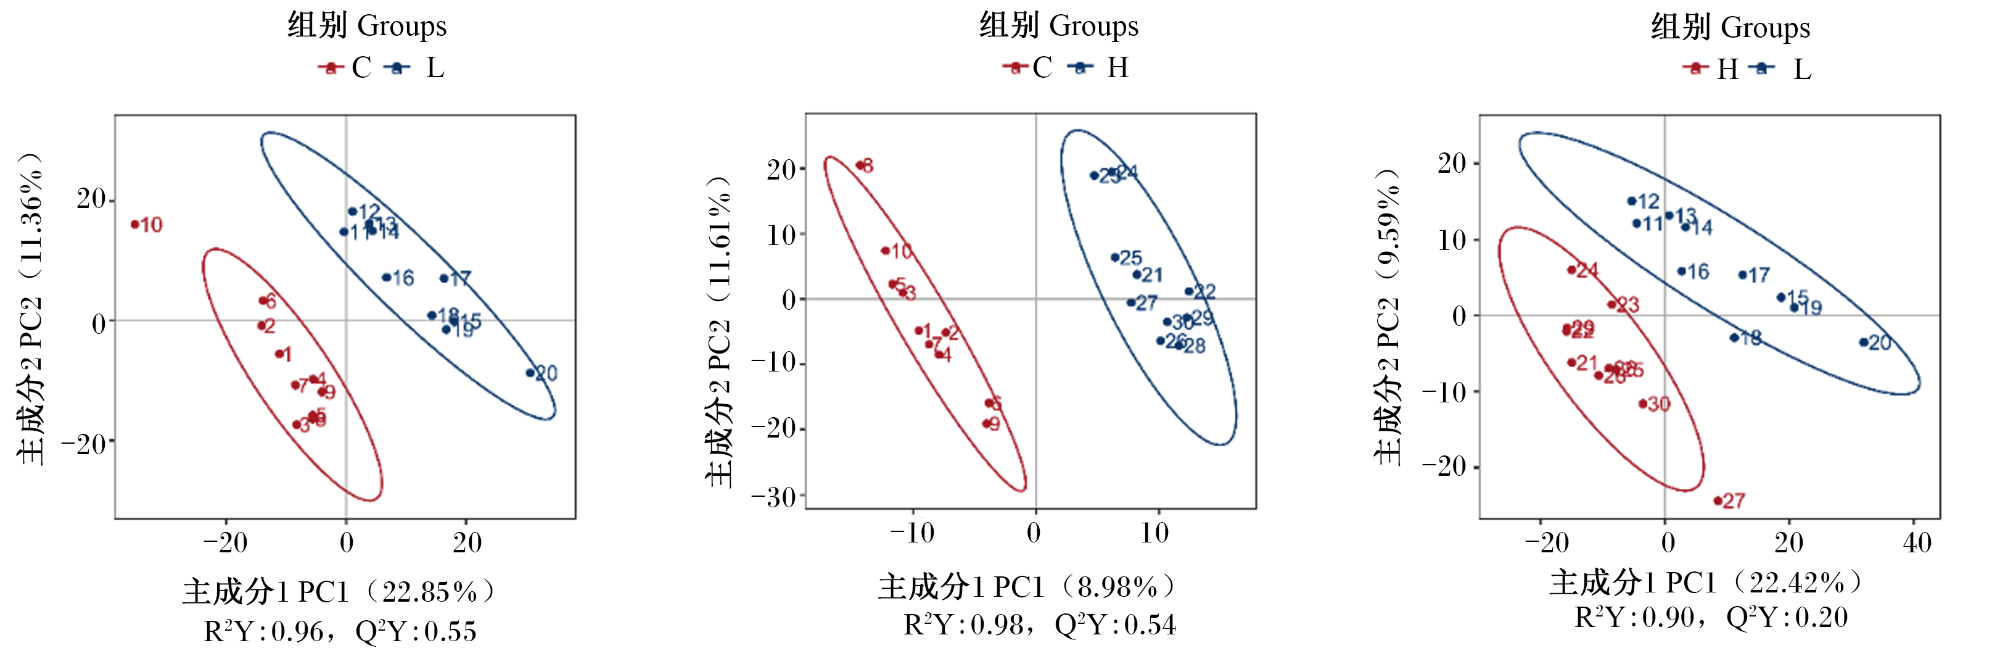
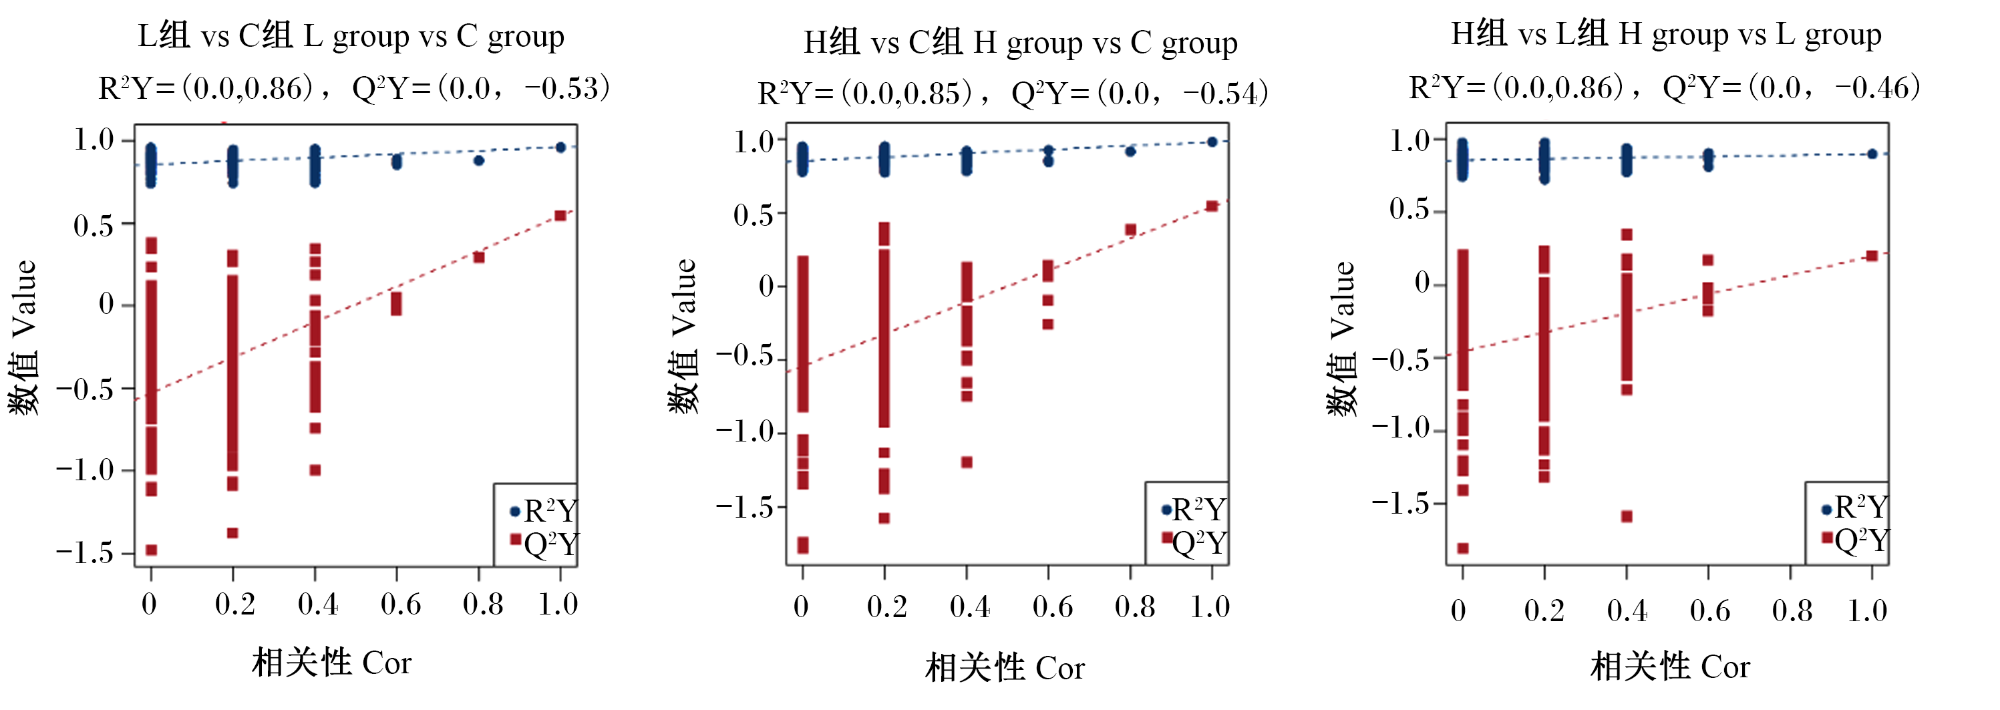
图2可知,L组与C组、H组与C组、H组与L组样本间均存在明显的分离,说明各组间血清代谢物差异较大,且L组与C组、H组与C组、H组与L组均呈现R2Y>Q2Y,表明该模型建立良好;由图3可知,L组与C组、H组与C组、H与L组蓝点普遍位于红点上方,即R2Y>Q2Y,且Q2Y<0,表明该模型未过拟合,可进行后续分析。
图2 血清代谢物PLS-DA得分图

R2Y:模型解释率 model explanation rate;Q2Y:模型预测能力 model predictive power。下图同 the same as below。

Fig.2 PLS-DA score plots of serum metabolites

图3 PLS-DA模型置换检验图

Fig.3 Permutation test diagrams of PLS-DA models

2.4.3 差异代谢物的筛选

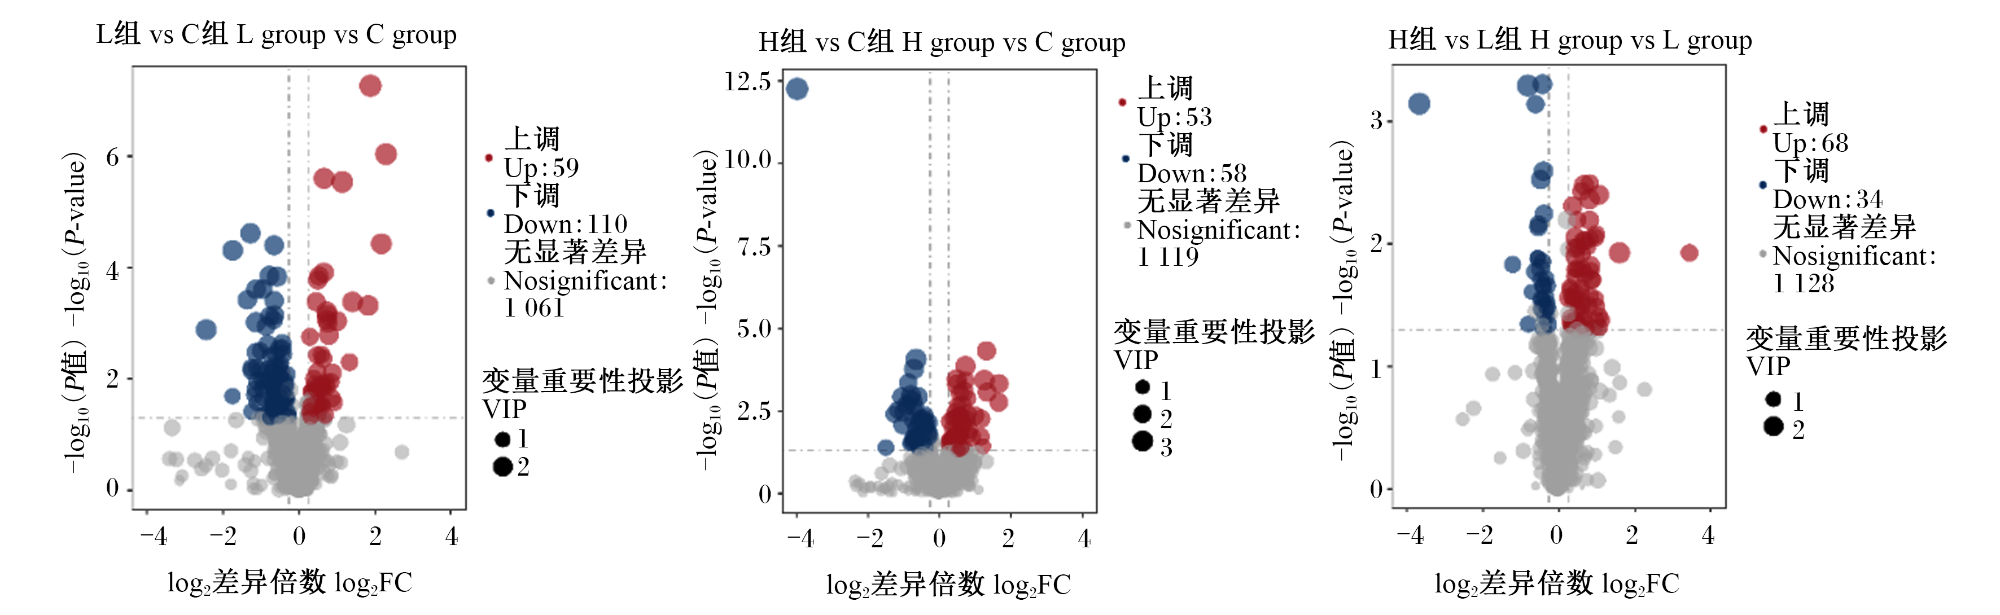
图4可知,L组与C组共筛选出差异代谢物169个,其中上调59个,下调110个;H组与C组共筛选出差异代谢物111个,其中上调53个,下调58个;H组与L组共筛选出差异代谢物102个,其中上调68个,下调34个。
图4 血清代谢物火山图

Fig.4 Volcano plots of serum metabolites

2.4.4 差异代谢物聚类分析

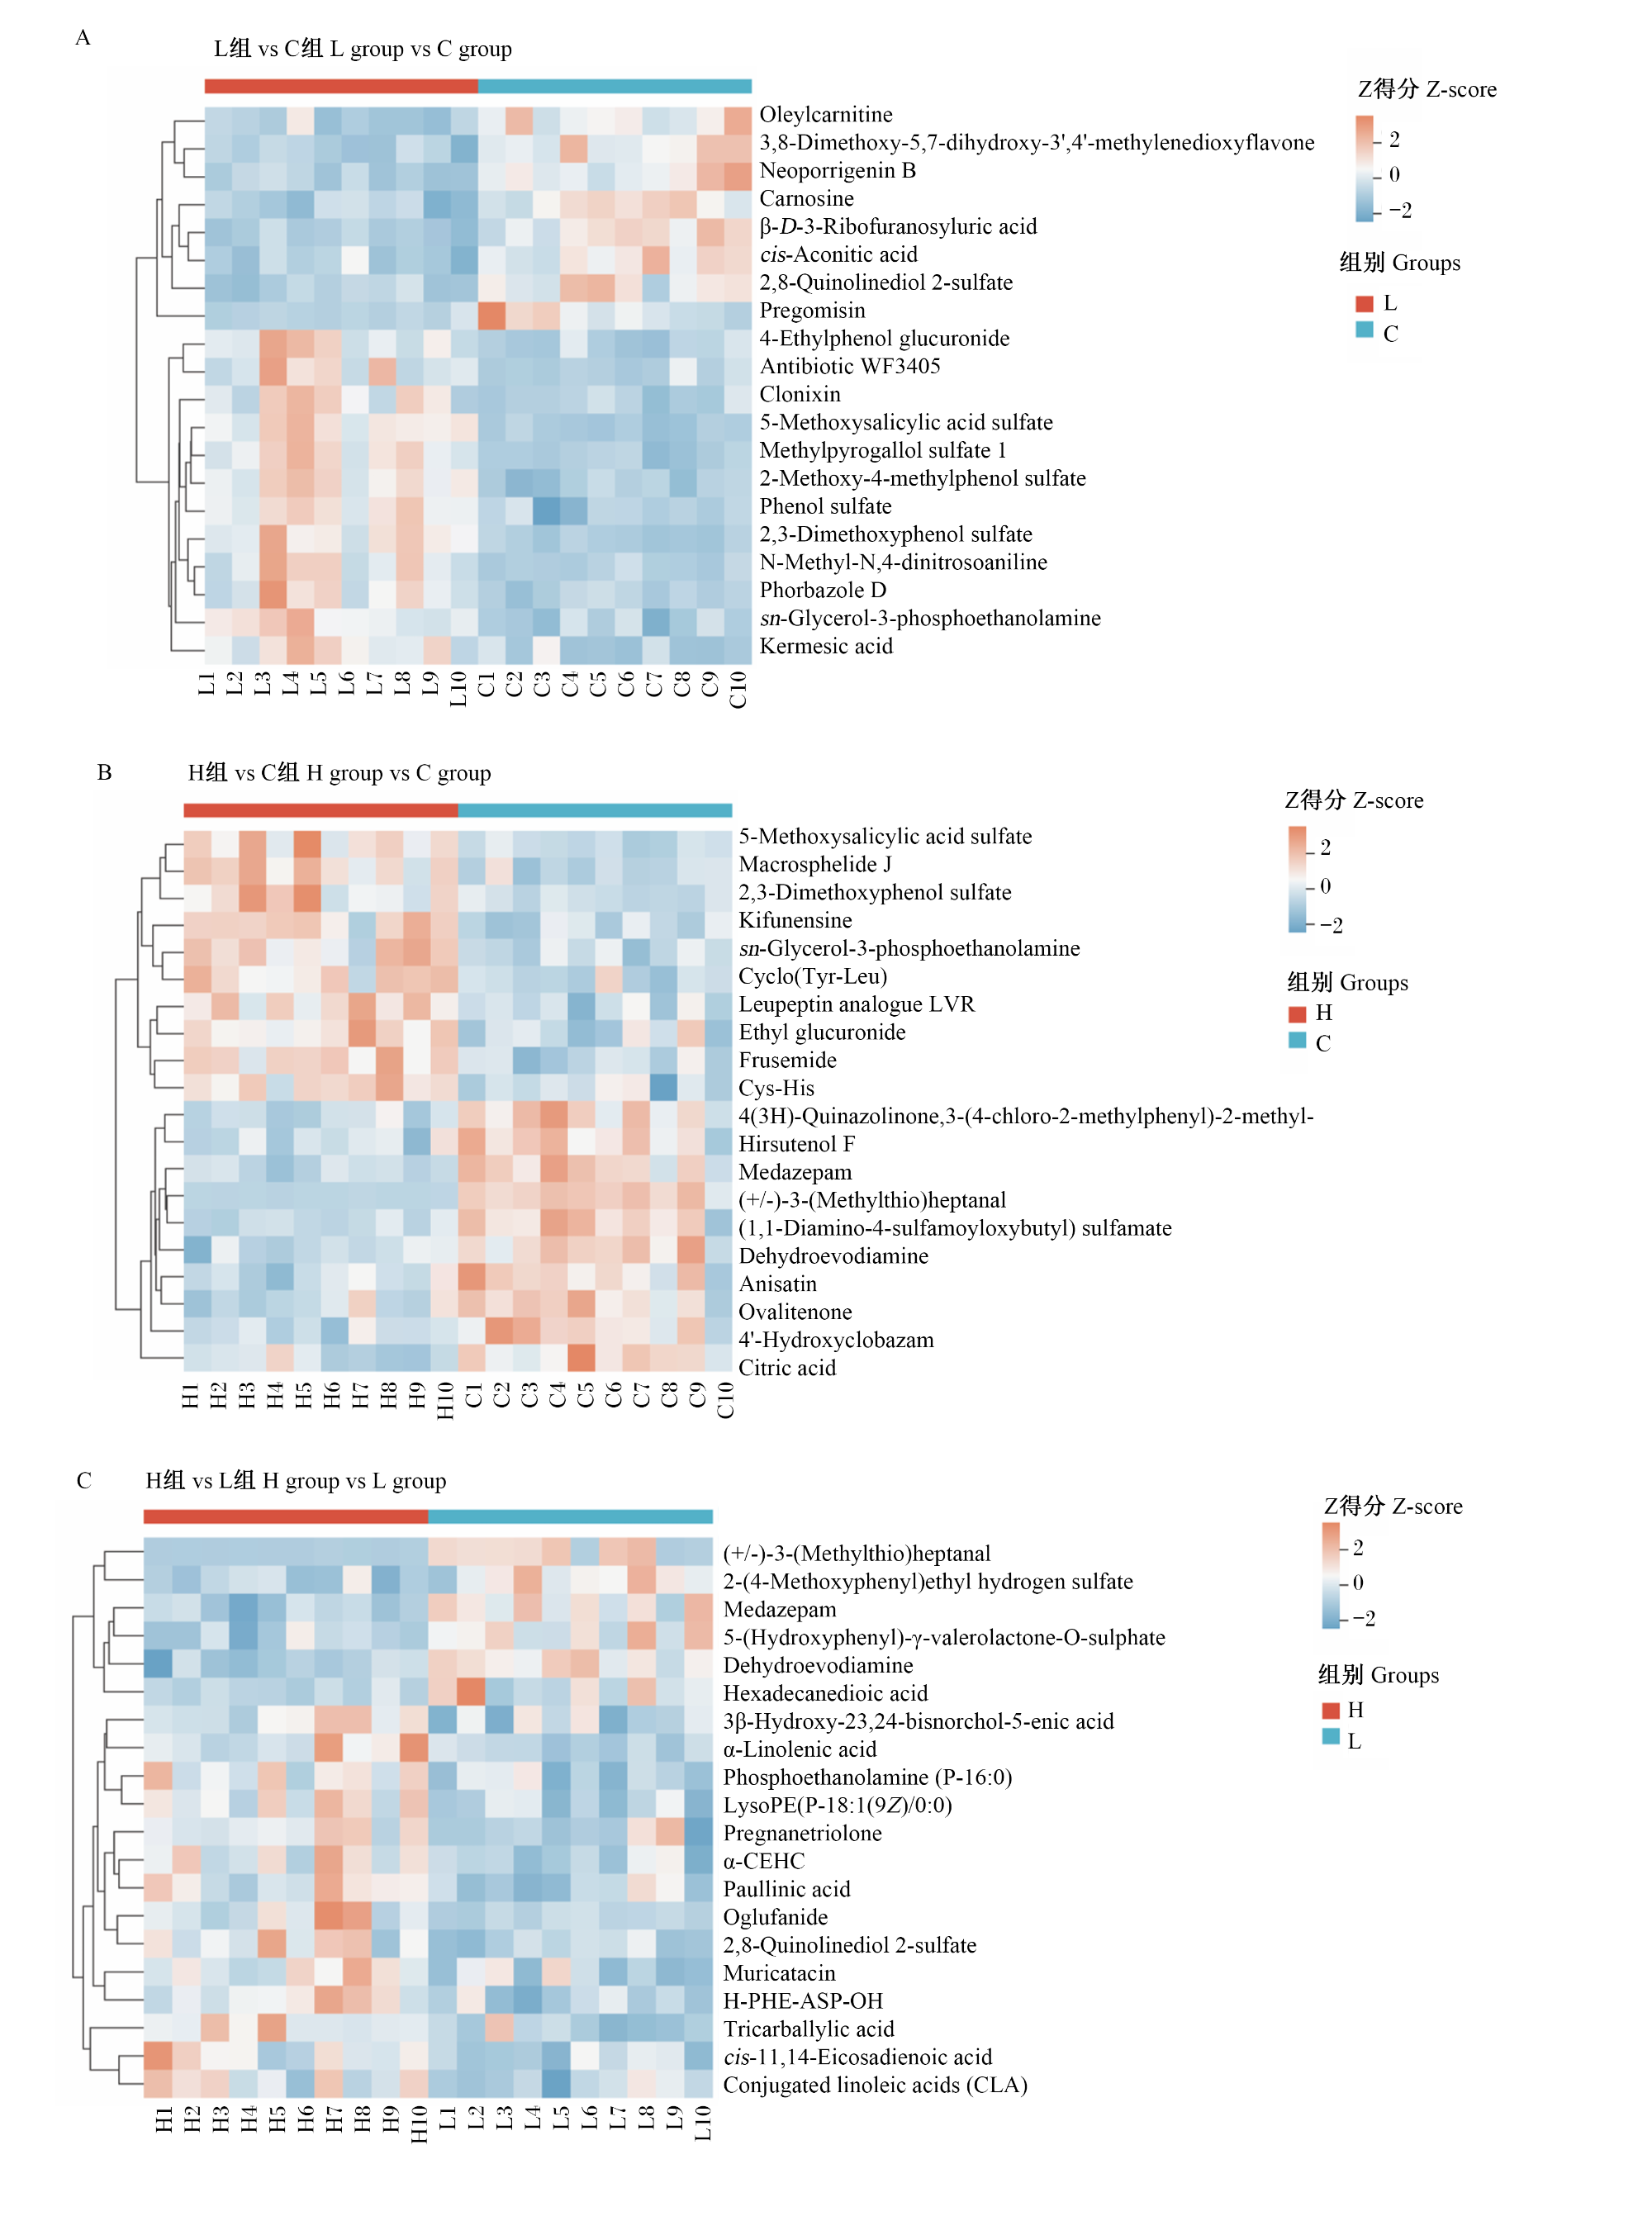
图5可知,进一步选取PLS-DA模型VIP值前20的差异代谢物绘制聚类热图,L组与C组、H组与C组、H组与的L组样本间血清差异代谢物有明显的区分,组内聚集性较好。
图5 血清差异代谢物聚类热图

Oleylcarnitine:油酰肉碱;3,8-Dimethoxy-5,7-dihydroxy-3',4'-methylenedioxyflavone:3,8-二甲氧基-5,7-二羟基-3',4'-亚甲二氧基黄酮;Neoporrigenin B:新波拉皂苷元B;Carnosine:肌肽;β-D-3-Ribofuranosyluric acid:β-D-3-呋喃核糖尿酸;cis-Aconitic acid:顺乌头酸;2,8-Quinolinediol 2-sulfate:2,8-喹啉二醇-2-硫酸酯;Pregomisin:前戈米辛;4-Ethylphenol glucuronide:4-乙基苯酚葡萄糖醛酸苷;Antibiotic WF3405:抗生素WF3405;Clonixin:氯尼辛;5-Methoxysalicylic acid sulfate:5-甲氧基水杨酸硫酸酯;Methylpyrogallol sulfate 1:甲基连苯三酚硫酸酯1;2-Methoxy-4-methylphenol sulfate:2-甲氧基-4-甲基苯酚硫酸酯;Phenol sulfate:苯酚硫酸酯:2,3-Dimethoxyphenol sulfate:2,3-二甲氧基苯酚硫酸酯;N-Methyl-N,4-dinitrosoaniline:N-甲基-N,4-二亚硝基苯胺;Phorbazole D:佛尔唑D;sn-Glycerol-3-phosphoethanolamine:sn-甘油-3-磷酸乙醇胺;Kermesic acid:胭脂虫红酸;Macrosphelide J:大孢内酯J;Kifunensine:基夫宁;Cyclo(Tyr-Leu):环二肽(酪氨酸-亮氨酸);Leupeptin analogue LVR:亮抑酶肽类似物LVR;Ethyl glucuronide:乙基-β-D-葡萄糖醛酸苷;Frusemide:呋塞米;Cys-His:半胱氨酰-组氨酸;4(3H)-Quinazolinone,3-(4-chloro-2-methylphenyl)-2-methyl-:3-(4-氯-2-甲基苯基)-2-甲基-4(3H)-喹唑啉酮;Hirsutenol F:毛蕊花酚F;Medazepam:美达西泮;(+/-)-3-(Methylthio)heptanal:(±)-3-(甲硫基)庚醛;(1,1-Diamino-4-sulfamoyloxybutyl) sulfamate:1,1-二氨基-4-氨磺酰氧基丁基氨磺酸盐;Dehydroevodiamine:去氢吴茱萸碱;Anisatin:莽草毒素;Ovalitenone:卵孢酮;4'-Hydroxyclobazam:4'-羟基氯巴占;Citric acid:柠檬酸;2-(4-Methoxyphenyl)ethyl hydrogen sulfate:2-(4-甲氧基苯基)乙基硫酸氢酯; 5-(Hydroxyphenyl)-γ-valerolactone-O-sulphate:5-(羟基苯基)-γ-戊内酯-O-硫酸酯;Hexadecanedioic acid:十六烷二酸;3β-Hydroxy-23,24-bisnorchol-5-enic acid:3β-羟基-23,24-双降胆-5-烯酸;α-Linolenic acid:α-亚麻酸;Phosphoethanolamine (P-16∶0):磷酸乙醇胺(P-16∶0);LysoPE(P-18∶1(9Z)/0∶0):溶血磷脂酰乙醇胺(P-18∶1(9Z)/0∶0);Pregnanetriolone:孕三醇酮;α-CEHC:α-羧乙基羟基苯并二氢吡喃;Paullinic acid:二十烯酸;Oglufanide:奥谷芬肽;Muricatacin:番荔枝素;H-PHE-ASP-OH:苯丙氨酰天冬氨酸;Tricarballylic acid:丙三羧酸;cis-11,14-Eicosadienoic acid:顺-11,14-二十碳二烯酸;Conjugated linoleic acids (CLA):共轭亚油酸。

Fig.5 Clustering heatmaps of serum differential metabolites

每列代表1个样本,每行代表1个差异代谢物。红色方块表示相对丰度较高,蓝色方块表示相对丰度较低。L1~L10为L组样本,C1~C10为C组样本,H1~H10为H组样本。Each column represented one sample, and each row represented one differential metabolite. Red squares indicated a high relative abundance, while blue squares indicated a low relative abundance. L1 to L10 were samples in L group, and C1 to C10 were samples in C group, while H1 to H10 were samples in H group.

2.4.5 KEGG富集分析

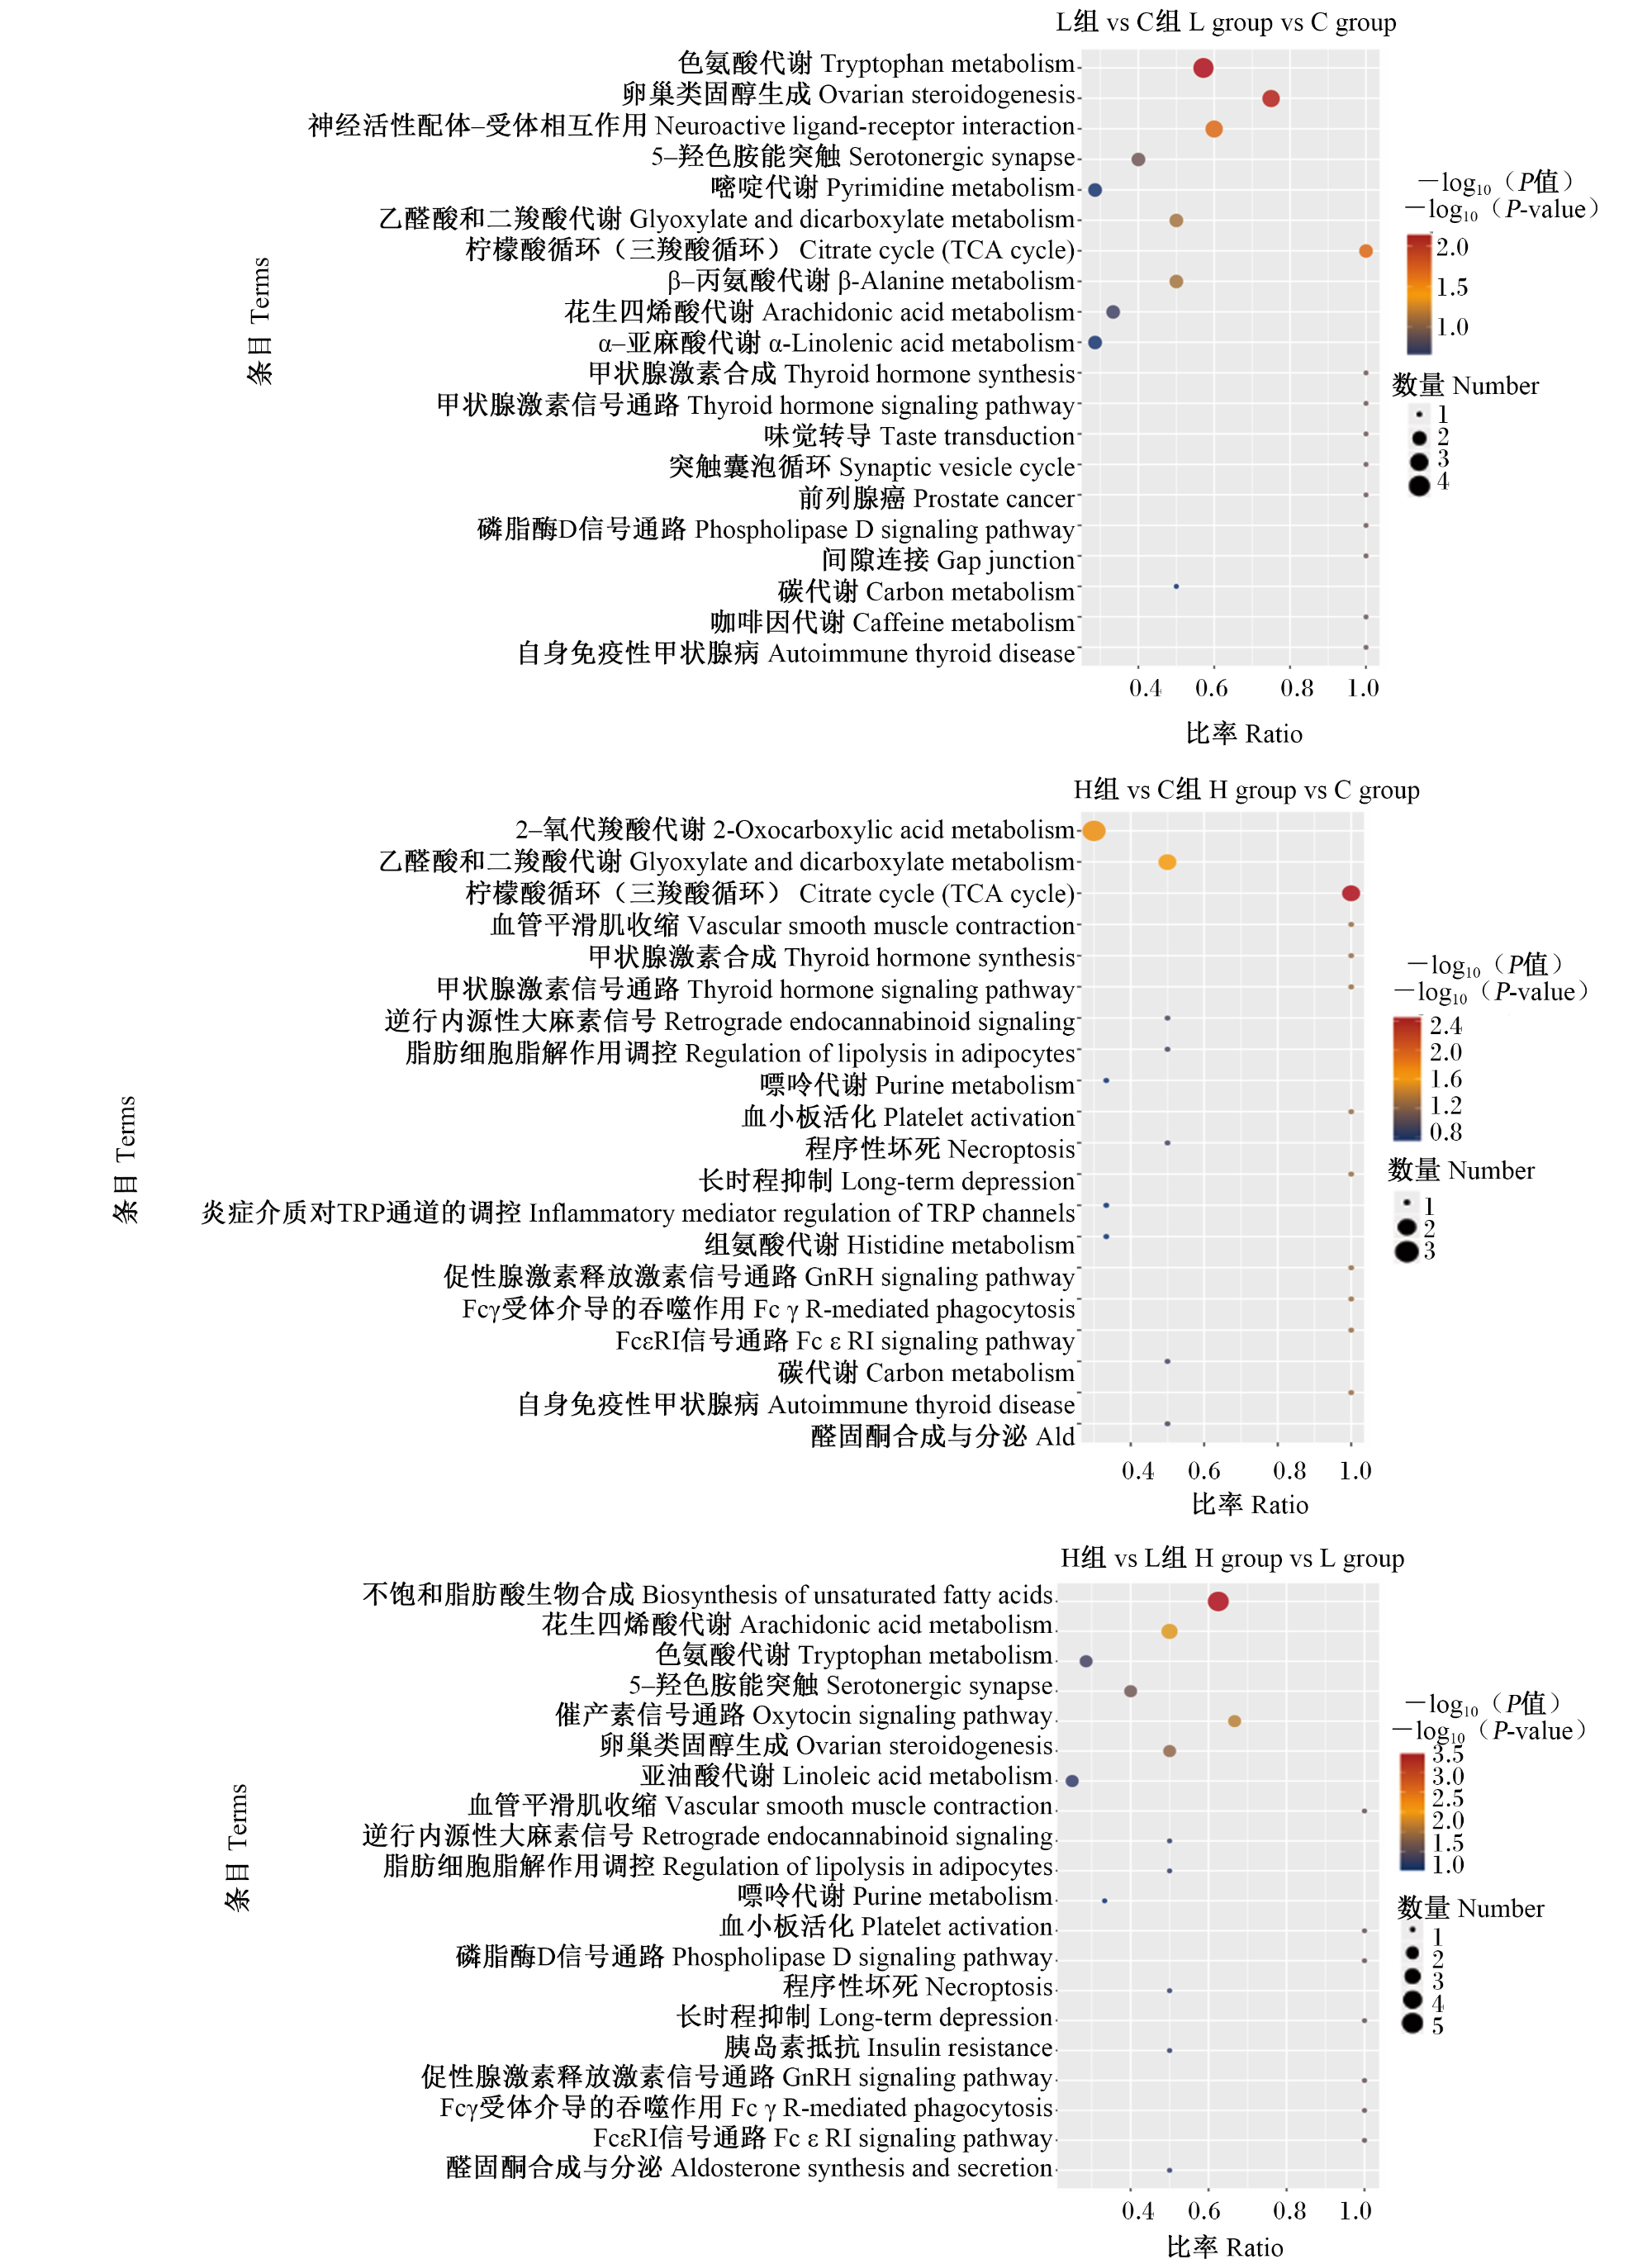
图6可知,L组与C组血清差异代谢物主要显著富集在色氨酸代谢(tryptophan metabolism)、卵巢类固醇生成(ovarian steroidogenesis)、柠檬酸循环(citrate cycle)、神经活性配体-受体相互作用(neuroactive ligand-receptor interaction)等代谢通路(P<0.05),H组与C组血清差异代谢物主要显著富集在柠檬酸循环、2-氧代羧酸代谢(2-oxocarboxylic acid metabolism)、乙醛酸和二羧酸代谢(glyoxylate and dicarboxylate metabolism)等代谢通路(P<0.05),H组与L组血清差异代谢物主要显著富集在不饱和脂肪酸生物合成(biosynthesis of unsaturated fatty acids)、花生四烯酸(arachidonic acid,ARA)代谢(arachidonic acid metabolism)、催产素信号通路(oxytocin signaling pathway)等代谢通路(P<0.05)。
图6 血清差异代谢物KEGG富集气泡图

Fig.6 Bubble maps of KEGG pathway enrichment of serum differential metabolites

2.5 肉牛生长性能、血清生化指标与血清差异代谢物相关性分析

以VIP>1,P<0.05且FC>1.2为标准筛选血清差异代谢物,并结合KEGG通路富集结果选择与过瘤胃蛋白酶作用及肉牛能量、氮和脂质代谢密切相关的血清差异代谢物。如图7所示,将生长性能、血清生化指标与典型的血清差异代谢物相对丰度进行Spearman相关性分析,结果可知,ADG与血清sn-甘油-3-磷酸乙醇胺(sn-glycerol-3-phosphoethanolamine)和牛磺熊去氧胆酸(tauroursodeoxycholic acid)相对丰度呈显著正相关(P<0.05),与血清棕榈酰肉碱(palmitoylcarnitine)和5-羟色胺(serotonin)相对丰度呈显著负相关(P<0.05);ADMI与血清ARA相对丰度呈极显著正相关(P<0.01),与血清(6Z)-十六碳烯酰肉碱[(6Z)-hexadecenoylcarnitine]相对丰度呈显著负相关(P<0.05);血清5-羟色胺相对丰度与F/G呈极显著正相关(P<0.01);血清GLU含量与血清环二肽(酪氨酸-亮氨酸)[Cyclo(Tyr-Leu)]相对丰度呈显著正相关(P<0.05),与血清sn-甘油-3-磷酸乙醇胺相对丰度呈极显著正相关(P<0.01),与血清油酰肉碱(oleylcarnitine)、棕榈酰肉碱和(6Z)-十六碳烯酰肉碱相对丰度呈显著负相关(P<0.05);血清柠檬酸(citric acid)和顺乌头酸(cis-aconitic acid)相对丰度与血清TP含量呈显著负相关(P<0.05),与血清GLB含量呈极显著负相关(P<0.01),并与血清A/G呈极显著正相关(P<0.01);血清牛磺熊去氧胆酸相对丰度与血清TC含量呈显著正相关(P<0.05),与血清LDL-C含量呈极显著正相关(P<0.01);血清ARA相对丰度与血清LDL-C含量呈显著正相关(P<0.05);血清氧己二酸(oxoadipic acid)相对丰度与血清TC、LDL-C含量呈显著负相关(P<0.05)。
图7 肉牛生长性能、血清生化指标与血清差异代谢物相关性分析

*:P<0.05;**:P<0.01。图形的颜色反映相关性大小,红色正相关,蓝色负相关;图形越细代表相关性绝对值越大,颜色越深也是代表相关性绝对值越大。The color of the shapes indicated the strength of correlation: red for positive correlation, blue for negative correlation. Thinner shapes indicated larger absolute correlation values, and darker colors also indicated larger absolute correlation values.

ADG:平均日增重 average daily gain;ADMI:平均干物质采食量 average dry matter intake;F/G:料重比 feed to gain ratio;UN:尿素氮 urea nitrogen;GLU:葡萄糖 glucose;TP:总蛋白 total protein;ALB:白蛋白 albumin;GLB:球蛋白 globulin;A/G:白球比 albumin to globulin ratio;TG:甘油三酯 triglyceride;TC:总胆固醇 total cholesterol;HDL-C:高密度脂蛋白胆固醇 high-density lipoprotein cholesterol;LDL-C:低密度脂蛋白胆固醇 low-density lipoprotein cholesterol;Cyclo(Tyr-Leu):环二肽(酪氨酸-亮氨酸);Oleylcarnitine:油酰肉碱;sn-Glycerol-3-phosphoethanolamine:sn-甘油-3-磷酸乙醇胺;Citric acid:柠檬酸;Oxoadipic acid:氧己二酸;Palmitoylcarnitine:棕榈酰肉碱;cis-Aconitic acid:顺乌头酸;Arachidonic acid:花生四烯酸;Tauroursodeoxycholic acid:牛磺熊去氧胆酸;Ethyl leucinate:亮氨酸乙酯;(6Z)-Hexadecenoylcarnitine:(6Z)-十六碳烯酰肉碱;Serotonin:5-羟色胺。

Fig.7 Correlation analysis among growth performance, serum biochemical indices and differential serum metabolites in beef cattle

3 讨论

3.1 过瘤胃蛋白酶对肉牛生长性能及营养物质表观消化率的影响

ADMI、ADG和F/G是衡量肉牛生长性能的重要指标[14]。研究报道,外源蛋白酶的作用效果与饲粮组成存在显著的交互作用[5]。Bugoni等[15]研究发现,与添加0.05 g/kg淀粉酶组相比,在添加0.05 g/kg淀粉酶的基础上分别添加0.2、0.4 g/kg的蛋白酶对泌乳荷斯坦奶牛的干物质采食量(DMI)、产奶量和乳脂校正乳产量(FCM)均无显著影响,这与本试验结果相符。在本试验中,与C组相比,L组和H组ADG数值上分别增加了5.77%和23.08%,L组和H组F/G数值上分别减少了9.42%和18.61%;与L组相比,H组的ADG数值上增加了16.36%,F/G数值上降低了10.15%;但各组间ADMI、ADG和F/G均无显著差异。外源蛋白酶能够水解饲粮中大分子蛋白质生成小肽和氨基酸,降解植物原料中的蛋白酶抑制剂、抗原蛋白等抗营养因子,可减少饲粮中抗营养因子的不利影响,同时补充动物内源性蛋白酶的不足,提高饲粮蛋白质的消化吸收效率,从而降低F/G、提高ADG。但外源蛋白酶在本试验中未达到显著效果,可能与试验动物的品种、年龄、性别及饲粮中蛋白质来源、抗营养因子含量等因素有关。
De Vitt等[16]研究发现,饲粮添加160 mg/kg DM复合酶制剂(含7 500 U/g蛋白酶)能够显著提高泌乳奶牛粗蛋白质表观消化率。Meschiatti等[17]研究发现,在添加莫能菌素和淀粉酶的基础上添加840 mg/kg蛋白酶,能够提高育肥牛干物质、粗蛋白质、粗脂肪、中性洗涤纤维和非纤维碳水化合物(NFC)的表观消化率,但组间无显著差异。在本试验中,各组肉牛各营养物质表观消化率均无显著差异。造成该结果的原因可能与试验肉牛的品种、年龄和生长阶段,以及饲粮的组成、蛋白质含量等因素有关。在本试验中,与C组相比,L组的有机物、粗蛋白质、粗脂肪、中性洗涤纤维和酸性洗涤纤维的表观消化率数值上有所增加;但与L组相比,H组的粗蛋白质、粗脂肪、中性洗涤纤维和酸性洗涤纤维的表观消化率数值上呈现降低趋势,即添加一定剂量的蛋白酶能够数值上提高营养物质的表观消化率,但随着添加量的增加,营养物质的表观消化率又会降低,这可能与外源蛋白酶添加导致内源蛋白酶活性及其基因表达量降低有关[18]

3.2 过瘤胃蛋白酶对肉牛血清生化指标的影响

血清生化指标可反映畜禽组织器官功能和生理状态、营养物质代谢及免疫机能状态,是评价机体健康与营养状况的重要依据[19]。蔡佳宝等[12]研究发现,饲粮添加10 g/(头·d)过瘤胃蛋白酶能够显著提高泌乳奶牛血清葡萄糖含量。反刍动物因瘤胃微生物发酵消耗了饲粮中大部分碳水化合物,其肠道中直接吸收葡萄糖较少,参与机体循环代谢的葡萄糖中有>90%来自于糖异生途径,且该过程在一定程度上依赖于氨基酸作为主要前体物质异生为葡萄糖,参与机体循环代谢[20]。在本试验中,饲粮分别添加5和10 g/(d·头)过瘤胃蛋白酶后,血清GLU含量显著升高,一方面可能是因为过瘤胃蛋白酶促进了皱胃和小肠中蛋白质的消化和氨基酸的吸收,吸收后的氨基酸可作为糖异生底物,通过糖异生途径生成葡萄糖,引起GLU含量升高;另一方面可能是因为过瘤胃蛋白酶促进包裹淀粉的蛋白质基质降解,将淀粉“释放”出来,使其能够被内源性淀粉酶充分作用[21],最终提高淀粉消化率和葡萄糖吸收量,进而升高肉牛血清GLU含量。
血清TG、TC、LDL-C和HDL-C含量是反映动物机体脂质代谢的重要指标[22],肉鸡饲粮中补充L-精氨酸可降低血清TC、LDL-C和TG含量[23]。Ma等[24]研究发现,饲粮添加碱性蛋白酶能够显著降低断奶仔猪血清TC含量。在本试验中,饲粮添加5 g/(d·头)过瘤胃蛋白酶后,血清TC和LDL-C含量分别显著降低21.69%和28.89%,与先前研究结果相符。其原因可能是过瘤胃蛋白酶提高了肉牛的蛋白质消化率,使机体内精氨酸等具有调节脂质代谢相关通路的功能性氨基酸含量升高,从而减少了TC和LDL-C含量。
血清UN含量可反映机体内蛋白质代谢和各种氨基酸的平衡状况[25]。Zhang等[26]研究发现,断奶仔猪常规豆粕饲粮添加150 mg/kg蛋白酶,能够显著降低血清UN含量;Sucu等[27]研究发现,饲粮添加4 g/(d·头)蛋白酶能够显著降低泌乳奶牛血清UN含量。在本试验中,饲粮分别添加5、10 g/(d·头)过瘤胃蛋白酶后,肉牛血清UN含量分别显著降低了20.13%和18.79%。一方面,过瘤胃蛋白酶经包被处理,在瘤胃中不易被微生物降解,能够顺利到达皱胃和小肠,促进蛋白质在皱胃和小肠中分解为小肽和氨基酸并被高效吸收,进而增强动物体内蛋白质合成代谢,导致血清UN含量减少;另一方面,部分过瘤胃蛋白酶未完全通过瘤胃,在瘤胃内发挥作用,促进瘤胃微生物对氨氮的利用及微生物蛋白的合成,减少瘤胃中氨氮的积累,进而使进入血液的UN含量降低[27]

3.3 过瘤胃蛋白酶对肉牛血清代谢物的影响

代谢组学是一门以生物体内小分子代谢物为研究对象,通过多种现代分析技术在整体水平上对代谢物进行系统定性与定量分析,进而揭示其动态变化规律的科学。代谢组学技术能够深入探究营养与代谢之间的复杂关联,基于该关联优化动物营养供给模式,可帮助动物维持最佳健康状态并实现生产性能的最大化[28]。鉴于筛选获得的差异代谢物数量众多,当前结合KEGG通路富集结果选择与过瘤胃蛋白酶作用及肉牛能量、氮和脂质代谢密切相关的血清差异代谢物开展机制分析。
柠檬酸循环是糖、脂肪、蛋白质三大营养物代谢联系的枢纽和最终分解途径[29]。顺乌头酸是柠檬酸循环的中间产物,由乌头酸酶催化柠檬酸可逆转化为异柠檬酸过程中形成,柠檬酸循环中的柠檬酸则由草酰乙酸和乙酰辅酶A经缩合反应生成,该缩合反应由柠檬酸合酶催化[30]。在本试验中,饲粮添加5和10 g/(d·头)过瘤胃蛋白酶后,西门塔尔肉牛血清代谢物顺乌头酸和柠檬酸相对丰度下调,其原因可能是过瘤胃蛋白酶可降解饲粮中包裹淀粉的蛋白质组分,促进淀粉“释放”出来,使其能够被内源性淀粉酶充分水解[21],提高了碳水化合物消化吸收效率,同时过瘤胃蛋白酶可减少饲粮蛋白质在瘤胃中的降解损失,提高蛋白质的小肠消化率。碳水化合物与蛋白质消化吸收的增强,为机体提供了更多柠檬酸循环的底物,加速了循环中间产物的周转速度与组织摄取利用,从而下调了血清顺乌头酸和柠檬酸的积累,机体将更多营养底物转向蛋白质沉积和组织生长,但本试验未检测柠檬酸循环关键酶活性和ATP生成水平,因此该机制仍需进一步验证。
sn-甘油-3-磷酸乙醇胺属于甘油磷酸乙醇胺类代谢物,与磷脂酰乙醇胺代谢密切相关。磷脂酰乙醇胺是细胞膜的重要磷脂成分,参与维持细胞膜完整性、细胞分裂和线粒体呼吸功能[31]。线粒体磷脂酰乙醇胺缺乏会损害细胞生长、呼吸能力和ATP生成,在细胞能量代谢中具有重要作用[32]。在本试验中,与C组相比,L组和H组血清代谢物sn-甘油-3-磷酸乙醇胺相对丰度上调;相关性分析表明,sn-甘油-3-磷酸乙醇胺相对丰度与血清GLU含量呈极显著正相关。而L组和H组血清GLU含量显著升高的结果,提示葡萄糖代谢状态发生改变,且葡萄糖代谢可为甘油磷脂合成提供甘油骨架和能量基础,过瘤胃蛋白酶可能通过改善血清能量代谢和氮代谢状态,调节甘油磷脂代谢及膜脂更新过程,进而参与肉牛机体代谢调控。
棕榈酰肉碱、油酰肉碱和(6Z)-十六碳烯酰肉碱均属于长链酰基肉碱类代谢物,肉碱是长链脂肪酸进入线粒体进行β-氧化的关键转运因子,可促进长链脂肪酸跨越线粒体内膜并氧化供能,最终通过柠檬酸循环和氧化磷酸化产生ATP[33]。血清酰基肉碱含量能够反映脂肪酸β-氧化的代谢状态,长链酰基肉碱积累可能提示脂肪酸氧化不完全或β-氧化与柠檬酸循环衔接不足[34]。在本试验中,血清GLU含量与血清代谢物棕榈酰肉碱、油酰肉碱和(6Z)-十六碳烯酰肉碱相对丰度呈显著负相关;与C组相比,L组和H组血清GLU含量显著升高,血清代谢物棕榈酰肉碱、油酰肉碱和(6Z)-十六碳烯酰肉碱相对丰度下调。推测饲粮添加过瘤胃蛋白酶能够改善机体蛋白质、脂肪等营养物质的消化吸收,机体可利用更多葡萄糖、氨基酸及其他吸收的营养底物参与能量代谢和组织更新,降低对长链脂肪酸动员及β-氧化供能的依赖;亦或脂肪酸β-氧化与柠檬酸循环之间的代谢衔接更加协调,进而有助于调节肉牛能量代谢模式。
5-羟色胺(又叫血清素)是一种由色氨酸合成的单胺类分子。在中枢神经系统中,5-羟色胺是一种重要的神经递质,参与情绪调节、食物摄入、睡眠以及疼痛感知等过程的调控[35]。色氨酸是5-羟色胺的前体,色氨酸进入机体后不仅用于蛋白质合成,同时也可代谢为犬尿氨酸、色胺和吲哚类物质,并参与神经内分泌和肠道免疫调节[36]。本试验中,饲粮添加5 g/(d·头)过瘤胃蛋白酶后,肉牛血清代谢物5-羟色胺、D-色氨酸及多种吲哚衍生物(吲哚-3-羧酸、吲哚乳酸和吲哚-3-甲醛等)相对丰度下调,推测该现象产生的原因是:饲粮添加过瘤胃蛋白酶可提升消化道蛋白质降解效率,加快氨基酸消化与代谢速率,改变蛋白质消化效率、小肽和氨基酸供应模式,进而影响色氨酸在不同代谢通路中的分配;色氨酸可能更多用于体蛋白质沉积或能量代谢途径,向5-羟色胺合成通路及肠道吲哚代谢的分配减少,从而造成血清5-羟色胺等代谢物下调。
α-亚麻酸(ALA)是ω-3多不饱和脂肪酸,它可以通过一系列的脱饱和和延长反应,被转化为二十碳五烯酸(EPA)、二十二碳五烯酸(DPA)和二十二碳六烯酸(DHA),在脂质代谢和炎症调节中具有潜在作用[37]。ARA则是ω-6长链多不饱和脂肪酸,是前列腺素、白三烯和血栓素等活性物质的重要前体,参与细胞膜结构维持、炎症反应、免疫调节和细胞信号转导[38]。在本试验中,与L组相比,H组血清代谢物EPA、ALA、ARA和DPA相对丰度上调;与C组相比,L组血清代谢物ALA和EPA相对丰度下调,H组血清代谢物ARA相对丰度上调,表明不同剂量过瘤胃蛋白酶可能对多不饱和脂肪酸代谢的调控方向存在差异。结合本试验中L组和H组血清GLU含量显著升高、UN含量显著降低的结果,提示过瘤胃蛋白酶可能改善了肉牛能量供应和氮代谢状态;与L组相比,H组LDL-C含量显著升高,血清ARA相对丰度与LDL-C含量显著正相关,由于低密度脂蛋白(LDL)是血液中脂质转运的重要载体,能将胆固醇转运至外周组织[39],ARA相对丰度升高可能反映高剂量过瘤胃蛋白酶通过影响脂肪酸运输和膜脂代谢过程,但具体调控机制尚未明确,需后续试验进一步探究。

4 结论

本试验条件下,饲粮添加过瘤胃蛋白酶显著提高肉牛血清葡萄糖含量、显著降低血清尿素氮含量;血清代谢组学分析结果表明,过瘤胃蛋白酶可能通过色氨酸代谢、柠檬酸循环、不饱和脂肪酸合成等代谢通路及其中间代谢物实现对肉牛机体的代谢调控。综上所述,西门塔尔肉牛饲粮中过瘤胃蛋白酶适宜添加量为10 g/(d·头)。
[1]
胡丽红, 马银, 杨石红, 等. 6种蛋白质饲料和4种能量饲料主要营养物质瘤胃降解规律及相关性研究[J]. 动物营养学报, 2025, 37(6):4158-4175.

DOI

HU L H, MA Y, YANG S H, et al. Study on ruminal degradation characteristics and correlations of main nutrients of six protein feeds and four energy feeds[J]. Chinese Journal of Animal Nutrition, 2025, 37(6):4158-4175. (in Chinese)

DOI

[2]
FURLANI N R, DA MOTTA S A B, RAMOS B T, et al. Protease enzyme supplementation in weaning piglets fed reduced crude protein diets:effects on gut health integrity and performance response[J]. Animals, 2025, 15(14):2109.

DOI

[3]
LIU H, FARUK M U, TEIXEIRA L, et al. Research note:proteases effect on soybean meal:enzyme product and area of production differences on standardized ileal amino acids digestibility of broiler chickens[J]. Poultry Science, 2024, 103(12):104493.

DOI

[4]
LEE J, OH H, KIM Y, et al. Effects of exogenous protease on performance,economic evaluation,nutrient digestibility,fecal score,intestinal morphology,blood profile,carcass trait,and meat quality in broilers fed normal diets and diets considered with matrix value[J]. Poultry Science, 2023, 102(5):102565.

DOI

[5]
EUN J S, BEAUCHEMIN K A. Effects of a proteolytic feed enzyme on intake,digestion,ruminal fermentation,and milk production[J]. Journal of Dairy Science, 2005, 88(6):2140-2153.

PMID

[6]
BACH A, CALSAMIGLIA S, STERN M D. Nitrogen metabolism in the rumen[J]. Journal of Dairy Science,2005,88:E9-E21.

[7]
卢艳芳, 别雪, 王泳, 等. 饲粮粗蛋白质水平对妊娠后期母羊生长性能、血清生化和抗氧化指标及血浆代谢组的影响[J/OL]. 动物营养学报, 2026:1-14(2026-06-12)[2026-06-17].

LU Y F, BIE X, WANG Y, et al. Effects of dietary crude protein levels on growth performance,serum biochemical and antioxidant indices and plasma metabolome of ewes in later stage of pregnancy[J/OL]. Chinese Journal of Animal Nutrition, 2026:1-14(2026-06-12)[2026-06-17]. in Chinese)

[8]
张幸怡, 刘岩, 宫玥, 等. 蛋白的过瘤胃保护技术及应用进展[J]. 中国奶牛, 2024(9):1-5.

ZHANG X Y, LIU Y, GONG Y, et al. Development of rumen protection technique and application of protein[J]. China Dairy Cattle, 2024(9):1-5. (in Chinese)

[9]
龚龑, 张彬, 张翼. 过瘤胃技术在奶牛生产中的应用与研究进展[J]. 中国奶牛, 2015(17):15-20.

GONG Y, ZHANG B, ZHANG Y. Research progress and application of rumen protected technology in dairy cattle[J]. China Dairy Cattle, 2015(17):15-20. (in Chinese)

[10]
袁越, 周建旭, 罗晓林, 等. 过瘤胃脂肪对育肥牦牛生产性能、血清生化及屠宰性能的影响[J]. 畜牧兽医学报, 2025, 56(8):3849-3860.

DOI

YUAN Y, ZHOU J X, LUO X L, et al. Effect of Rumen-Protected fat on growth performance,serum biochemistry and slaughter performance of fattening yaks[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(8):3849-3860. (in Chinese)

DOI

[11]
窦钰鹏, 李增辉, 董瑞兰. 过瘤胃牛磺酸对西门塔尔牛泌乳性能、乳中氨基酸含量及瘤胃微生物蛋白产量的影响[J]. 中国饲料, 2026(3):85-90.

DOU Y P, LI Z H, DONG R L. Effects of rumen-protected taurine on lactation performance,milk amino acid content,and microbial crude protein in Simmental cows[J]. China Feed, 2026(3):85-90. (in Chinese)

[12]
蔡佳宝, 张健, 游文玉, 等. 过瘤胃蛋白酶对奶牛生产性能、乳成分、血清理化性质和经济效益的影响[J]. 中国饲料, 2025(19):115-120.

CAI J B, ZHANG J, YOU W Y, et al. Effects of rumen-protected protease on dairy cow performance,milk composition,serum biochemical indexes and economic benefits[J]. China Feed, 2025(19):115-120. (in Chinese)

[13]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[14]
钟明, 耿龙君, 崔莲花, 等. 姜黄素对热应激条件下延边黄牛育成牛生长性能、饲料养分表观消化率和血液指标的影响[J]. 中国畜牧兽医, 2025, 52(2):655-667.

DOI

ZHONG M, GENG L J, CUI L H, et al. Effects of curcumin on growth performance,apparent digestibility of feed nutrients and blood indexes of Yanbian yellow breeding cattle under heat stress[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(2):655-667. (in Chinese)

[15]
BUGONI M, TAKIYA C S, GRIGOLETTO N T S, et al. Feeding amylolytic and proteolytic exogenous enzymes:effects on nutrient digestibility,ruminal fermentation,and performance in dairy cows[J]. Journal of Dairy Science, 2023, 106(5):3192-3202.

DOI

[16]
DE VITT M G, BRUNETTO A L R, LEAL K W, et al. Use of a blend of exogenous enzymes in the diet of lactating Jersey cows:ruminal fermentation in vivo and in vitro,and its effects on productive performance,milk quality,and animal health[J]. Fermentation, 2025, 11(9):495.

DOI

[17]
MESCHIATTI M A P, GOUVÊA V N, PELLARIN L A, et al. Feeding the combination of essential oils and exogenous α-amylase increases performance and carcass production of finishing beef cattle[J]. Journal of Animal Science, 2019, 97(1):456-471.

DOI PMID

[18]
YUAN L, WANG S Q, WANG Z X, et al. Effects of exogenous protease supplementation on endogenous trypsin activity and gene expression in broilers[J]. Genetics and Molecular Research, 2015, 14(4):13633-13641.

DOI PMID

[19]
DENG Z Q, WU B Y, YI X, et al. The effect of Yucca schidigera extract on serum metabolites of Angus crossbreed steers with metabolomics[J]. Metabolites, 2024, 14(1):58.

DOI

[20]
杨天宇, 马晓宇, 贡笑笑, 等. 不同蛋白水平日粮对荷斯坦公犊牛糖异生的影响[J]. 中国农业大学学报, 2022, 27(4):187-194.

YANG T Y, MA X Y, GONG X X, et al. Effects of different protein levels on gluconeogenesis of Holstein bull calves[J]. Journal of China Agricultural University, 2022, 27(4):187-194. (in Chinese)

[21]
JIN Z Q, BAI F L, CHEN Y B, et al. Interactions between protein,lipid and starch in foxtail millet flour affect the in vitro digestion of starch[J]. CyTA-Journal of Food, 2019, 17(1):640-647.

DOI

[22]
吴永保, 唐静, 曹俊婷, 等. 低能量低蛋白饲粮中添加蛋氨酸对育肥期北京鸭生长性能、屠宰性能和血浆生化指标的影响[J]. 中国农业科学, 2025, 58(12):2475-2486.

DOI

WU Y B, TANG J, CAO J T, et al. Effects of methionine supplementation on growth performance,carcass trait,and plasma biochemical indice of growing pekin ducks fed a low-energy and low-protein diet[J]. Scientia Agricultura Sinica, 2025, 58(12):2475-2486. (in Chinese)

[23]
FILHO S T S, DA C LIMA E M, DE OLIVEIRA D H, et al. Supplemental L-arginine improves feed conversion and modulates lipid metabolism in male and female broilers from 29 to 42 days of age[J]. Animal, 2021, 15(2):100120.

DOI

[24]
MA W F, LV Y, GUO L, et al. Effects of three kinds of protease on growth performance,apparent digestibility of nutrients and caecal microbial counts in weanling pigs[J]. Czech Journal of Animal Science, 2020, 65(10):373-379.

DOI

[25]
张静静, 郑旭, 李玥, 等. 低蛋白质饲粮添加蛋白酶对肉仔鸡生长性能、肝脏生长基因及雷帕霉素靶蛋白信号通路基因表达的影响[J]. 动物营养学报, 2021, 33(9):5332-5344.

DOI

ZHANG J J, ZHENG X, LI Y, et al. Effects of protease supplementation in low protein diet on growth performance,liver growth gene and target of rapamycin signaling pathway gene expression of broilers[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):5332-5344. (in Chinese)

[26]
ZHANG J H, ZHOU C X, ZOU H L, et al. Effects of protease in soybean meal-reduced diets on growth performance,nutrient digestibility,and intestinal health of weaned piglets[J]. Animals, 2023, 14(1):101.

DOI

[27]
SUCU E, NAYERI A, SANZ-FERNANDEZ M V, et al. The effects of supplemental protease enzymes on production variables in lactating Holstein cows[J]. Italian Journal of Animal Science, 2014, 13(2):3186.

DOI

[28]
马丽娜, 李蕾蕾, 康晓冬, 等. 饲粮蛋白质水平对哺乳期犊牛生长性能、血清生化、免疫和抗氧化指标以及血清代谢物的影响[J]. 动物营养学报, 2024, 36(9):5776-5792.

DOI

MA L N, LI L L, KANG X D, et al. Effects of dietary protein level on growth performance,serum biochemical,immune and antioxidant indices and serum metabolites of lactating calves[J]. Chinese Journal of Animal Nutrition, 2024, 36(9):5776-5792. (in Chinese)

[29]
OWEN O E, KALHAN S C, HANSON R W. The key role of anaplerosis and cataplerosis for citric acid cycle function[J]. Journal of Biological Chemistry, 2002, 277(34):30409-30412.

DOI PMID

[30]
CHOI I, SON H, BAEK J H. Tricarboxylic acid (TCA) cycle intermediates:regulators of immune responses[J]. Life, 2021, 11(1):69.

DOI

[31]
CALZADA E, ONGUKA O, CLAYPOOL S M. Phosphatidylethanolamine metabolism in health and disease[J]. International Review of Cell and Molecular Biology, 2016, 321:29-88.

DOI PMID

[32]
TASSEVA G, BAI H D, DAVIDESCU M, et al. Phosphatidylethanolamine deficiency in mammalian mitochondria impairs oxidative phosphorylation and alters mitochondrial morphology[J]. Journal of Biological Chemistry, 2013, 288(6):4158-4173.

DOI PMID

[33]
LONGO N, FRIGENI M, PASQUALI M, et al. Carnitine transport and fatty acid oxidation[J]. Biochimica et Biophysica Acta:Molecular Cell Research, 2016, 1863(10):2422-2435.

DOI

[34]
GHAFFARI M H, SADRI H, SCHUH K, et al. Alterations of the acylcarnitine profiles in blood serum and in muscle from periparturient cows with normal or elevated body condition[J]. Journal of Dairy Science, 2020, 103(5):4777-4794.

DOI PMID

[35]
ISRAELYAN N, MARGOLIS K G. Serotonin as a link between the gut-brain-microbiome axis in autism spectrum disorders[J]. Pharmacological Research, 2018, 132:1-6.

DOI PMID

[36]
GAO K, MU C L, FARZI A, et al. Tryptophan metabolism:a link between the gut microbiota and brain[J]. Advances in Nutrition, 2020, 11(3):709-723.

DOI

[37]
TAKIĆ M, RANKOVIĆ S, GIREK Z, et al. Current insights into the effects of dietary α-linolenic acid focusing on alterations of polyunsaturated fatty acid profiles in metabolic syndrome[J]. International Journal of Molecular Sciences, 2024, 25(9):4909.

DOI

[38]
HANNA V S, HAFEZ E A A. Synopsis of arachidonic acid metabolism:a review[J]. Journal of Advanced Research, 2018, 11:23-32.

DOI

[39]
白储宁, 姜雅静, 张名爱, 等. 色氨酸对产蛋期种鹅生产性能、血清生化和生殖激素指标及肝脏抗氧化指标的影响[J/OL]. 动物营养学报, 2026:1-9(2026-06-15)[2026-06-17].

BAI C N, JIANG Y J, ZHANG M A, et al. Effects of tryptophan on performance,serum biochemical and reproductive hormone indexes and liver antioxidant indexes of breeding geese during laying period[J/OL]. Chinese Journal of Animal Nutrition, 2026:1-9(2026-06-15)[2026-06-17]. in Chinese)

Outlines

/