RESEARCH PAPER

Effects of Dietary Supplementation with Rhizoma phragmitis Powder on Growth Performance, Plasma Biochemical Indices, Antioxidant Capacity and Liver Transcriptome of Megalobrama amblycephala

  • PENG Chao ,
  • WANG Ronghua ,
  • SONG Zirui ,
  • LIU Yingmei ,
  • ZHU Yulei ,
  • XIAO Shoufang ,
  • ZHANG Fuzhi ,
  • LEI Yanju ,
  • SHAO Liye , *
Expand
  • Key Laboratory of Health Aquaculture and Product Processing in Dongting Lake Area of Hunan Province, Hunan Provincial Key Laboratory for Molecular Immunity Technology of Aquatic Animal Diseases, College of Life and Environmental Sciences, Hunan University of Arts and Science, Changde 415000, China
* lecturer, E-mail:

Received date: 2026-01-28

  Online published: 2026-09-12

Abstract

This experiment was conducted to investigate the effects of dietary supplementation with Rhizoma phragmitis powder (RPP) on growth performance, plasma biochemical indices, antioxidant capacity and liver transcriptome of Megalobrama amblycephala. A total of 120 healthy fish with an initial body weight of (44.48±0.20) g were randomly assigned to four groups, each with three replicates of ten fish per replicate. The fish were fed diets supplemented with 0 (control), 0.5%, 1.0% and 3.0% RPP, respectively, for 53 days. The results showed as follows: 1) no significant differences were observed in weight gain rate and feed intake among all groups (P>0.05); 2) compared with the control group, the activities of plasma alanine aminotransferase and aspartate aminotransferase were significantly decreased in all RPP supplemental groups (P<0.05), while the contents of plasma total protein and globulin were significantly reduced in 3.0% RPP supplemental group (P<0.05); 3) dietary supplementation with 3.0% RPP alleviated the liver tissue swelling, vacuolation, and mononuclear inflammatory cell aggregation, but concurrently increased the number of adipocytes in liver and induced hemosiderin deposition in spleen; 4) compared with the control group, the liver total antioxidant capacity, superoxide dismutase activity and catalase activity in 3.0% RPP group were significantly or extremely significantly increased (P<0.05 or P<0.01); 5) transcriptome analysis revealed that differentially expressed genes (DEGs) in liver were significantly enriched in multiple innate immunity-related signaling pathways, including the Toll-like receptor signaling pathway, C-type lectin receptor signaling pathway, retinoic acid-inducible gene-Ⅰ-like receptor signaling pathway, NOD-like receptor signaling pathway, mitogen activated protein kinase (MAPK) signaling pathway, autophagy, lysosome and apoptosis. In conclusion, dietary supplementation with RPP has application potential in improving liver function, enhancing antioxidant capacity, and modulating immune responses in Megalobrama amblycephala, but at the high supplementation level (3.0%), it also exhibits negative effects, including induced lipid accumulation in liver and iron metabolic disorder in spleen, demonstrating a dual regulatory role.

Cite this article

PENG Chao , WANG Ronghua , SONG Zirui , LIU Yingmei , ZHU Yulei , XIAO Shoufang , ZHANG Fuzhi , LEI Yanju , SHAO Liye . Effects of Dietary Supplementation with Rhizoma phragmitis Powder on Growth Performance, Plasma Biochemical Indices, Antioxidant Capacity and Liver Transcriptome of Megalobrama amblycephala[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 6853 -6870 . DOI: 10.12418/CJAN2026.548

随着集约化水产养殖模式的推广,高密度养殖容易破坏水体生态平衡,引发养殖环境恶化和病害频发等问题[1]。目前,病害防控多依赖化学药物和抗生素,但其过度使用可能导致环境污染、耐药病原体产生等风险,进而威胁公共健康安全[2]。因此,亟需开发绿色、安全且高效的替代产品,以减少水产养殖对抗生素的依赖。
芦根为禾本科植物芦苇的根茎,作为传统中药材,其味甘性寒,归肺、胃经,具有清热泻火、生津止渴、除烦止呕及利尿等功效[3]。研究表明,芦根富含维生素B1、维生素B2、维生素C、蛋白质、多糖、氨基酸及多种活性成分,具有解热、抗炎和镇静等药理作用[4-5]。在养殖领域,芦根凭借其丰富的营养成分和天然生物活性物质,展现出作为绿色饲料添加剂的潜力。研究表明,其活性成分不仅能够调节动物机体代谢,增强抗氧化能力,还可通过调节免疫相关基因表达、提升免疫相关酶活性,增强养殖动物的免疫功能[6-8]
团头鲂(Megalobrama amblycephala),俗称武昌鱼,是我国淡水养殖的重要经济品种。据2024年中国渔业统计年鉴数据,我国2023年团头鲂产量达738 727 t。然而,在集约化高密度养殖条件下,团头鲂常因病原体感染和环境胁迫而病害频发,已给产业造成重大经济损失[9]。芦根作为一种传统中药,在临床中已表现出对多种疾病的良好疗效,但其在水产饲料中的应用尚少有报道。因此,本试验旨在探究饲料中添加芦根粉对团头鲂生长性能、血浆生化指标、抗氧化能力和肝脏转录组的影响,以期为芦根粉在水产饲料中的开发和应用提供参考。

1 材料与方法

1.1 试验材料

试验所用芦根购自本地药店,经粉碎过筛后制得芦根粉。经广州汇标检测技术中心对芦根粉中主要有效成分进行定量检测,其中多糖含量为3.23%,总酚酸含量为0.14%,总黄酮含量为0.47%。
试验用团头鲂购自湖南省常德市当地养殖场;在正式试验前,所有鱼在养殖桶中驯化2周。

1.2 试验设计

本试验所有程序均获湖南文理学院动物实验伦理委员会批准(批准编号:JSDX-2022-015;批准日期:2023-03-09)。选取120尾体格健康、初始体重为(44.48±0.20) g的团头鲂,随机分为4组,每组3个重复,每个重复10尾鱼。各组分别饲喂添加0(对照)、0.5%、1.0%和3.0%芦根粉的饲料。试验期53 d。饲料原料经粉碎后过0.43 mm孔径筛,并与不同比例芦根粉充分混匀,使用饲料制粒机加工成直径为3.0 mm的颗粒饲料。饲料组成及营养水平见表1
表1 饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of diets (DM basis)

项目
Items
芦根粉添加水平
Rhizoma phragmitis powder supplemental levels/%
0(对照Control) 0.5 1.0 3.0
原料Ingredients
鱼粉Fish meal 5.00 5.00 5.00 5.00
豆粕Soybean meal 23.00 23.00 23.00 23.00
菜籽粕Rapeseed meal 16.00 16.00 16.00 16.00
棉籽粕Cottonseed meal 10.00 10.00 10.00 10.00
小麦Wheat 16.00 16.00 16.00 16.00
米糠粕Rice bran meal 16.00 16.00 16.00 16.00
膨润土Bentonite clay 2.00 2.00 2.00 2.00
微晶纤维素Microcrystalline cellulose 3.00 2.50 2.00
芦根粉Rhizoma phragmitis powder 0.50 1.00 3.00
大豆油Soybean oil 3.60 3.60 3.60 3.60
氯化钠NaCl 0.40 0.40 0.40 0.40
磷酸二氢钙Ca(H2PO4)2 2.00 2.00 2.00 2.00
羧甲基纤维素Carboxymethyl cellulose 1.85 1.85 1.85 1.85
氯化胆碱Choline chloride 0.15 0.15 0.15 0.15
预混料Premix1) 1.00 1.00 1.00 1.00
合计Total 100.00 100.00 100.00 100.00
营养水平Nutrient levels2)
粗蛋白质CP 33.75 33.29 33.58 33.56
粗脂肪EE 5.92 5.96 5.87 5.81
粗灰分Ash 10.35 10.34 10.27 10.40
总能GE/(MJ/kg) 18.74 18.67 18.73 18.72

1)预混料为每千克饲料提供 The premix provided the following per kg of diets:VA 4 797 IU,VD 1 000 IU,VE 50 IU,VK 10 mg,VB1 20 mg,VB2 20 mg,VB6 20 mg,VB12 0.02 mg,叶酸 folic acid 5 mg,泛酸 pantothenic acid 50 mg,肌醇 inositol 100 mg,VB3 100 mg,生物素 biotin 0.1 mg,VC 100 mg,KCl 200 mg,KI (1%) 60 mg,CoCl2·6H2O (1%) 50 mg,CuSO4·5H2O 30 mg,FeSO4·H2O 400 mg,ZnSO4·H2O 400 mg,MnSO4·H2O 150 mg,Na2SeO3·5H2O (1%) 65 mg,MgSO4·H2O 2 000 mg,沸石粉 zeolite powder 3 700.2 mg,小麦粉 wheat meal 2 468 mg。

2)营养水平为根据AOAC(1995)实测值。Nutrient levels were measured values based on AOAC (1995).

1.3 饲养管理

每个重复团头鲂饲养于同一养殖桶(直径0.8 m,高0.6 m;体积约300 L)。试验期间,每日分别于09:00和16:00各投喂1次至饱食状态。饲养过程中每天观察试验鱼摄食和健康情况,及时清除残饵和粪便,并定期监测水质指标。养殖水体维持如下条件:温度26~30 ℃,pH 7.5~7.8,溶解氧浓度6.0~8.5 mg/L,氨氮浓度0.05~0.20 mg/L。

1.4 样品采集

饲养试验结束后,每个重复随机选取1尾试验鱼,用MS-222麻醉,随后进行样品采集。采用含0.2%肝素钠抗凝剂的注射器采集血液,于4 ℃静置1 h后1 793×g离心15 min,收集上清液用于血浆生化指标测定;取部分肝脏组织样品保存于-80 ℃,用于后续基因表达、酶活性测定及转录组分析;另取部分肝脏和脾脏组织于4%多聚甲醛中固定,用于组织学观察。

1.5 测定指标

1.5.1 生长性能

试验开始和结束时,以重复为单位对试验鱼进行称重,计算增重率;试验期间记录试验鱼饲料投喂量、剩余量和消耗量,计算摄食量。

1.5.2 血浆生化指标

血浆生化指标测定由常德力源医学检验中心完成,测定指标包括:血浆丙氨酸氨基转移酶(ALT)、天冬氨酸氨基转移酶(AST)、总蛋白(TP)、白蛋白(ALB)、球蛋白(GLB)、尿素氮(UN)、尿酸(UA)和肌酐(CREA)活性或含量。

1.5.3 肝脏抗氧化指标

将肝脏样品在冰浴条件下用预冷的磷酸盐缓冲液(PBS,pH 7.4)进行匀浆,匀浆液于1 301×g离心15 min,取上清液。按照试剂盒(南京建成生物工程研究所)说明书所述方法,测定肝脏总抗氧化能力(T-AOC)、超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GPx)和过氧化氢酶(CAT)活性以及丙二醛(MDA)含量。

1.5.4 肝脏和脾脏组织结构

将肝脏和脾脏组织用4%多聚甲醛固定24 h后,进行梯度脱水、浸蜡、包埋、切片和脱蜡后苏木精-伊红(HE)染色,风干后封片进行观察并拍照。

1.5.5 肝脏转录组分析

采用TRIzol试剂盒(Invitrogen,美国)提取肝脏组织样品总RNA后,委托北京百迈客生物科技有限公司完成文库的构建和测序工作,建好的测序文库用Illumina HiSeqTM平台进行测序。对原始reads进行修剪后利用Trinity 2.0.6软件对reads进行拼接和组装,构建转录本。采用DIAMOND将非重复序列基因(unigene)比对至NR、Swiss-Prot、COG、KOG和KEGG数据库,以获取KEGG通路等同源性注释结果。使用InterProScan基于InterPro集成数据库对unigene进行GO功能同源性分析。在预测unigene的氨基酸序列后,利用HMMER软件与Pfam数据库进行比对,进一步获取unigene的功能注释信息。最终,统计获得各数据库中的注释unigene数量。采用错误发现率(FDR)和差异倍数(FC)的对数值(log2FC)作为筛选标准,设定FDR<0.05且|log2FC|>2为差异显著性阈值。

1.5.6 实时荧光定量PCR(qRT-PCR)验证转录组测序结果

采用TRIzol试剂盒(Invitrogen,美国)从肝脏组织中提取总RNA,并采用PrimeScriptTM RT试剂盒(TaKaRa)合成cDNA,产物保存于-80 ℃备用。qRT-PCR在LightCycler 480 Ⅱ系统(Roche,瑞士)上进行,使用MonAmpTM ChemoHS qPCR Mix(Monad Biotech),引物序列见表2。反应体系为20 μL,包括10 μL MonAmpTM ChemoHS qPCR Mix、正向和反向引物各0.4 μL、1 μL cDNA 模板以及8.2 μL焦碳酸二乙酯(DEPC)水。反应程序:95 ℃ 5 min;95 ℃ 10 s、55 ℃ 10 s、72 ℃ 15 s,共45个循环。每个样本设3个技术重复,试验独立重复3次。数据通过LightCycler 480软件采集,采用2-ΔΔCt法以β-肌动蛋白(β-actin)为内参进行相对定量。
表2 实时荧光定量PCR引物序列

Table 2 Primer sequences for qRT-PCR

基因
Genes
引物序列
Primer sequences (5'—3')
GenBank登录号
GenBank accession numbers
核因子-κB抑制因子α
NFKBIA
F:CTGGTGGATGACTGTGGT
R:TGCTCCTGTGCGTTTAT
KU554445.1
肿瘤坏死因子受体超家族成员14
TNFRSF14
F:CAGTGCCGATTTGAG
R:TCTGATGTCTTTGTCCC
XM_048209044.1
干扰素α/β受体
IFNAR
F:TCGGCGTTTCAATCC
R:GCTGCTCAGAGGGTCA
XM_048192472.1
补体9
C9
F:GGCGGGACAATCTCA
R:TTCCGTTTGGTACACCTC
XM_048188403.1
丝裂原活化蛋白激酶14
MAPK14
F:TTCTCGCCCGCTACCA
R:TCCCGTCATCTCATCGTCAG
XM_048209822.1
核因子-κB
NF-κB
F:AACAGAGCCGAGGGTA
R:AGATGTCCGCCATAGAA
XM_048204723.1
三联体结构域蛋白23
TRIM23
F:AATGCGGTGAAGGTAAAG
R:ACGGGTCAAGCAGTCG
XM_048174744.1
含整合素αFG-GAP重复蛋白1
ITFG1
F:CAGAGTGAAAGGGTGGA
R:TTGATTCGGTGGTGAG
XM_048184707.1
干扰素调节因子1
IRF1
F:TTCAGGGAGGGATTTACCA
R:CGCCGCAGCCTTTGTT
XM_048166669.1
NOD样受体家族CARD结构域蛋白3
NLRC3
F:CTCTGCCGTTTCGTG
R:TGTAAATCTGCCTCCCT
XM_048155547.1
白细胞介素-10受体
IL-10R
F:GAAGCCTCCCAACG
R:AACCATTTCAGCCTTTA
XM_048189105.1
热休克蛋白70
HSP70
F:CGCAGTTATCACAGTTCCA
R:AAAGTCCTCGCCACCC
XM_048208288.1
β-肌动蛋白
β-actin
F:CGTGCTGTTTTCCCTTCCATT
R:CAATACCGTGCTCAAAGGATACTT
AY170122.2

1.6 数据统计分析

试验数据采用SPSS 20和GraphPad Prism 8.0.2软件进行单因素方差(one-way ANOVA)、Duncan氏多重比较及Dunnett检验分析,结果数据以“平均值±标准差(mean±SD)”形式表示,显著性水平设定为P<0.05。

2 结果与分析

2.1 饲料中添加芦根粉对团头鲂生长性能的影响

试验期间,各组团头鲂均未出现死亡,成活率均为100%。由表3可知,随着饲料中芦根粉添加水平的提高,团头鲂增重率呈逐渐下降趋势,但各组间无显著差异(P>0.05);各组间摄食量无显著差异(P>0.05)。结果表明,饲料中添加0.5%~3.0%芦根粉对团头鲂生长性能无显著影响。
表3 饲料中添加芦根粉对团头鲂生长性能的影响

Table 3 Effects of dietary supplementation with Rhizoma phragmitis powder on growth performance of Megalobrama amblycephala

项目
Items
芦根粉添加水平
Rhizoma phragmitis powder supplemental levels/%
P
P-value
0(对照Control) 0.5 1.0 3.0
增重率Weight gain rate/% 74.18±0.11 73.08±8.36 71.77±8.18 68.22±10.81 0.886
摄食量Feed intake/(g/尾) 93.37±0.44 93.61±0.10 93.45±0.27 93.52±0.16 0.804

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。表4同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as Table 4.

2.2 饲料中添加芦根粉对团头鲂血浆生化指标的影响

表4可知,各组间团头鲂血浆ALB、UN、UA和CREA含量无显著差异(P>0.05)。与对照组相比,饲料中添加0.5%~3.0%芦根粉均显著降低血浆ALT和AST活性(P<0.05)。随着饲料中芦根粉添加水平的提高,血浆TP、ALB、GLB和UN含量总体呈下降趋势;其中,与对照组相比,3.0%芦根粉添加组血浆TP和GLB含量显著降低(P<0.05)。
表4 饲料中添加芦根粉对团头鲂血浆生化指标的影响

Table 4 Effects of dietary supplementation with Rhizoma phragmitis powder on plasma biochemical indices of Megalobrama amblycephala

项目
Items
芦根粉添加水平
Rhizoma phragmitis powder supplemental levels/%
P
P-value
0(对照Control) 0.5 1.0 3.0
丙氨酸氨基转移酶ALT/(U/L) 60.37±7.75a 33.07±9.91b 36.30±2.61b 35.43±9.68b 0.010
天冬氨酸氨基转移酶AST/(U/L) 290.50±13.16a 171.87±28.25b 171.10±21.96b 162.73±16.85b <0.001
总蛋白TP/(g/L) 42.97±6.94a 36.37±2.26ab 42.07±0.12a 31.30±2.66b 0.020
白蛋白ALB/(g/L) 16.43±2.89 15.87±2.07 17.40±0.50 12.93±1.20 0.090
球蛋白GLB/(g/L) 26.53±4.24a 20.50±2.29bc 24.67±0.60ab 18.37±1.48c 0.015
尿素氮UN/(mmol/L) 1.05±0.22 0.91±0.18 0.87±0.07 0.69±0.07 0.070
尿酸UA/(μmol/L) 71.13±21.67 93.30±66.42 70.93±37.84 147.07±24.11 0.161
肌酐CREA/(μmol/L) 3.53±1.24 2.60±0.26 4.03±0.06 3.80±1.13 0.255

2.3 饲料中添加芦根粉对团头鲂肝脏抗氧化指标的影响

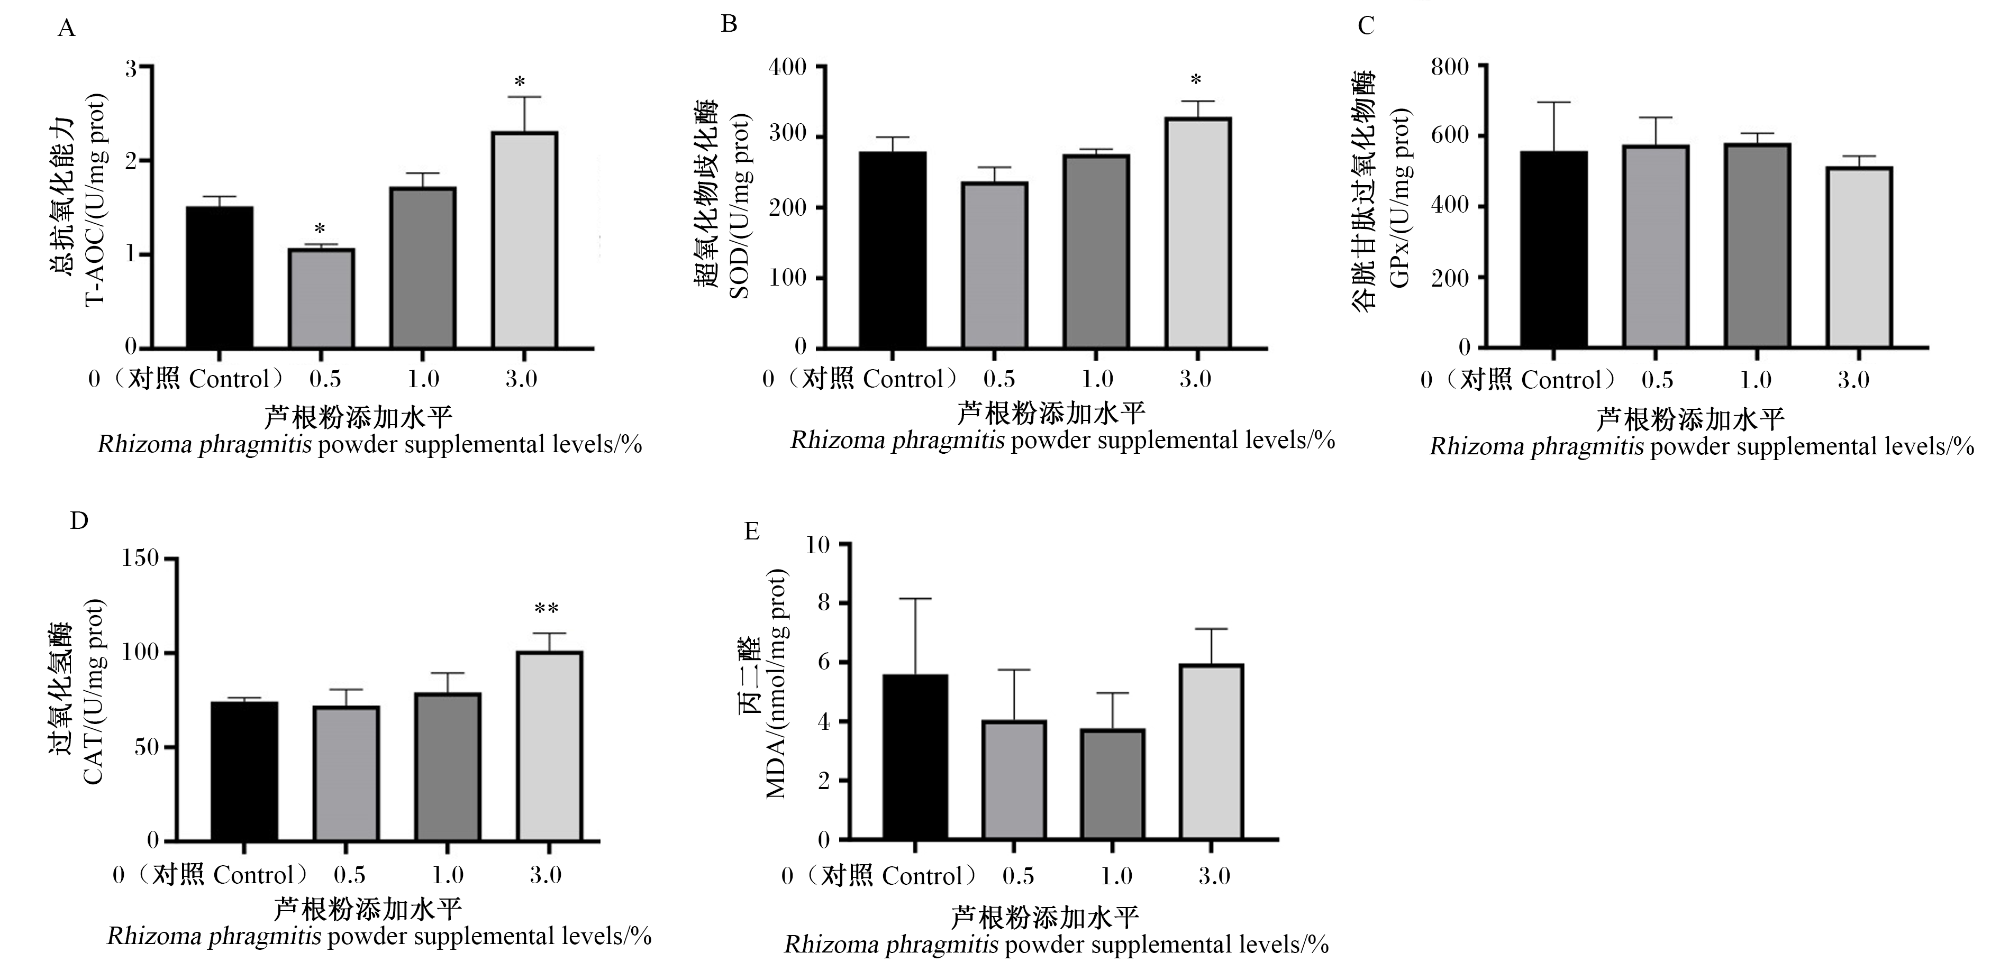
图1所示,与对照组相比,0.5%芦根粉添加组团头鲂肝脏T-AOC显著降低(P<0.05);3.0%芦根粉添加组肝脏T-AOC以及SOD和CAT活性显著或极显著提高(P<0.05或P<0.01)。各组间肝脏GPx活性和MDA含量无显著差异(P>0.05)。
图1 饲料中添加芦根粉对团头鲂肝脏抗氧化指标的影响

*表示与对照组相比差异显著(P<0.05),**表示与对照组相比差异极显著(P<0.01)。

Fig.1 Effects of dietary supplementation with Rhizoma phragmitis powder on liver antioxidant indices of Megalobrama amblycephala (n=3)

* indicated significant difference compared with the control group (P<0.05), and ** indicated extremely significant difference compared with the control group (P<0.01).

2.4 饲料中添加芦根粉对团头鲂肝脏和脾脏组织结构的影响

图2所示,与对照组相比,1.0%和3.0%芦根粉添加组团头鲂肝细胞排列更为紧密,肝细胞肿胀和空泡化现象明显减轻,且未观察到明显的单核细胞炎性聚集;同时,3.0%芦根粉添加组肝细胞呈多边形,边界清晰,排列整齐规则。然而,随着饲料中芦根粉添加水平的提高,1.0%和3.0%芦根粉添加组肝脏中脂肪细胞数量有所增多。饲料中添加芦根粉对脾脏组织结构未见明显影响,但在1.0%和3.0%芦根粉添加组脾脏中观察到含铁血黄素沉积现象。
图2 饲料中添加芦根粉对团头鲂肝脏和脾脏组织结构的影响

A和E为对照组肝脏,B和F为0.5%芦根粉添加组肝脏,C和G为1.0%芦根粉添加组肝脏,D和H为3.0%芦根粉添加组肝脏;I和M为对照组脾脏,J和N为0.5%芦根粉添加组脾脏,K和O为1.0%芦根粉添加组脾脏,L和P为3.0%芦根粉添加组脾脏。△表示淋巴细胞,⇨表示脂肪细胞,☆表示肝细胞空泡化,➡表示含铁血黄素沉积。

Fig.2 Effects of dietary supplementation with Rhizoma phragmitis powder on tissue structure of liver and spleen of Megalobrama amblycephala (400×)

A and E were liver in the control group, B and F were liver in 0.5% Rhizoma phragmitis powder supplemental group, C and G were liver in 1.0% Rhizoma phragmitis powder supplemental group, and D and H were liver in 3.0% Rhizoma phragmitis powder supplemental group. I and M were spleen in the control group, J and N were spleen in 0.5% Rhizoma phragmitis powder supplemental group, K and O were spleen in 1.0% Rhizoma phragmitis powder supplemental group, and L and P were spleen in 3.0% Rhizoma phragmitis powder supplemental group. △ indicated lymphocyte cells, ⇨ indicated lipocytes, ☆ indicated hepatocyte vacuolations, and ➡ indicated hemosiderin deposition.

2.5 饲料中添加芦根粉对团头鲂肝脏转录组的影响

2.5.1 转录组测序数据统计

表5可知,各组团头鲂肝脏转录组测序获得的净读数(clean reads)为38 636 264~57 460 816,其中对照组为41 536 680~58 806 774;所有样本的Q30≥93.93%,GC含量≥45.08%,比对率为90.38%~93.76%。
表5 团头鲂肝脏转录组测序数据统计表

Table 5 Statistical table of liver transcriptome sequencing data of Megalobrama amblycephala

芦根粉添加水平
Rhizoma phragmitis
powder supplemental
levels/%
净读数
Clean reads
GC含量
GC content/%
Q30/% 比对读数
Mapped reads
比对率
Mapped ratio/%


0(对照Control)
58 806 774 46.39 95.28 53 825 045 91.53
42 065 638 45.67 95.47 38 654 725 91.89
41 536 680 46.68 96.10 38 907 421 93.67


0.5
44 349 524 45.38 94.97 40 612 604 91.57
41 078 448 45.20 94.59 37 404 598 91.06
44 442 736 45.08 95.01 40 212 493 90.48


1.0
53 450 278 46.25 93.93 48 308 990 90.38
57 460 816 45.98 94.66 52 291 567 91.00
49 421 026 46.10 95.06 45 131 786 91.32


3.0
38 636 264 47.06 95.77 36 224 666 93.76
42 793 226 45.65 94.61 39 257 040 91.74
42 523 356 45.78 95.09 38 523 714 90.59

2.5.2 差异表达基因(differentially expressed genes,DEGs)鉴定
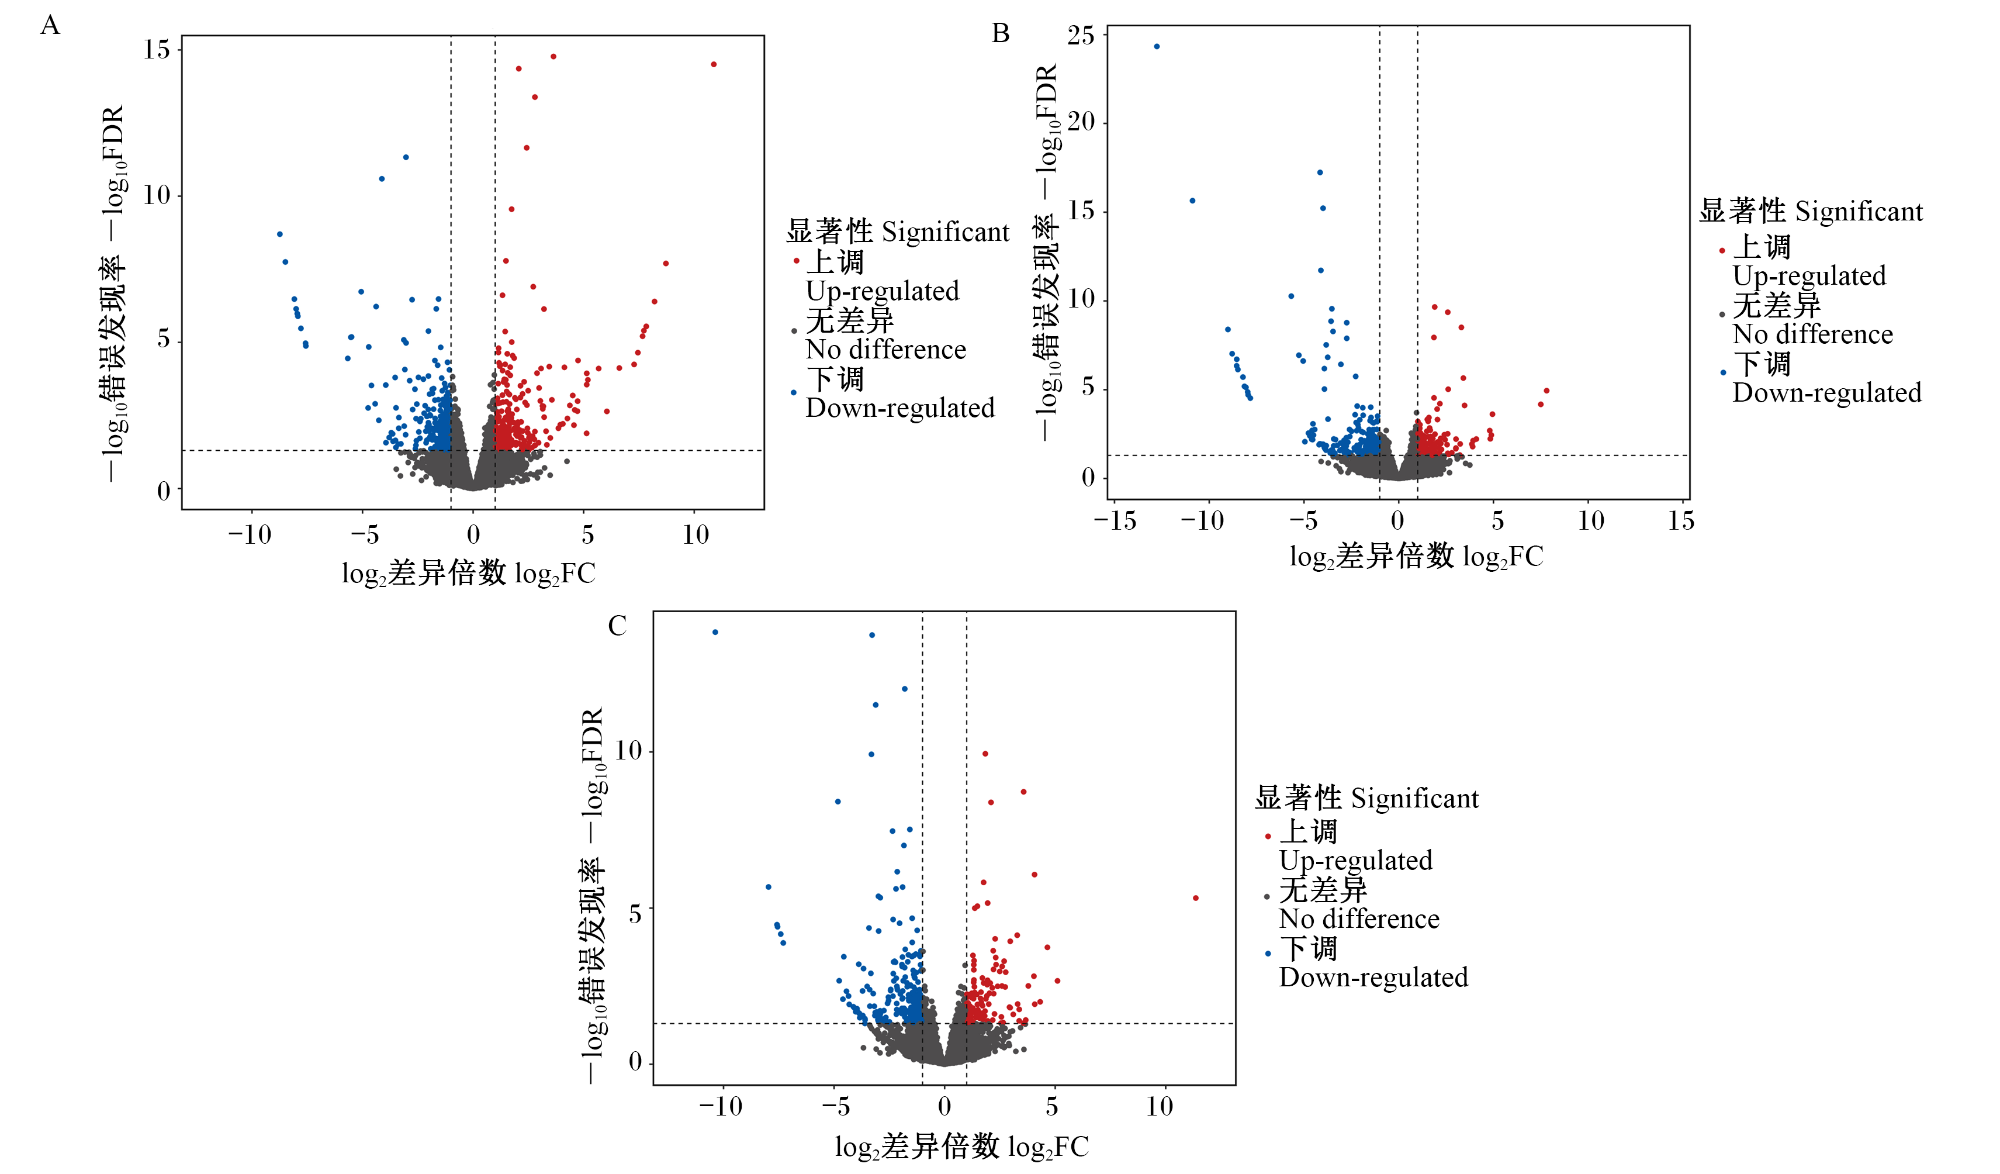
图3所示,以FDR<0.05且|log2FC|>2为判断依据,与对照组相比,0.5%芦根粉添加组团头鲂肝脏转录组有287个基因表达显著上调,289个基因表达显著下调;1.0%芦根粉添加组有164个基因表达显著上调,241个基因表达显著下调;3.0%芦根粉添加组有130个基因表达显著上调,245个基因表达显著下调。
图3 团头鲂肝脏转录组差异表达基因火山图

A、B和C分别表示0.5%、1.0%和3.0%芦根粉添加组与对照组进行比较。

Fig.3 Volcano plots of DEGs in liver transcriptome of Megalobrama amblycephala

A, B and C represented 0.5%, 1.0% and 3.0% Rhizoma phragmitis powder supplemental groups compared with the control group, respectively.

2.5.3 DEGs GO功能和KEGG通路富集分析

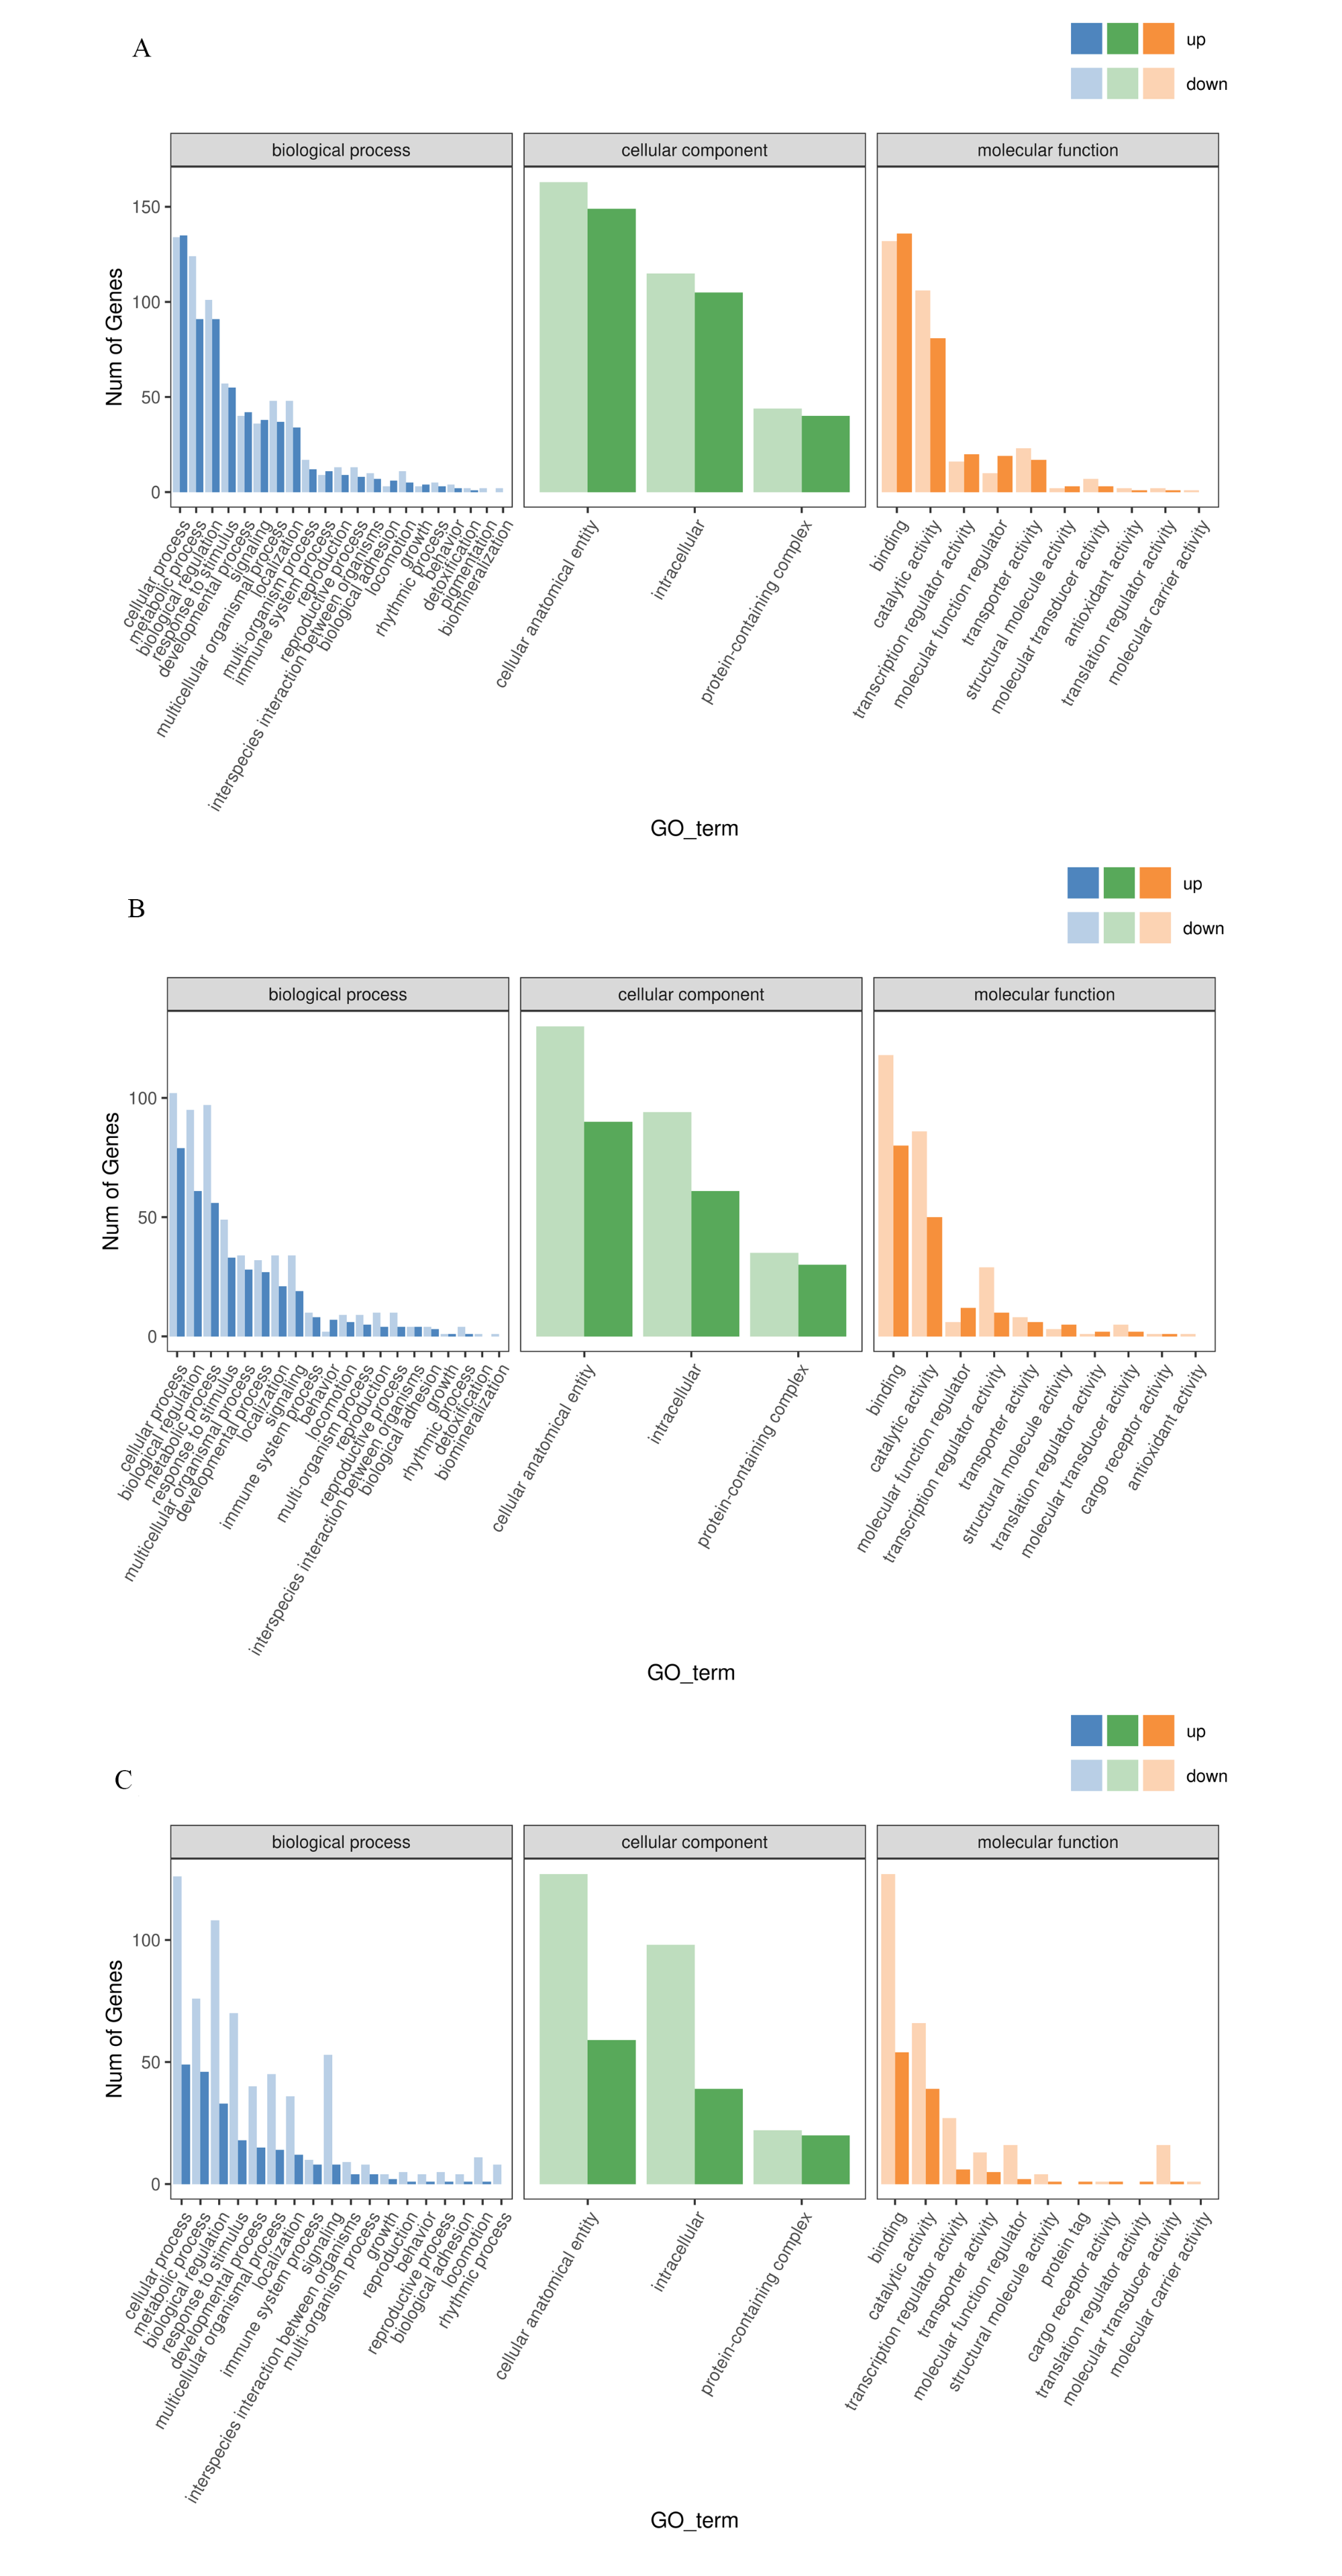
图4所示,GO功能富集分析柱状图显示,注释到的DEGs有生物过程、细胞组分和分子功能3大类别。与对照组相比,0.5%芦根粉添加组DEGs在生物过程中主要注释到细胞过程、代谢过程和生物调节等,在细胞组分中主要注释到细胞解剖实体、细胞内和含蛋白质复合物,在分子功能中主要注释到结合、催化活性和转录调节活性等(图4-A);1.0%芦根粉添加组DEGs在生物过程中主要注释到细胞过程、生物调节和代谢过程等,在细胞组分中主要注释到细胞解剖实体、细胞内和含蛋白质复合物,在分子功能中主要注释到结合、催化活性和分子功能调节因子等(图4-B);3.0%芦根粉添加组DEGs在生物过程中主要注释到细胞过程、代谢过程和生物调节等,在细胞组分中主要注释到细胞解剖实体、细胞内和含蛋白质复合物,在分子功能中主要注释到结合、催化活性和转录调节活性等(图4-C)。
图4 团头鲂肝脏转录组差异表达基因GO功能富集分析柱状图

A、B和C分别表示0.5%、1.0%和3.0%芦根粉添加组与对照组进行比较。A, B and C represented 0.5%, 1.0% and 3.0% Rhizoma phragmitis powder supplemental groups compared with the control group, respectively.

GO_term:GO条目;up:上调 up-regulated;down:下调 down-regulated;Num of Genes:基因数量;biological process:生物过程;cellular component:细胞组分;molecular function:分子功能;cellular process:细胞过程;metabolic process:代谢过程;biological regulation:生物调节;response to stimulus:应激反应;developmental process:发育过程;signaling:信号传递;multicellular organismal process:多细胞生物过程;localization:定位;multi-organism process:多生物体过程;immune system process:免疫系统过程;reproduction:生殖;reproductive process:生殖过程;interspecies interaction between organisms:生物种间相互作用;biological adhesion:生物黏附;locomotion:运动;growth:生长;rhythmic process:节律过程;behavior:行为;detoxification:解毒作用;pigmentation:色素沉着;biomineralization:生物矿化;cellular anatomical entity:细胞解剖实体;intracellular:细胞内;protein-containing complex:含蛋白质复合物;binding:结合;catalytic activity:催化活性;transcription regulator activity:转录调节活性;molecular function regulator:分子功能调节因子;transporter activity:转运体活性;structural molecule activity:结构分子活性;molecular transducer activity:分子转导活性;antioxidant activity:抗氧化活性;translation regulator activity:翻译调节活性;molecular carrier activity:分子载体活性;cargo receptor activity:货物受体活性;protein tag:蛋白质标签。

Fig.4 Histograms of GO functional enrichment analysis of DEGs in liver transcriptome of Megalobrama amblycephala

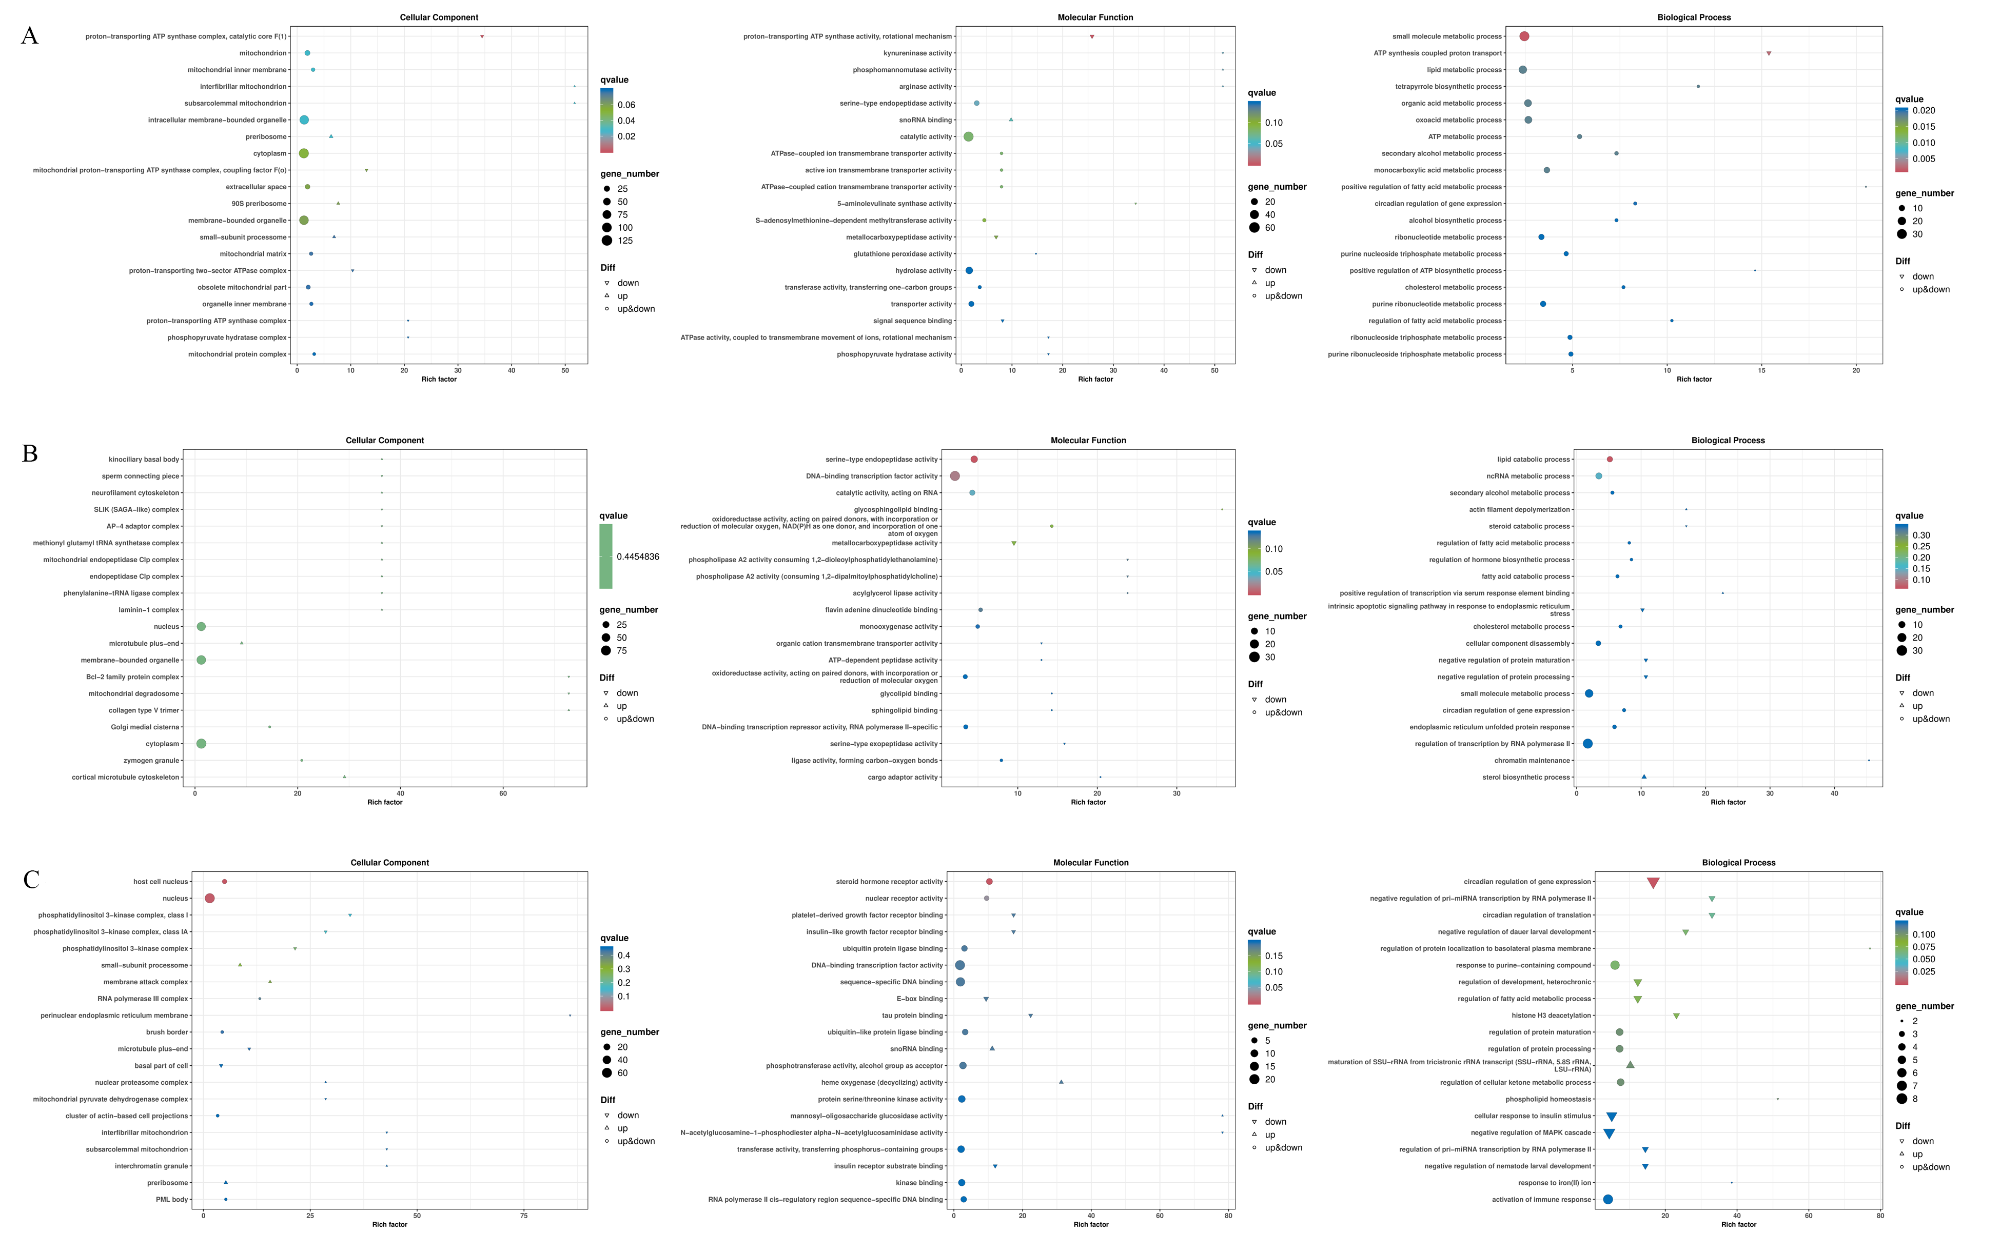
图5所示,GO功能富集分析气泡图显示,与对照组相比,0.5%芦根粉添加组DEGs主要注释到细胞内膜结合细胞器、细胞质和膜结合细胞器等(图5-A);1.0%芦根粉添加组DEGs主要注释到细胞核、膜结合细胞器和细胞质等(图5-B);3.0%芦根粉添加组DEGs主要注释到细胞核、DNA结合转录因子活性和序列特异性DNA结合等(图5-C)。
图5 团头鲂肝脏转录组差异表达基因GO功能富集分析气泡图

A、B和C分别表示0.5%、1.0%和3.0%芦根粉添加组与对照组进行比较。A, B and C represented 0.5%, 1.0% and 3.0% Rhizoma phragmitis powder supplemental groups compared with the control group, respectively.

Cellular Component:细胞组分;Molecular Function:分子功能;Biological Process:生物过程;qvalue:Q值;gene_number:基因数量;Diff:差异性 difference;down:下调 down-regulated;up:上调 up-regulated;up&down:上调和下调 up-regulated and down-regulated;Rich factor:富集因子。

限于篇幅,仅注释主要的条目名称 due to space limitation, only main term names were annotated。intracellular membrane-bounded organelle:细胞内膜结合细胞器:cytoplasm:细胞质;membrane-bounded organelle:膜结合细胞器;nucleus:细胞核;DNA-binding transcription factor activity:DNA结合转录因子活性;sequence-specific DNA binding:序列特异性DNA结合。

Fig.5 Bubble diagrams of GO functional enrichment analysis of DEGs in liver transcriptome of Megalobrama amblycephala

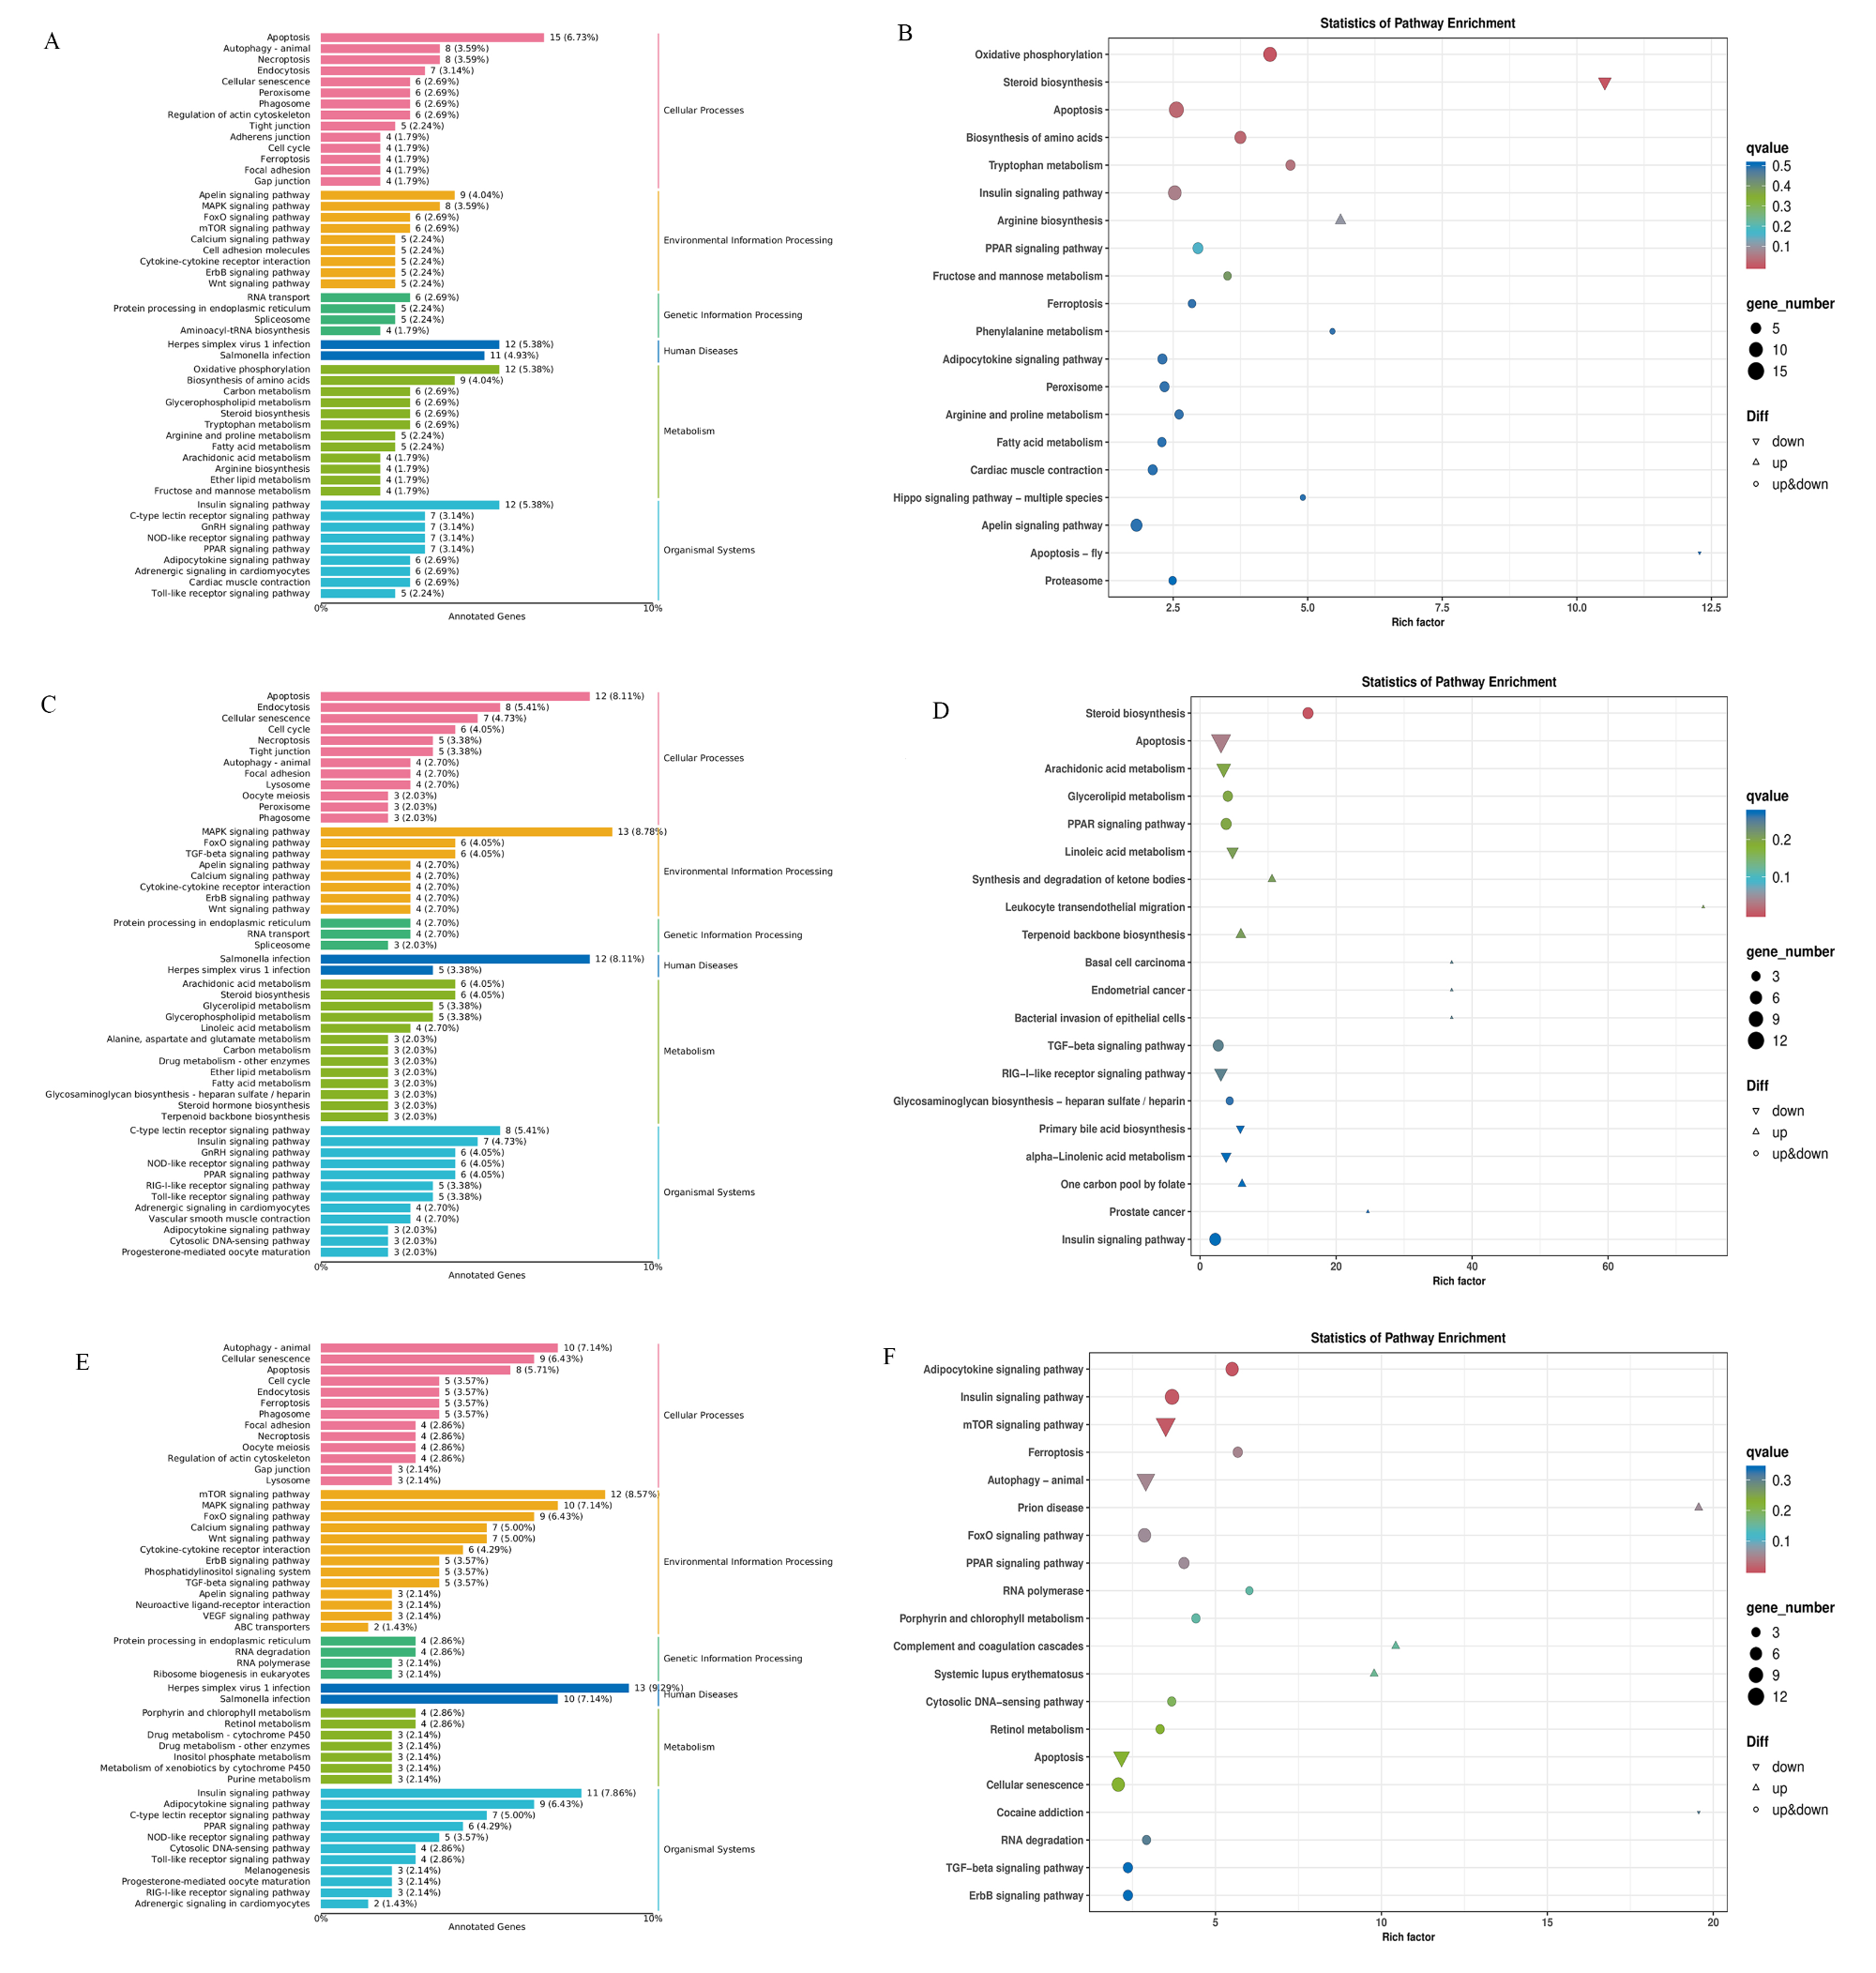
图6所示,KEGG通路富集分析发现,DEGs共注释到50个功能类别。与对照组相比,0.5%芦根粉添加组DEGs主要富集在细胞凋亡、Apelin信号通路、单纯疱疹病毒1型感染、氧化磷酸化和胰岛素信号通路等通路(图6-A),其中显著富集的前3条通路依次为氧化磷酸化、细胞凋亡和胰岛素信号通路(图6-B);1.0%芦根粉添加组DEGs主要富集在细胞凋亡、丝裂原活化蛋白激酶(MAPK)信号通路、沙门氏菌感染和花生四烯酸代谢等通路(图6-C),其中显著富集的前3条通路依次为细胞凋亡、花生四烯酸代谢和转化生长因子-β(TGF-β)信号通路(图6-D);3.0%芦根粉添加组DEGs主要富集在细胞自噬-动物、哺乳动物雷帕霉素靶蛋白(mTOR)信号通路、单纯疱疹病毒1型感染和胰岛素信号通路等通路(图6-E),其中显著富集的前3条通路依次mTOR信号通路、细胞自噬-动物和脂肪细胞因子信号通路(图6-F)。
图6 团头鲂肝脏转录组差异表达基因KEGG通路富集分析

A、C和E分别表示0.5%、1.0%和3.0%芦根粉添加组与对照组进行比较的柱状图,B、D和F分别表示0.5%、1.0%和3.0%芦根粉添加组与对照组进行比较的气泡图。A, C and E represented histograms of 0.5%, 1.0% and 3.0% Rhizoma phragmitis powder supplemental groups compared with the control group, and B, D and F represented bubble diagrams of 0.5%, 1.0% and 3.0% Rhizoma phragmitis powder supplemental groups compared with the control group, respectively.

Cellular Processes:细胞过程;Environmental Information Processing:环境信息处理;Genetic Information Processing:遗传信息处理;Human Diseases:人类疾病;Metabolism:代谢;Organismal Systems:生物体系统;Annotated Genes:注释基因;Statistics of Pathway Enrichment:通路富集统计;qvalue:Q值;gene_number:基因数量;Diff:差异性 difference;down:下调 down-regulated;up:上调 up-regulated;up&down:上调和下调 up-regulated and down-regulated;Rich factor:富集因子。

限于篇幅,仅注释主要的通路名称 due to space limitation, only main pathway names were annotated。Apoptosis:细胞凋亡;Apelin signaling pathway:Apelin信号通路;Herpes simplex virus l infection:单纯疱疹病毒1型感染;Oxidative phosphorylation:氧化磷酸化;Insulin signaling pathway:胰岛素信号通路;MAPK signaling pathway:丝裂原活化蛋白激酶信号通路;Salmonella infection:沙门氏菌感染;Arachidonic acid metabolism:花生四烯酸代谢;TGF-beta signaling pathway:转化生长因子-β信号通路;Autophagy-animal:细胞自噬-动物;mTOR signaling pathway:哺乳动物雷帕霉素靶蛋白信号通路;adipocytokine signaling pathway:脂肪细胞因子信号通路。

Fig.6 KEGG pathway enrichment analysis of DEGs in liver transcriptome of Megalobrama amblycephala

通过对免疫相关DEGs进行KEGG通路富集分析,结果见表6,与对照组相比,各芦根粉添加组DEGs显著富集的免疫相关信号通路主要包括:Toll样受体信号通路、C型凝集素受体信号通路、视黄酸诱导基因-Ⅰ(RIG-Ⅰ)样受体信号通路、NOD样受体信号通路、MAPK信号通路、细胞自噬、溶酶体和细胞凋亡。
表6 免疫相关差异表达基因KEGG通路富集分析

Table 6 KEGG pathway enrichment analysis of DEGs related to immunity

通路编号
Pathway ID
KEGG通路名称
KEGG pathway names
A B C
up&down up&down up&down
ko04620 Toll样受体信号通路Toll-like receptor signaling pathway 5 5 4
ko04625 C型凝集素受体信号通路C-type lectin receptor signaling pathway 7 8 7
ko04622 视黄酸诱导基因-Ⅰ样受体通路RIG-Ⅰ-like receptor signaling pathway 2 5 3
ko04621 NOD样受体信号通路NOD-like receptor signaling pathway 7 6 5
ko04010 丝裂原活化蛋白激酶信号通路MAPK signaling pathway 8 13 10
ko04140 细胞自噬Autophagy 8 4 10
ko04142 溶酶体Lysosome 4 4 3
ko04210 细胞凋亡Apoptosis 15 12 8

A、B和C分别表示0.5%、1.0%和3.0%芦根粉添加组与对照组进行比较。

up&down:上调和下调 up-regulated and down-regulated。

A, B and C represented 0.5%, 1.0% and 3.0% Rhizoma phragmitis powder supplemental groups compared with the control group, respectively.

2.5.4 通过qRT-PCR对筛选的免疫相关DEGs进行验证

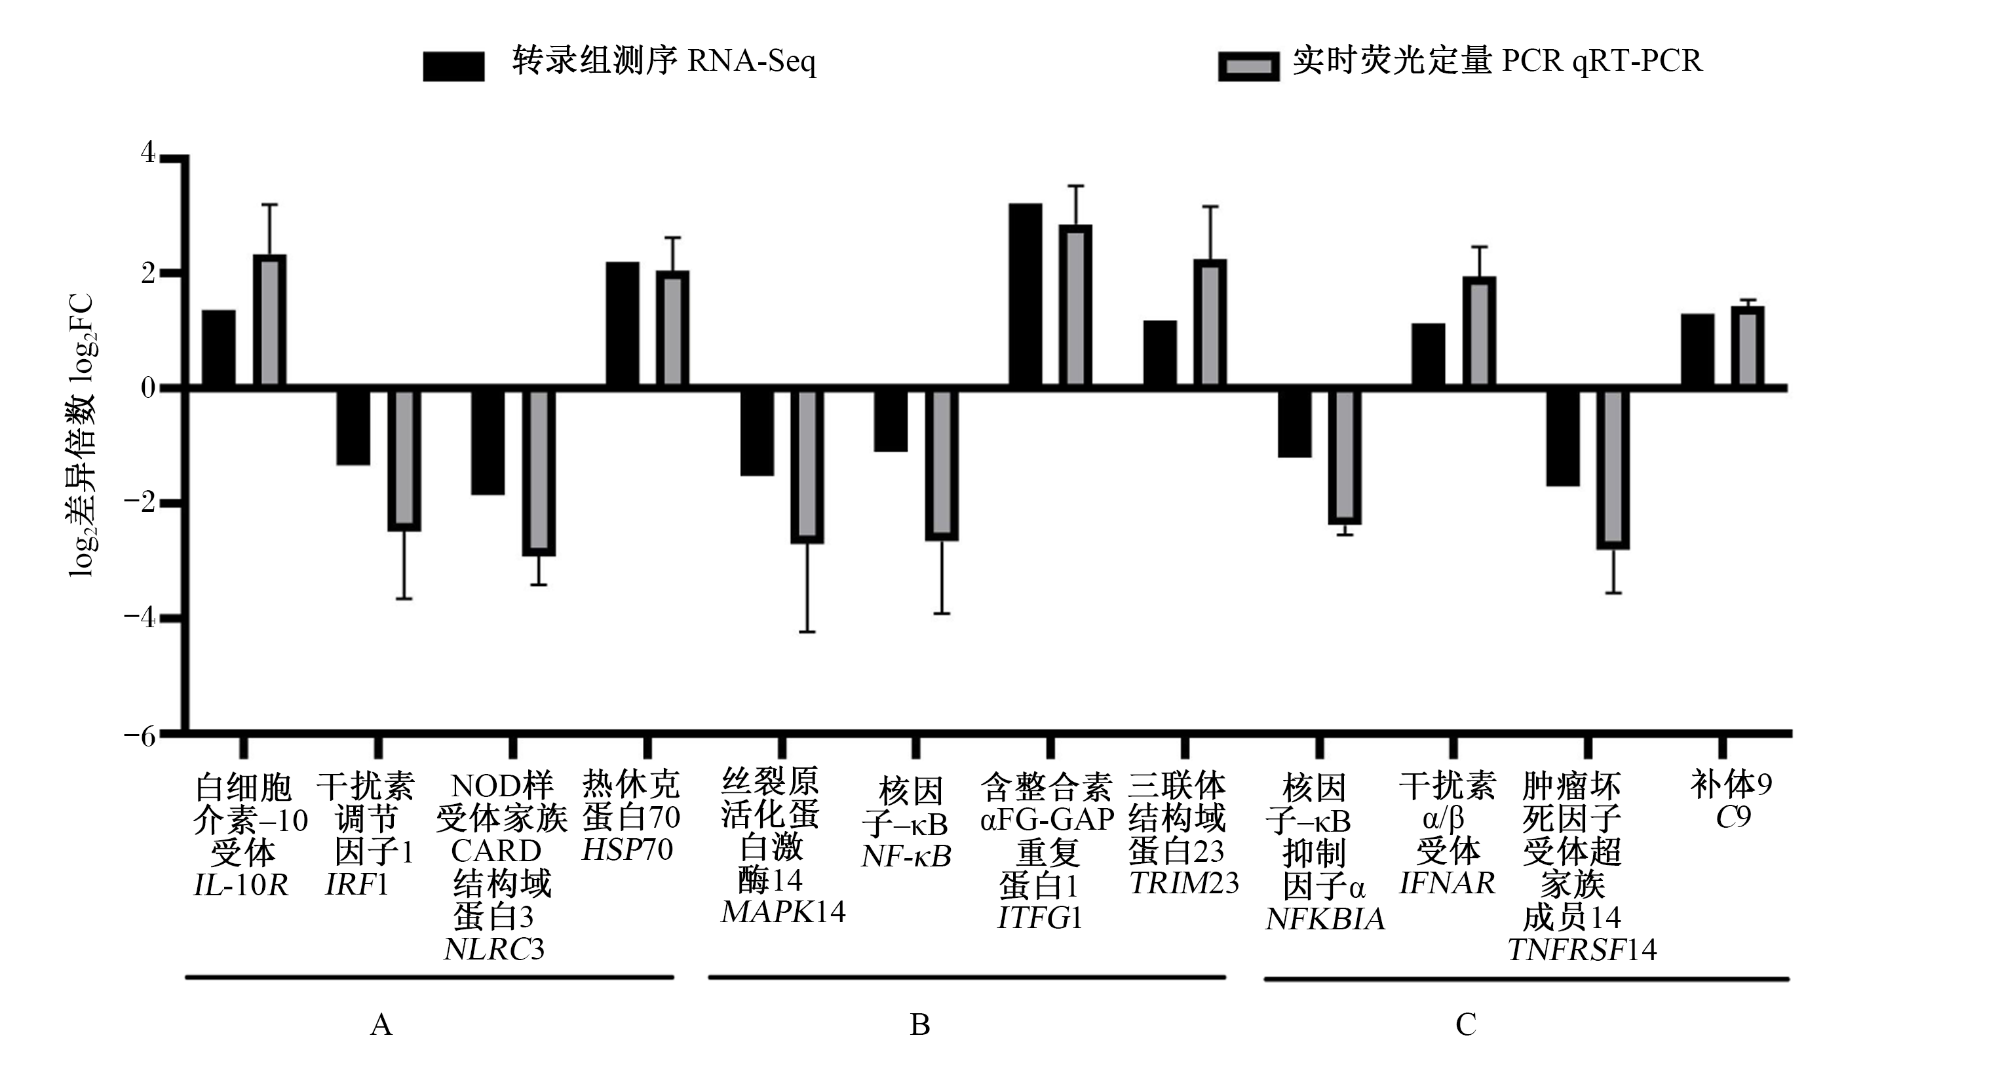
为验证转录组测序数据的可靠性,本研究随机筛选了12个与免疫相关的DEGs,并在各芦根粉添加组与对照组进行比较中,分别纳入2个上调和2个下调DEGs进行验证。如图7所示,qRT-PCR结果显示,上述DEGs的表达趋势与转录组测序结果基本一致,从而进一步支持了转录组测序结果的可靠性。
图7 qRT-PCR验证免疫相关差异表达基因

A、B和C分别表示0.5%、1.0%和3.0%芦根粉添加组与对照组进行比较。

Fig.7 Validation of DEGs related to immunity by qRT-PCR

A, B and C represented 0.5%, 1.0% and 3.0% Rhizoma phragmitis powder supplemental groups compared with the control group, respectively.

3 讨论

本试验中,各组团头鲂均未出现死亡,且组间增重率和摄食量无显著差异,表明饲料中添加0.5%~3.0%芦根粉对团头鲂生长性能无负面影响。鱼类血液的生化组分是反映其机体健康水平及营养状况的重要指标[10]。TP主要由ALB和GLB组成,二者在维持机体渗透压、参与物质运输以及调节免疫反应等生理过程中发挥重要作用。本研究中,各组间团头鲂血浆ALB含量无显著差异;但与对照组相比,3.0%芦根粉添加组血浆TP和GLB含量显著降低,这表明饲料中添加适宜水平芦根粉未对团头鲂蛋白质代谢产生不良影响。ALT和AST作为关键的转氨酶[11],其在血浆中的活性变化可指示肝细胞的损伤程度[12-13]。在肝细胞结构完整时,仅有少量转氨酶进入血液;而当肝细胞受损时,ALT和AST大量释放入血,导致血浆中酶活性升高。已有研究表明,芦苇根茎水提物能够有效抑制由四氯化碳诱导的肝细胞损伤所导致的转氨酶升高[14-15]。本研究结果显示,饲料中添加芦根粉能显著降低团头鲂血浆ALT和AST活性,且在0.5%~3.0%添加水平内效果稳定,表明芦根粉有助于改善团头鲂的肝脏功能。
生物机体在环境刺激下会导致活性氧(ROS)和活性氮(RNS)过度积累,进而引起细胞损伤[16]。T-AOC及SOD、CAT、GPx等抗氧化酶共同反映机体的抗氧化水平,可应对ROS的升高[17]。研究表明,芦根提取物及其多糖组分具有抗氧化作用。例如,芦笋(芦苇嫩苗)多糖可显著提高衰老小鼠血浆SOD和GPx活性,降低血浆脂质过氧化物含量[18];也能通过降低血浆MDA含量,提高血浆SOD和GPx活性,对大鼠肝脏纤维化发挥保护作用[19]。此外,芦根水提物或多糖可通过提高SOD和GPx活性、降低MDA含量,从而保护肾脏功能[8,20]。本研究发现,饲料中添加3.0%芦根粉显著提高团头鲂肝脏T-AOC以及SOD和CAT活性。肝脏转录组分析显示,MAPK信号通路在各芦根粉添加组中均显著富集,且该信号通路中生长停滞和DNA损伤诱导45(GADD45)、激活蛋白-1(AP-1)等抗氧化调控相关基因显著下调。GADD45作为氧化应激响应的关键调控因子,可通过激活上游激酶或直接相互作用介导p38 MAPK信号通路的活化[21]。已有研究证实,敲低GADD45α表达可抑制p38 MAPK信号通路活化,进而减轻氧化应激并提高SOD活性[22]。AP-1作为MAPK信号通路下游的核心转录因子,其下调可缓解氧化应激-炎症恶性循环[23]。二者可协同降低肝细胞氧化应激负荷,解除对核因子E2相关因子2(Nrf2)的抑制,进而高效启动SOD、CAT等抗氧化酶的表达。在鱼类中,MAPK信号通路是介导氧化应激信号的关键信号轴。已有研究表明,无论是环境胁迫(如冷应激、污染物暴露)还是营养免疫调节剂的作用,均通过激活或抑制MAPK信号通路来影响鱼类的抗氧化防御功能[24-26]。综上所述,推测芦根粉可能通过调控MAPK信号通路,特异性下调GADD45、AP-1等损伤介导基因的表达,进而提高SOD、CAT等抗氧化酶的活性,最终增强团头鲂清除ROS的能力,减轻氧化损伤。鱼类NOD样受体作为细胞内重要的模式识别受体,不仅能够感应病原体入侵,还可响应ROS等危险信号,在氧化应激与炎症反应的交互调控中发挥核心作用[27]。研究表明,NOD样受体家族pyrin结构域包含蛋白3(NLRP3)炎症小体通过激活半胱天冬酶-1(Caspase-1)促进白细胞介素-1β(IL-1β)等促炎细胞因子的成熟,介导炎症反应;而过度或持续的激活则会诱导细胞凋亡,造成组织损伤[27]。同时,NOD2等NOD样受体家族成员也被证实参与调控ROS信号通路,影响细胞自噬和炎症应答[28]。因此,鱼类NOD样受体信号通路的适度激活对于维持氧化还原平衡和炎症稳态至关重要。本研究中,NOD样受体信号通路在芦根粉添加组中亦显著富集,其中核心炎症小体组分NLRP3基因表达水平显著上调。结合抗氧化指标的变化趋势推测,NOD样受体信号通路可能是芦根粉介导抗氧化应激效应的关键潜在靶点,其具体调控机制有待深入解析。
鱼类肝脏作为核心器官,集代谢、消化、解毒和免疫功能于一体,其微观结构可直接反映肝脏的健康状态。鱼类脾脏则是重要的免疫器官,在免疫防御和造血调节中起关键作用。本研究结果显示,饲料中添加3.0%芦根粉可减轻团头鲂肝细胞肿胀、空泡化及单核细胞炎症聚集。转录组分析进一步揭示了芦根粉调控团头鲂肝脏功能的分子机制。与对照组相比,3.0%芦根粉添加组细胞凋亡通路显著富集且表达下调,同时涉及穿孔素(Perforin)、肌醇三磷酸受体(IP3R)、钙蛋白酶(Calpain)和核因子-κB抑制蛋白α(IκBα)等凋亡相关基因的表达抑制,上述基因的下调表达均能抑制细胞凋亡的发生,表明芦根粉可抑制细胞凋亡通路的活性。在鱼类中,ALT和AST是反映肝细胞膜完整性的经典指标,其血浆活性升高通常源于肝细胞损伤所致的酶外泄;而肝细胞空泡化则是细胞应激和凋亡启动的典型形态学特征[29]。已有研究表明,多种环境胁迫及营养性肝脏损伤均可通过激活凋亡信号通路诱导肝细胞凋亡,并伴随ALT和AST活性升高及组织病理学改变[29-31];而功能性饲料添加剂(如壳寡糖、壳聚糖、α-硫辛酸等)可通过抑制凋亡相关基因的表达、调节B细胞淋巴瘤-2相关X蛋白(Bax)/B细胞淋巴瘤-2(Bcl-2)平衡,显著改善肝细胞形态并降低血浆转氨酶活性[31-33]。结合血浆生化指标和组织结构观察结果,芦根粉添加组团头鲂血浆ALT、AST活性显著降低,且肝细胞空泡化减轻,推测芦根粉可能通过抑制肝细胞凋亡信号通路的过度激活,减轻肝细胞凋亡和结构损伤,从而维持肝细胞膜完整性。自噬在先天免疫中发挥重要防御功能,通过降解受损细胞器和病原体维持细胞稳态,同时参与调节先天免疫反应,例如通过清除危险信号分子抑制过度炎症[34]。适当的自噬激活可以防止细胞凋亡并维持机体的生长发育,过度的自噬激活可能导致细胞应激、吞噬正常的细胞器,甚至导致细胞死亡[35]。研究表明,鱼类肝脏中能通过抑制细胞自噬来缓解氧化应激、抑制炎症反应和细胞凋亡,从而保护肝细胞结构和功能的完整性[30]。例如,黄颡鱼可通过抑制自噬相关信号通路[如磷脂酰肌醇3-羟激酶(PI3K)/蛋白激酶B(Akt)/mTOR]的过度激活,来减少肝细胞内ROS累积并下调促炎因子[肿瘤坏死因子-α(TNF-α)、IL-1β、白细胞介素-6(IL-6)]的表达,进而减轻氧化损伤和炎症反应[30]。本研究中,KEGG通路富集分析结果显示,细胞自噬通路在3.0%芦根粉添加组中显著富集且表达下调,其中自噬启动核心调控激酶之一——非协调51样激酶2(ULK2)基因表达显著下调。ULK2作为酵母自噬基因自噬相关蛋白1(Atg1)在哺乳动物中的同源物,进化上高度保守,与非协调51样激酶1(ULK1)共同构成自噬信号通路的上游整合节点,通过响应细胞内外环境变化启动自噬程序。研究表明,ULK1/2与自噬相关蛋白13(Atg13)、FAK家族激酶200 kDa相互作用蛋白(FIP200)形成核心复合物,直接接受mTOR信号通路的调控,其激酶活性是自噬体形成所必需的前提条件[36]。ULK2和ULK1在功能上具有冗余性,两者协同作用确保自噬信号的可靠传导,ULK2基因下调表达会显著抑制自噬的启动和进程[37]。上述分子变化与该组肝细胞排列更为整齐、肿胀与空泡化明显减轻以及单核细胞炎性聚集减少的组织学观察结果相一致。这提示高添加水平芦根粉可能通过抑制自噬通路,减少过度自噬引发的细胞损伤,从而增强肝脏对氧化应激的防御能力,减轻炎症反应,维持肝细胞稳态。值得注意的是,本研究中3.0%芦根粉添加组出现了肝脏脂肪细胞数量增多的组织学改变,提示脂质代谢通路可能受到扰动。结合KEGG通路富集分析,脂肪细胞因子信号通路在该组显著富集,并涉及多个脂肪代谢核心调控基因的表达下调,其中过氧化物酶体增殖物激活受体α(PPARα)作为脂质代谢和能量稳态的关键转录调节因子,通过调控脂肪酸摄取、活化、胞内转运及线粒体β-氧化相关基因的表达,显著促进脂肪酸分解代谢并降低甘油三酯水平[38]。在肝脏中,PPARα的激活不仅能有效改善脂质蓄积,还可抑制炎症与纤维化进程,因而成为防治非酒精性脂肪肝病的重要药物靶点[39]。综上所述,推测高添加水平芦根粉可能通过调控脂肪因子相关基因表达,进而影响肝脏脂质代谢稳态。
在免疫调控方面,本研究在转录组水平上鉴定出多个显著富集的先天免疫相关通路,包括Toll样受体信号通路、C型凝集素受体信号通路、RIG-Ⅰ样受体信号通路、NOD样受体信号通路及溶酶体通路等。病原体相关分子模式(PAMP)受体,亦称模式识别受体(PRR),是先天免疫系统的重要组成部分。在免疫激活过程中,先天免疫系统的PRR能够识别如Toll样受体、C型凝集素受体、RIG-Ⅰ样受体和NOD样受体等PAMP,从而启动炎症和免疫反应,保护宿主免受病原体侵害[40-41]。在3.0%芦根粉添加组中,溶酶体通路相关基因表达发生显著改变,组织学观察也发现该组脾脏中含铁血黄素沉积增加。溶酶体是真核细胞中负责降解和回收生物大分子的关键细胞器,在鱼类脾脏巨噬细胞中,溶酶体系统通过吞噬-溶酶体途径参与衰老红细胞和铁蛋白的降解代谢[42]。研究表明,硬骨鱼脾脏是铁代谢调控的重要器官,巨噬细胞通过吞噬衰老红细胞,经溶酶体途径降解血红蛋白并释放铁离子,该过程与含铁血黄素的形成密切相关。当溶酶体功能发生改变时,可能影响铁蛋白的降解效率和铁离子的再循环利用,导致铁在巨噬细胞溶酶体中异常沉积,形成含铁血黄素[43]。因此,溶酶体通路相关基因的表达变化与脾脏含铁血黄素沉积增加在机制上可能存在内在关联性,提示芦根粉可能通过调控溶酶体功能影响脾脏的铁代谢稳态。
由此可见,饲料中添加3.0%芦根粉在改善团头鲂肝脏功能、增强肝脏抗氧化能力及减轻肝细胞炎症损伤方面效果较为显著,且转录组层面多条先天免疫相关通路被特异性调控,表明其具备作为天然免疫添加剂的开发潜力。然而,该添加水平亦伴随明确的负面效应,包括肝脏脂肪细胞数量增多及脾脏中含铁血黄素沉积增加,提示可能干扰脂质代谢和铁代谢稳态。因此,后续研究应聚焦于优化添加水平或联合降脂类功能成分,以在发挥其免疫调节功效的同时,降低潜在代谢风险。

4 结论

综上所述,饲料中添加芦根粉在改善团头鲂肝脏功能、增强抗氧化能力及调控免疫应答方面具有应用潜力,但在高添加水平(3.0%)条件下,也表现出诱导肝脏脂肪蓄积及脾脏铁代谢紊乱的负面效应,呈现出双重调控作用。
[1]
HOSEINIFAR S H, SUN Y Z, CAIPANG C M. Short-chain fatty acids as feed supplements for sustainable aquaculture:an updated view[J]. Aquaculture Research, 2017, 48(4):1380-1391.

DOI

[2]
WANG A R, RAN C, WANG Y B, et al. Use of probiotics in aquaculture of China—a review of the past decade[J]. Fish & Shellfish Immunology, 2019, 86:734-755.

[3]
卢彭信, 纪玉华, 崔婷, 等. 芦根化学成分和药理作用的研究进展及其质量标志物的预测分析[J]. 中国现代中药, 2024, 26(11):2002-2016.

LU P X, JI Y H, CUI T, et al. Research progress on chemical constituents and pharmacological effects of Phragmitis rhizoma and predictive analysis of quality markers[J]. Modern Chinese Medicine, 2024, 26(11):2002-2016. (in Chinese)

[4]
王中华, 郭庆梅, 周凤琴. 芦根化学成分、药理作用及开发利用研究进展[J]. 辽宁中医药大学学报, 2014, 16(12):81-83.

WANG Z H, GUO Q M, ZHOU F Q. Progress in chemical composition pharmacological functions development and utilization of Phragmites communis Trin[J]. Journal of Liaoning University of Traditional Chinese Medicine, 2014, 16(12):81-83. (in Chinese)

[5]
李洪, 王麟, 陈王莹, 等. 中药芦根化学成分、药理作用及临床应用研究[J]. 科技信息, 2014(5):31-32.

LI H, WANG L, CHENW Y, et al. Research on the chemical components,pharmacological effects and clinical applications of Chinese herbal medicine “Phragmitis rhizoma”[J]. Science & Technology Information, 2014(5):31-32. (in Chinese)

[6]
陈凤梅, 程光民, 马爱霞, 等. 芦根对热应激泌乳奶牛免疫功能及血液指标的影响[J]. 畜牧与兽医, 2017, 49(10):120-125.

CHEN F M, CHENG G M, MA A X, et al. Effect of reed rhizome on immune function and blood index in the heat-stressed lactation cows[J]. Animal Husbandry & Veterinary Medicine, 2017, 49(10):120-125. (in Chinese)

[7]
李立华, 张国升. 芦根多糖保肝作用及抗肝纤维化的研究[J]. 安徽中医学院学报, 2007, 26(5):32-34.

LI L H, ZHANG G S. Study on the hepatoprotective effect and anti-liver fibrosis of Phragmitis rhizoma polysaccharides[J]. Journal of Anhui Traditional Chinese Medical College, 2007, 26(5):32-34. (in Chinese)

[8]
王珍, 尤其嘉, 杨靖亚, 等. 芦根多糖对镉中毒小鼠肝肾组织损伤的保护作用[J]. 食品工业科技, 2013, 34(2):349-352.

WANG Z, YOU Q J, YANG J Y, et al. Protective effect of cadmium poisoning mice liver and kidney damage of the Phragmites polysaccharide[J]. Science and Technology of Food Industry, 2013, 34(2):349-352. (in Chinese)

[9]
WANG S J, TAI Z P, SUN Q H, et al. Akirin2 plays an important role in protecting Megalobrama amblycephala from Aeromonas hydrophila infection[J]. Aquaculture, 2023, 562:738836.

DOI

[10]
宁军号, 秦宇博, 胡伦超, 等. 水温骤降和缓降胁迫对褐篮子鱼血液生理生化指标的影响[J]. 大连海洋大学学报, 2017, 32(3):294-301.

NING J H, QIN Y B, HU L C, et al. Effects of abrupt and gradual decreases in water temperature on blood physiological and biochemical parameters in dusty rabbit fish Siganus fuscescens[J]. Journal of Dalian Ocean University, 2017, 32(3):294-301. (in Chinese)

[11]
PENG F, CHEN X X, MENG T, et al. Hematology and serum biochemistry parameters of captive Chinese alligators (Alligator sinensis) during the active and hibernating periods[J]. Tissue and Cell, 2018, 51:8-13.

DOI

[12]
HOSSAIN S, KOSHIO S, ISHIKAWA M, et al. Substitution of dietary fishmeal by soybean meal with inosine administration influences growth,digestibility,immunity,stress resistance and gut morphology of juvenile amberjack Seriola dumerili[J]. Aquaculture, 2018, 488:174-188.

DOI

[13]
CHOWDHURY G, HOSSAIN M S, DEY T, et al. Effects of dietary probiotics on the growth,blood chemistry and stress response of Pabda catfish (Ompok pabda) juveniles[J]. AACL Bioflux, 2020, 13(3):1595-1605.

[14]
CHEN S, JU M L, LUO Y, et al. Hepatoprotective and antioxidant activities of the aqueous extract from the rhizome of Phragmites australis[J]. Zeitschrift fur Naturforschung:C,Journal of Biosciences, 2013, 68(11/12):439-444.

[15]
REHMAN A, LIAQAT M, ASGHAR R, et al. Evaluation of methanolic extract of Phragmites karka on carbon tetrachloride-induced liver fibrosis in rat[J]. Bangladesh Journal of Pharmacology, 2017, 12:276-281.

DOI

[16]
MOREL Y, BAROUKI R. Repression of gene expression by oxidative stress[J]. Biochemical Journal, 1999, 342(Pt 3):481-496.

DOI

[17]
BIRNIE-GAUVIN K, COSTANTINI D, Cooke S J, et al. A comparative and evolutionary approach to oxidative stress in fish:a review[J]. Fish and Fisheries, 2017, 18(5):928-942.

DOI

[18]
苗明三, 顾丽亚, 方晓燕, 等. 芦笋多糖对衰老模型小鼠的影响[J]. 中国中药杂志, 2004, 29(7):673-675.

MIAO M S, GU L Y, FANG X Y, et al. Effect of Phragmites communis polysaccharide on the aged-model mice[J]. China Journal of Chinese Materia Medica, 2004, 29(7):673-675. (in Chinese)

[19]
REN Y, CUI G D, HE L S, et al. Traditional uses,phytochemistry,pharmacology and toxicology of Rhizoma phragmitis:a narrative review[J]. Chinese Journal of Integrative Medicine, 2022, 28(12):1127-1136.

DOI

[20]
贾希栋, 张春阳, 刘迎光, 等. 芦根提取液预防雄性大鼠草酸钙肾结石的研究[J]. 中国实验方剂学杂志, 2013, 19(11):224-227.

JIA X D, ZHANG C Y, LIU Y G, et al. Prevention of extract from Rhizoma phragmitis on calcium oxalate stones in male rats[J]. Chinese Journal of Experimental Traditional Medical Formulae, 2013, 19(11):224-227. (in Chinese)

[21]
HUMAYUN A, FORNACE A J Jr. GADD 45 in stress signaling,cell cycle control,and apoptosis[J]. Advances in Experimental Medicine and Biology, 2022, 1369:1-12.

[22]
LI F H, HAN N, WANG Y, et al. Gadd45a knockdown alleviates oxidative stress through suppressing the p38 MAPK signaling pathway in the pathogenesis of preeclampsia[J]. Placenta, 2018, 65:20-28.

DOI

[23]
XU X D, XU H, QIMUGE A, et al. MAPK/AP-1 pathway activation mediates AT1R upregulation and vascular endothelial cells dysfunction under PM2.5 exposure[J]. Ecotoxicology and Environmental Safety, 2019, 170:188-194.

DOI PMID

[24]
CHU P, WANG T, SUN Y R, et al. Effect of cold stress on the MAPK pathway and lipidomics on muscle of Takifugu fasciatus[J]. Aquaculture, 2021, 540:736691.

DOI

[25]
ZHENG Y, LI J J, GAO J C, et al.Apoptosis, MAPK signaling pathway affected in tilapia liver following nano-microplastics and sulfamethoxazole acute co-exposure[J]. Comparative Biochemistry and Physiology Part D:Genomics and Proteomics, 2025, 53:101370.

DOI

[26]
MONIRUZZAMAN M, KUMAR S, MUKHERJEE M, et al. Delineating involvement of MAPK/NF-κB pathway during mitigation of permethrin-induced oxidative damage in fish gills by melatonin[J]. Environmental Toxicology and Pharmacology, 2023, 104:104312.

DOI

[27]
WU Y T, ZHAO L, ZHANG X Y, et al. Mechanism of biphasic activation of NLRP3 inflammasome in the fat greenling (Hexagrammos otakii) under hypoxic stress:from inflammatory defense to pyroptosis execution[J]. Fishes, 2025, 10(11):542.

DOI

[28]
WANG D, CHEN L N, MA X Y, et al. Teleost HMGB1 paralogues mediate protective autophagy by interacting with NOD2 and ATG16L1 and activating ROS/Akt/mTOR pathway against Aeromonas hydrophila infection[J]. Fish & Shellfish Immunology, 2025, 167:110902.

[29]
卫明亮, 张志伟, 张志勇, 等. 冷应激对黑鲷组织损伤及细胞凋亡基因表达的影响[J]. 南方水产科学, 2022, 18(5):110-117.

WEI M L, ZHANG Z W, ZHANG Z Y, et al. Effects of cold stress on black porgy tissue injury and apoptosis gene expression[J]. South China Fisheries Science, 2022, 18(5):110-117. (in Chinese)

[30]
LI S W, XIE J Q, ZHANG D F, et al. Lycopene abolishes typical polyhalogenated carbazoles (PHCZs)-induced hepatic injury in yellow catfish (Pelteobagrus fulvidraco):involvement of ROS/PI3K-AKT/NF-κB signaling[J]. Fish & Shellfish Immunology, 2023, 139:108897.

[31]
RASHWAN A G, ASSAR D H, SALAH A S, et al. Dietary chitosan attenuates high-fat diet-induced oxidative stress,apoptosis,and inflammation in Nile tilapia (Oreochromis niloticus) through regulation of Nrf2/Kaep1 and Bcl-2/Bax pathways[J]. Biology, 2024, 13(7):486.

DOI

[32]
SHI F, CHEN Z L, HUANG Y, et al. Hepatoprotective effects of oligochitosan on hybrid groupers (Epinephelus lanceolatu♂×Epinephelus fuscoguttatus ♀) against Vibrio harvey infection via suppressing apoptosis-related pathways[J]. Aquaculture International, 2024, 32(5):5833-5849.

DOI

[33]
LI M, SHEN Z Q, ZHANG P, et al. Mitigation mechanism of α-LA on AFB1-induced hepatocyte injury in snakehead fish (Channa Argus):a potential substance[J]. Aquaculture, 2025, 603:742425.

DOI

[34]
LEVINE B, DERETIC V. Unveiling the roles of autophagy in innate and adaptive immunity[J]. Nature Reviews Immunology, 2007, 7(10):767-777.

DOI PMID

[35]
LIU B B, LIU L, LIU Y. Targeting cell death mechanisms:the potential of autophagy and ferroptosis in hepatocellular carcinoma therapy[J]. Frontiers in Immunology, 2024, 15:1450487.

DOI

[36]
JUNG C H, JUN C B, RO S H, et al. ULK-Atg13-FIP200 complexes mediate mTOR signaling to the autophagy machinery[J]. Molecular Biology of the Cell, 2009, 20(7):1992-2003.

DOI PMID

[37]
LEE E J, TOURNIER C. The requirement of uncoordinated 51-like kinase 1 (ULK1) and ULK2 in the regulation of autophagy[J]. Autophagy, 2011, 7(7):689-695.

DOI

[38]
KERSTEN S. Integrated physiology and systems biology of PPARα[J]. Molecular Metabolism, 2014, 3(4):354-371.

DOI PMID

[39]
HUANG P, YANG L L, LIU T, et al. Scoparone alleviates nonalcoholic fatty liver disease by modulating the PPARα signaling pathway[J]. European Journal of Pharmacology, 2024, 984:177033.

DOI

[40]
ZWOLLO P, MOTT K, BARR M. Comparative analyses of B cell populations in trout kidney and mouse bone marrow:establishing “B cell signatures”[J]. Developmental & Comparative Immunology, 2010, 34(12):1291-1299.

[41]
SAHOO B R. Structure of fish Toll-like receptors (TLR) and NOD-like receptors (NLR)[J]. International Journal of Biological Macromolecules, 2020, 161:1602-1617.

DOI PMID

[42]
WANG M Q, FENG L, WU P, et al. Myo-inositol-mediated efferocytosis promotes lysosomal function and ROS clearance related to the pentose phosphate pathway in fish muscle[J]. Aquaculture, 2026, 616:743681.

DOI

[43]
SUN H, REN J Q, MA X Y, et al. Aeromonas hydrophila effector Hcp1 triggers ferroptosis in teleost splenic macrophages via NCOA4-mediated ferritinophagy[J]. Fish & Shellfish Immunology, 2025, 164:110459.

Outlines

/