RESEARCH PAPER

Effects of Chlorogenic Acid on Heat Stress Induced Mammary Oxidative Damage and Lactation Function of Mother Mice

  • HUANG Qi , 1 ,
  • MA Fengtao 1, 2 ,
  • SUN Peng , 1, **
Expand
  • 1 State Key Laboratory of Animal Nutrition and Feeding, Institute of Animal Science, Chinese Academy of Agricultural Sciences, Beijing 100193, China
  • 2 College of Animal Science and Technology, Hebei Agricultural University, Baoding 071001, China
** professor, E-mail:

* Contributed equally

Received date: 2026-02-05

  Online published: 2026-09-12

Abstract

This study aimed to evaluate the protective effects of different doses of chlorogenic acid (CGA) supplementation under heat stress condition on mammary oxidative stress and inflammatory response of lactating mother mice, and to explore the potential molecular mechanisms by which CGA alleviates heat stress-induced mammary oxidative damage and improves lactation performance. Forty-eight 11 weeks of age primiparous ICR mice at the gestation day of (13±1) with average body weight of (48±2) g were randomly assigned to 4 groups with 12 mice per group. Mice in the control group (CON) group were raised in a normal temperature environment, and others in heat stress group (HS group), low-dose CGA group (LCGA group) and high-dose CGA group (HCGA group) were exposed to a heat stress for 2 h daily (environment temperature was 36 ℃, relative humidity was 50% to 60%) from parturition for 12 consecutive days. From the day of parturition, mice in LCGA group and HCGA group were daily orally administered CGA at doses of 25 and 50 mg/kg BW, respectively, while mice in the CON group and HS group were daily orally administered equal volume of saline daily. The results showed as follows: 1) compared with the CON group, the feed intake and milk yield in transition period of lactation and middle period of lactation of mother mice of the HS group were significantly decreased (P<0.05); the contents of malondialdehyde (MDA), interleukin-6 (IL-6), interleukin-1β (IL-1β) and tumor necrosis factor-α (TNF-α) in mammary gland were significantly increased (P<0.05), and the superoxide dismutase (SOD) activity was significantly decreased (P<0.05); the mRNA relative expression levels of nuclear factor erythroid 2-related factor 2 (Nrf2), heme oxygenase-1 (HO-1) and SOD in mammary gland were significantly down-regulated (P<0.05), and the mRNA relative expression levels of nucleotide binding oligomerization domain-like receptor protein 3 (NLRP3), apoptosis associated speck-like protein containing a CARD (ASC) and Gasdermin D (GSDMD) were significantly up-regulated (P<0.05). 2) Compared with the HS group, the feed intake and milk yield in transition period of lactation and middle period of lactation of mother mice of the HCGA group were significantly increased (P<0.05); the contents of MDA, IL-6, IL-1β and TNF-α in mammary gland were significantly decreased (P<0.05), and the SOD activity was significantly increased (P<0.05); the mRNA relative expression levels of Nrf2, HO-1 and SOD in mammary gland were significantly up-regulated (P<0.05), and the mRNA relative expression levels of ASC and GSDMD were significantly down-regulated (P<0.05); meanwhile, the protein relative expression levels of Nrf2 and HO-1 in mammary gland of the HCGA group were significantly increased (P<0.05), and the protein relative expression levels of NLRP3, ASC and phosphorylated nuclear factor-κB p65 (p-NF-κB p65) were significantly decreased (P<0.05). 3) The histopathological results showed that CGA could effectively alleviate heat stress induced structural damage in mammary tissue. In summary, the CGA can alleviate heat stress induced mammary oxidative damage and inflammatory response, and improve the lactation function of mother mice. These protective effects may be associated with regulation of Nrf2-related antioxidant factor expression and inhibition of nuclear factor-κB/NLRP3 inflammasome-related factor expression.

Cite this article

HUANG Qi , MA Fengtao , SUN Peng . Effects of Chlorogenic Acid on Heat Stress Induced Mammary Oxidative Damage and Lactation Function of Mother Mice[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 7012 -7024 . DOI: 10.12418/CJAN2026.559

热应激(heat stress,HS)是影响哺乳动物生产性能和健康状态的重要环境因素之一,尤其在泌乳期,热应激可扰乱机体代谢稳态,进而损害泌乳性能并危及整体健康[1]。在高温环境下,泌乳动物采食量下降、能量分配失衡,进而显著降低产奶量和乳品质[2-3]。同时,热应激可诱导机体氧化应激和炎症反应持续激活,并导致奶牛代谢紊乱和细胞损伤,造成乳腺组织结构和功能损伤[4-6]。因此,阐明热应激条件下乳腺损伤的发生机制,并探索有效的营养调控策略,对于保障泌乳动物健康和生产性能具有重要意义。
大量研究表明,热应激条件下活性氧(reactive oxygen species,ROS)过度生成,机体抗氧化防御系统受损,进而引发脂质过氧化反应增强和细胞结构破坏[7-8]。核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)是调控抗氧化防御体系的关键转录因子,可通过上调超氧化物歧化酶(superoxide dismutase,SOD)、血红素加氧酶-1(heme oxygenase-1,HO-1)等抗氧化相关基因的表达,维持细胞氧化还原稳态[9-11]。与此同时,核因子-κB(nuclear factor-κB,NF-κB)及其下游核苷酸结合寡聚化结构域样受体蛋白3(nucleotide binding oligomerization domain-like receptor protein 3,NLRP3)炎症小体信号通路在热应激诱导的炎症反应中发挥核心作用,其异常激活可促进炎性因子释放,加重组织炎症和损伤[12-14]。已有研究提示,Nrf2信号通路与NF-κB/NLRP3炎症小体信号通路之间存在密切的相互调控关系,其失衡是热应激诱导乳腺功能障碍的重要分子基础[15]
近年来,植物源功能性活性物质因其来源天然、生物安全性高以及具有抗氧化和抗炎等多重生物学功能,在动物营养和应激调控研究中受到广泛关注[16]。绿原酸(chlorogenic acid,CGA)是一类广泛存在于多种植物中的多酚类化合物,具有清除自由基、抑制炎症反应和保护细胞结构等作用[17]。已有研究表明,CGA在多种应激或病理状态下可通过调节氧化应激和炎症反应改善机体生理功能[18]。然而,目前关于CGA在泌乳期热应激条件下是否能够缓解热应激诱导的乳腺氧化损伤及炎症反应进而改善泌乳性能仍缺乏系统研究,其相关调控途径亦有待进一步探讨。因此,有必要在泌乳期动物体内系统评价CGA对热应激诱导乳腺氧化损伤的缓解作用及其可能涉及的调控途径。基于此,本试验旨在研究热应激条件下补充不同剂量CGA对小鼠母鼠采食量和产奶量的影响,系统评价其对乳腺氧化损伤和炎症反应的调控作用,并结合Nrf2信号通路及NF-κB/NLRP3炎症小体信号通路相关指标变化,探讨CGA缓解热应激诱导的乳腺氧化损伤和炎症反应的可能作用途径。

1 材料与方法

1.1 试验动物与试验设计

试验动物为ICR小鼠母鼠,购自北京维通利华实验动物技术有限公司,试验动物使用许可证编号为SYXK(京)2023-0048。所有动物试验均在中国农业科学院北京畜牧兽医研究所实验动物中心进行。本研究的动物试验方案经中国农业科学院北京畜牧兽医研究所动物伦理委员会审查批准,批准编号为IAS2022-67。
选取48只妊娠(13±1) d的11周龄初产母鼠,平均体重为(48±2) g,单笼饲养至分娩。母鼠分娩后第3天统一调整每窝仔鼠数为8只。试验自母鼠分娩当日开始,至分娩后12 d结束。采用完全随机设计,将母鼠分为4组,每组12只。对照组(CON组)母鼠饲养于常温环境中,环境温度为23~25 ℃,相对湿度为50%~60%,温湿度指数(temperature-humidity index,THI)为69~72。热应激组(HS组)、低剂量绿原酸组(LCGA组)和高剂量绿原酸组(HCGA组)母鼠自分娩后每日接受2 h(13:00—15:00)热应激处理,置于人工气候培养箱内,环境温度为36 ℃,相对湿度为50%~60%,THI为86~88,连续热应激处理12 d[19]。THI计算公式[20]如下:
THI=(0.8×温度)+[(相对湿度/100)×(温度-14.4)]+46.4。
自分娩当日起,CON组和HS组母鼠每日灌服0.25 mL生理盐水;LCGA组和HCGA组母鼠每日分别灌服25和50 mg/kg BW的CGA(纯度≥98%),均溶于0.25 mL生理盐水中。母鼠均饲喂商品化基础饲粮(北京科澳协力饲料有限公司),其营养水平(干物质基础)为:粗蛋白质18.6%,粗脂肪4.3%,粗纤维4.5%,钙1.2%,磷0.95%,检测方法参照GB/T 14924.9—2001。所有母鼠均实行12 h光照/12 h黑暗制度,自由采食和饮水。除每日热应激处理期间外,各组保持相同饲养条件。所有母鼠每3 d更换垫料,每2 d更换饮水。

1.2 样品采集

试验结束时,母鼠经麻醉后屠宰,迅速分离乳腺组织。其中,部分乳腺组织立即置于4%多聚甲醛溶液中固定,用于组织形态学观察;其余乳腺组织经液氮速冻后,于-80 ℃保存,用于后续分子生物学分析。

1.3 检测指标

1.3.1 直肠温度、体重、采食量及产奶量

试验期间采用探头式肛温计测定泌乳期母鼠直肠温度,于产后每日热应激处理开始前(13:00)和结束后(15:00)分别测定HS组母鼠直肠温度变化,以评估热应激处理效果。
试验期间记录泌乳期母鼠饲料消耗量,并于分娩当天和产后第12天分别对泌乳期母鼠进行称重,计算泌乳早期(产后第1~4天)、泌乳过渡期(产后第5~8天)及泌乳中期(产后第9~12天)的采食量。
母鼠产奶量采用仔鼠称重-吸吮-再称重法[19]进行估算。具体方法如下:首先,将仔鼠与泌乳母鼠分离3 h,记录分离开始时仔鼠体重(W1)和分离结束时仔鼠体重(W2),以估计仔鼠在分离期间的代谢体重损失;随后,将仔鼠放回母鼠处吸吮1 h,记录吸吮结束后的仔鼠体重(W3)。母鼠产奶量分别于产后第3、7和11天测定,对应泌乳早期、泌乳过渡期、和泌乳中期的渐近产奶水平。产奶量计算公式如下:
产奶量(g)=W3-W2+(W1-W2)/3。

1.3.2 乳腺组织形态

固定后的乳腺组织样品经常规脱水、透明、浸蜡和石蜡包埋处理后进行切片,并采用苏木精-伊红(hematoxylin-eosin,HE)染色观察组织形态结构。具体过程如下:组织样品依次在70%、85%、95%和100%乙醇中脱水,每步30 min,随后置于1∶1乙醇-二甲苯混合液中处理30 min,再用纯二甲苯透明2次,每次40 min。之后分别在25%、50%和75%的石蜡-二甲苯混合液中浸蜡,各30 min,最终置于65 ℃石蜡中完成包埋。石蜡包埋后的组织切成厚度为3~4 μm的连续切片,采用水浴法展片并贴附于载玻片上,于60 ℃烘箱中烘烤30 min。切片经二甲苯脱蜡和梯度乙醇复水后,使用HE染液(G1120,北京索莱宝科技有限公司)进行染色,染色完成后采用中性树脂封片。封片后在室温下静置12 h,使树脂充分固化。采用3DHISTECH扫描系统(Pannoramic MIDI,3DHISTECH Ltd.,匈牙利)对染色切片进行全切片扫描,并使用CaseViewer软件进行图像观察与分析。

1.3.3 乳腺中细胞因子和氧化应激指标

将-80 ℃冻存的乳腺组织制备成组织匀浆,测定匀浆上清液中细胞因子和氧化应激指标。白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-6(interleukin-6,IL-6)和肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)含量采用酶联免疫吸附测定(ELISA)试剂盒(武汉华美生物工程有限公司)进行检测,SOD活性和丙二醛(malondialdehyde,MDA)含量采用相应检测试剂盒(上海碧云天生物技术有限公司)进行测定,所有操作均严格按照试剂盒说明书进行。

1.3.4 乳腺中Nrf2信号通路及NF-κB/NLRP3炎症小体信号通路关键基因表达

取约0.1 g冻存乳腺组织置于2 mL RNAase-free EP管中,加入直径6 mm的钢珠和0.9 mL RNAiso Plus(TaKaRa Bio Inc.,日本),在组织研磨仪(TissueLyser Ⅱ,QIAGEN,德国)中以45 Hz频率于室温研磨90 s。随后采用TRIzol法提取组织总RNA,并使用分光光度计(NanoDrop 2000,Thermo Fisher Scientific,美国)测定RNA浓度和纯度。RNA反转录为cDNA,使用实时荧光定量PCR仪(ABI 7500,Thermo Fisher Scientific,美国)进行分析。PCR反应体系和扩增条件按试剂说明书进行,引物序列见表1。以甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,采用2-ΔΔCt方法计算目的基因[Nrf2、NLRP3、Gasdermin D(GSDMD)、HO-1、SOD、凋亡相关斑点样蛋白(apoptosis associated speck-like protein containing a CARD,ASC)]的mRNA相对表达水平。
表1 引物序列

Table 1 Primer sequences

基因Genes 引物序列Primer sequence (5'—3')
核因子E2相关因子2 Nrf2 F:GAAGCACGCTGAAGGCACAATG
R:GTTTGACACTTCCAGGGGCACTATC
核苷酸结合寡聚化结构域样受体蛋白3 NLRP3 F:GTCTCTTCTCAAGTCTAAGCACCAAC
R:CCCCCAGGGCATTGTCAC
Gasdermin D GSDMD F:AGGCATGGGAGAAGGGAA
R:CCAGGTCTTCTGAGTCACACG
血红素加氧酶-1 HO-1 F:CGAATGAACACTCTGGAGATGACAC
R:CCTCTGACGAAGTGACGCCATCTGT
超氧化物歧化酶SOD F:GGATGAAGAGAGGCATGTTGGAG
R:CCACCTTTGCCCAAGTCATC
凋亡相关斑点样蛋白ASC F:TAAAGAAGAGTCTGGAGCTGTGG
R:TCATCTTGTCTTGGCTGGTGGTCT
甘油醛-3-磷酸脱氢酶GAPDH F:AAATTCAACGGCACAGTCAA
R:TAGACTCCACGACATACTCAGCA

1.3.5 乳腺中Nrf2信号通路及NF-κB/NLRP3炎症小体信号通路关键蛋白Western blot分析

称取约0.1 g乳腺组织置于2 mL EP管中,加入1颗直径6 mm的钢珠和0.9 mL RIPA裂解液(R0010,北京索莱宝科技有限公司),在预冷的组织研磨仪中以45 Hz频率研磨90 s。匀浆样品经超声破碎处理(60 Hz超声3 s,间隔3 s,共5次),随后于4 ℃、12 000×g离心15 min,收集上清液作为总蛋白提取液。采用BCA蛋白浓度测定试剂盒(P0012,上海碧云天生物技术有限公司)测定蛋白浓度。等量蛋白样品经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离后转移至聚偏二氟乙烯(PVDF)膜,并用5%脱脂乳粉在室温下封闭1 h,随后于4 ℃条件下孵育一抗过夜。所用一抗包括:Nrf2(16396-1-AP,1∶1 000,武汉三鹰生物技术有限公司)、HO-1(ab13243,1∶1 000,Abcam,英国)、磷酸化NF-κB p65(phosphorylated nuclear factor-κB,p-NF-κB p65)(YP0193,1∶1 000,Immunoway,美国)、NLRP3(WL02635,1∶1 000,沈阳万类生物科技有限公司)、ASC(67824T,1∶1 000,Cell Signaling Technology,美国)以及β-微管蛋白(β-tubulin)(YM3030,1∶10 000,Immunoway,美国)。次日用TBST洗膜后,分别孵育辣根过氧化物酶(horseradish peroxidase,HRP)标记的二抗,包括山羊抗小鼠免疫球蛋白G(immunoglobulin G,IgG)(SA00001-1,1∶8 000,武汉三鹰生物技术有限公司)或山羊抗兔IgG(SA00001-2,1∶8 000,武汉三鹰生物技术有限公司),室温孵育1 h。采用Tanon 6 200化学发光成像系统(上海天能生命科学有限公司)进行显影,并使用ImageJ软件(National Institutes of Health,美国)进行灰度值分析。目标蛋白的相对表达水平以其灰度值与β-tubulin灰度值的比值表示。

1.4 统计分析

试验数据采用GraphPad Prism 10.1.2和SPSS 27.0软件进行统计分析。各组间差异采用单因素方差分析(one-way ANOVA)进行检验,并采用Tukey氏法进行多重比较。直肠温度数据采用重复测量方差分析进行统计分析。结果以平均值±标准误表示,P<0.05为差异显著。

2 结果与分析

2.1 CGA对热应激母鼠体重和采食量的影响

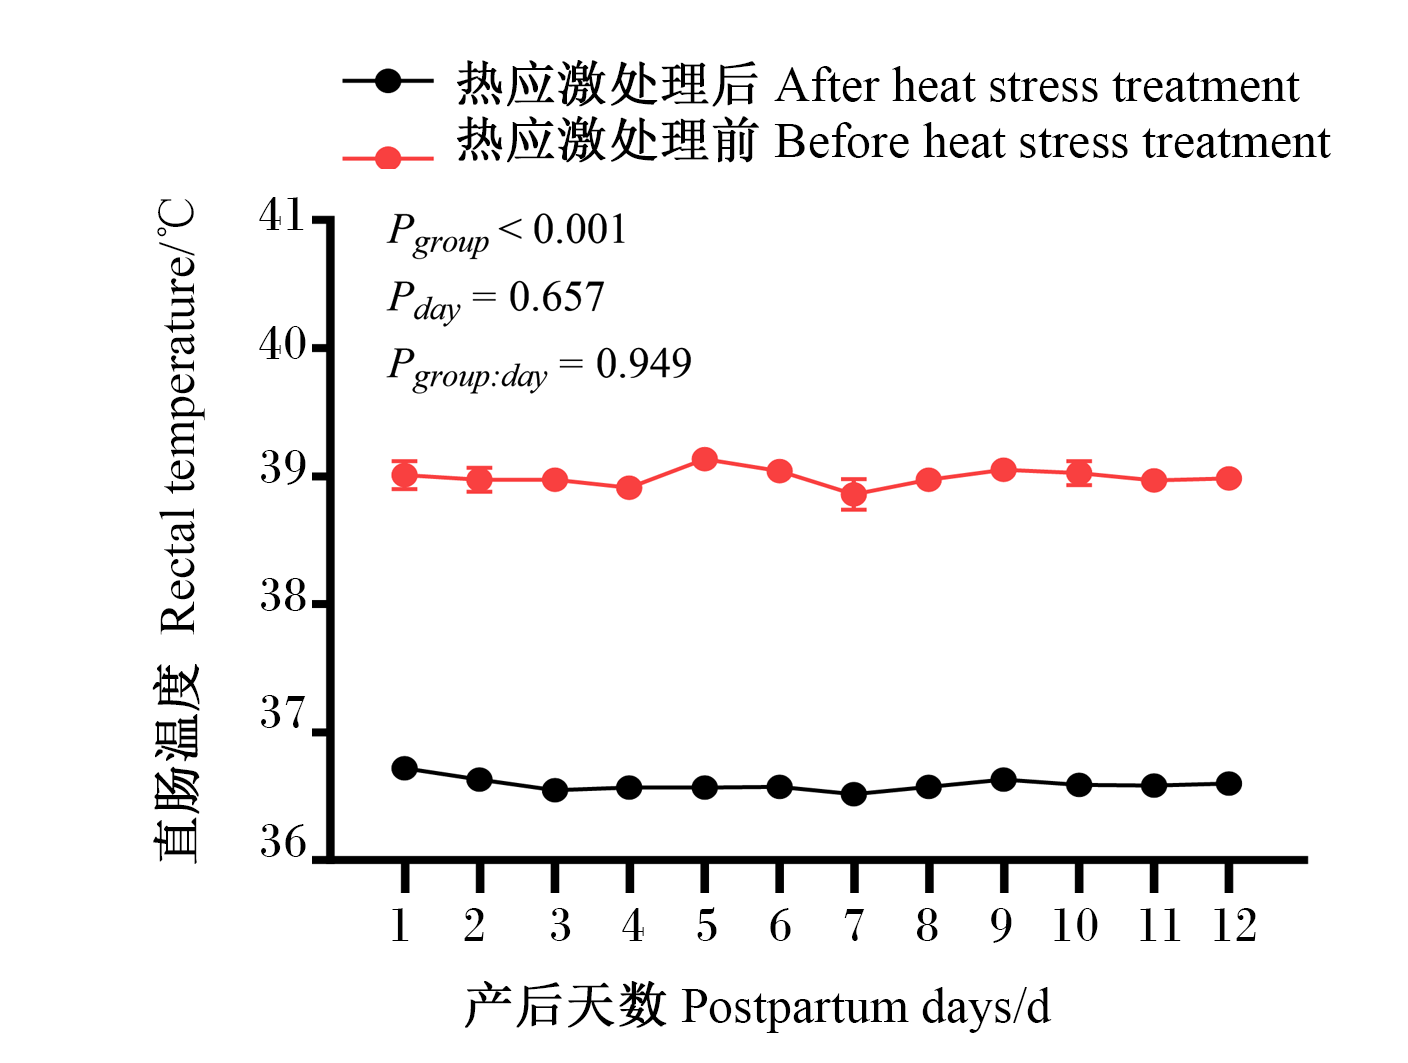
图1所示,在整个试验期间,HS组母鼠于每日热应激处理后的直肠温度均显著高于热应激处理前(P<0.05),表明热应激模型构建成功。
图1 热应激母鼠直肠温度

Fig.1 Rectal temperature of heat-stressed mother mice

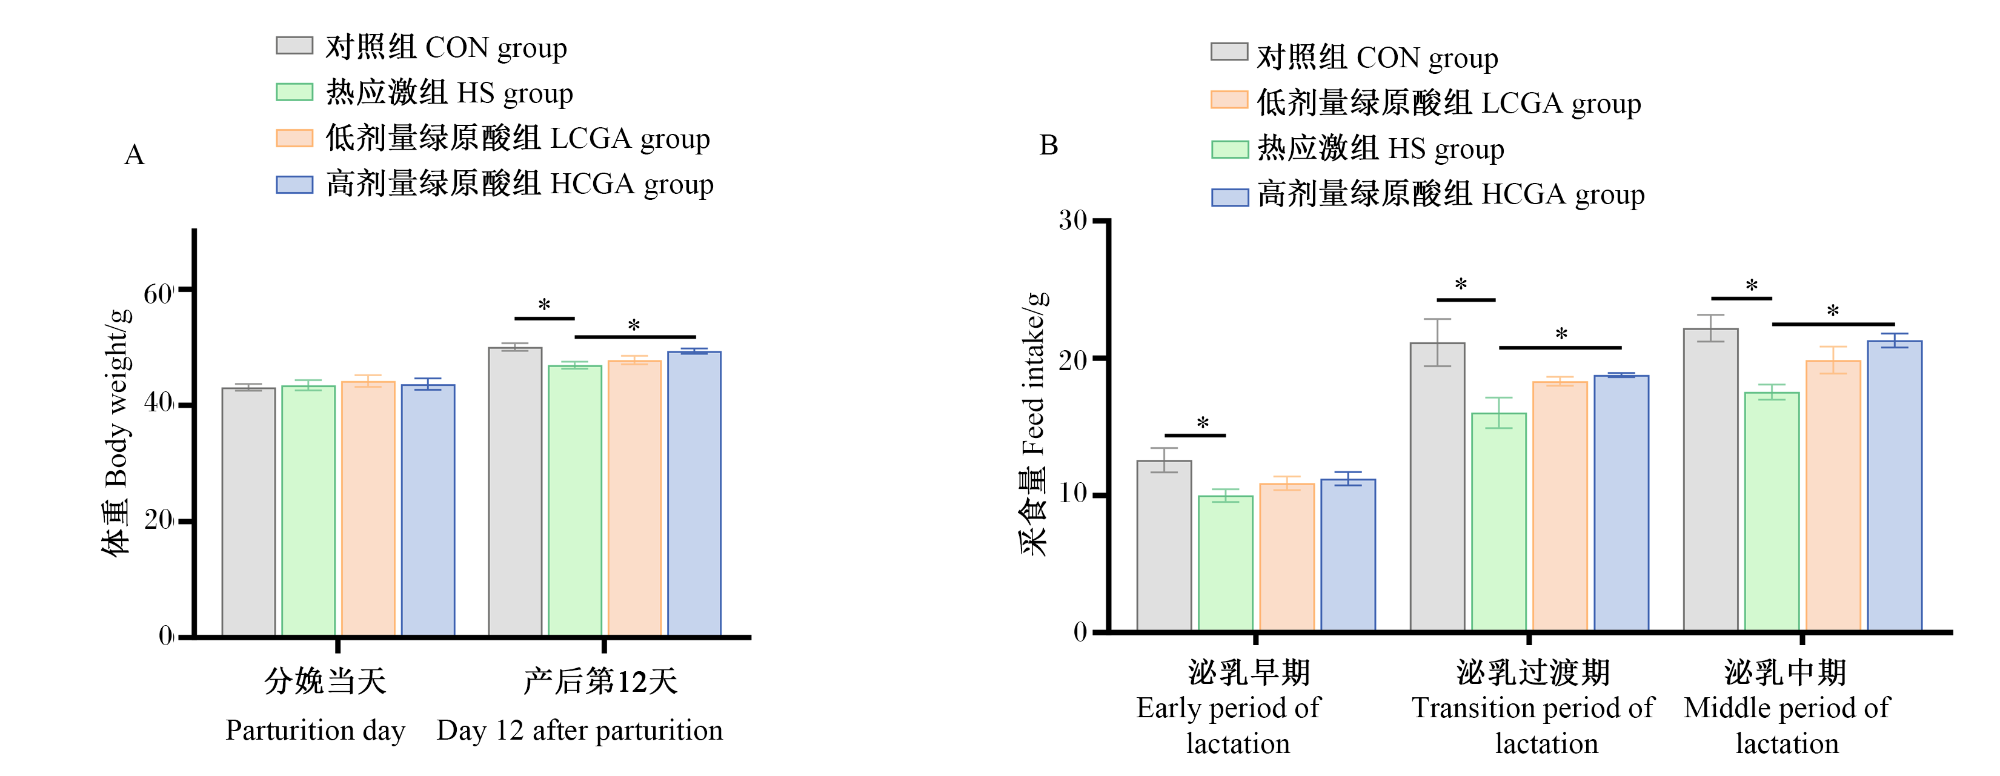
图2-A所示,在分娩当天,各组之间母鼠体重差异不显著(P>0.05)。在产后第12天,与CON组相比,HS组母鼠体重显著降低(46.92 g vs. 50.06 g,P<0.05);与HS组相比,HCGA组母鼠体重显著提高(49.35 g vs. 46.92 g,P<0.05)。如图2-B所示,与CON组相比,HS组母鼠在泌乳早期(9.23 g/d vs. 12.57 g/d)、泌乳过渡期(16.03 g/d vs. 21.14 g/d)和泌乳中期(17.53 g/d vs. 22.19 g/d)的采食量均显著降低(P<0.05);与HS组相比,HCGA组母鼠在泌乳过渡期(18.69 g/d vs. 16.03 g/d)和泌乳中期(21.29 g/d vs. 17.53 g/d)的采食量均显著提高(P<0.05)。
图2 CGA对热应激母鼠体重和采食量的影响

*代表差异显著(P<0.05)。图3同。

Fig.2 Effects of CGA on body weight and feed intake of heat-stressed mother mice

* represented significant difference (P<0.05). The same as Fig.3.

2.2 CGA对热应激母鼠产奶量的影响

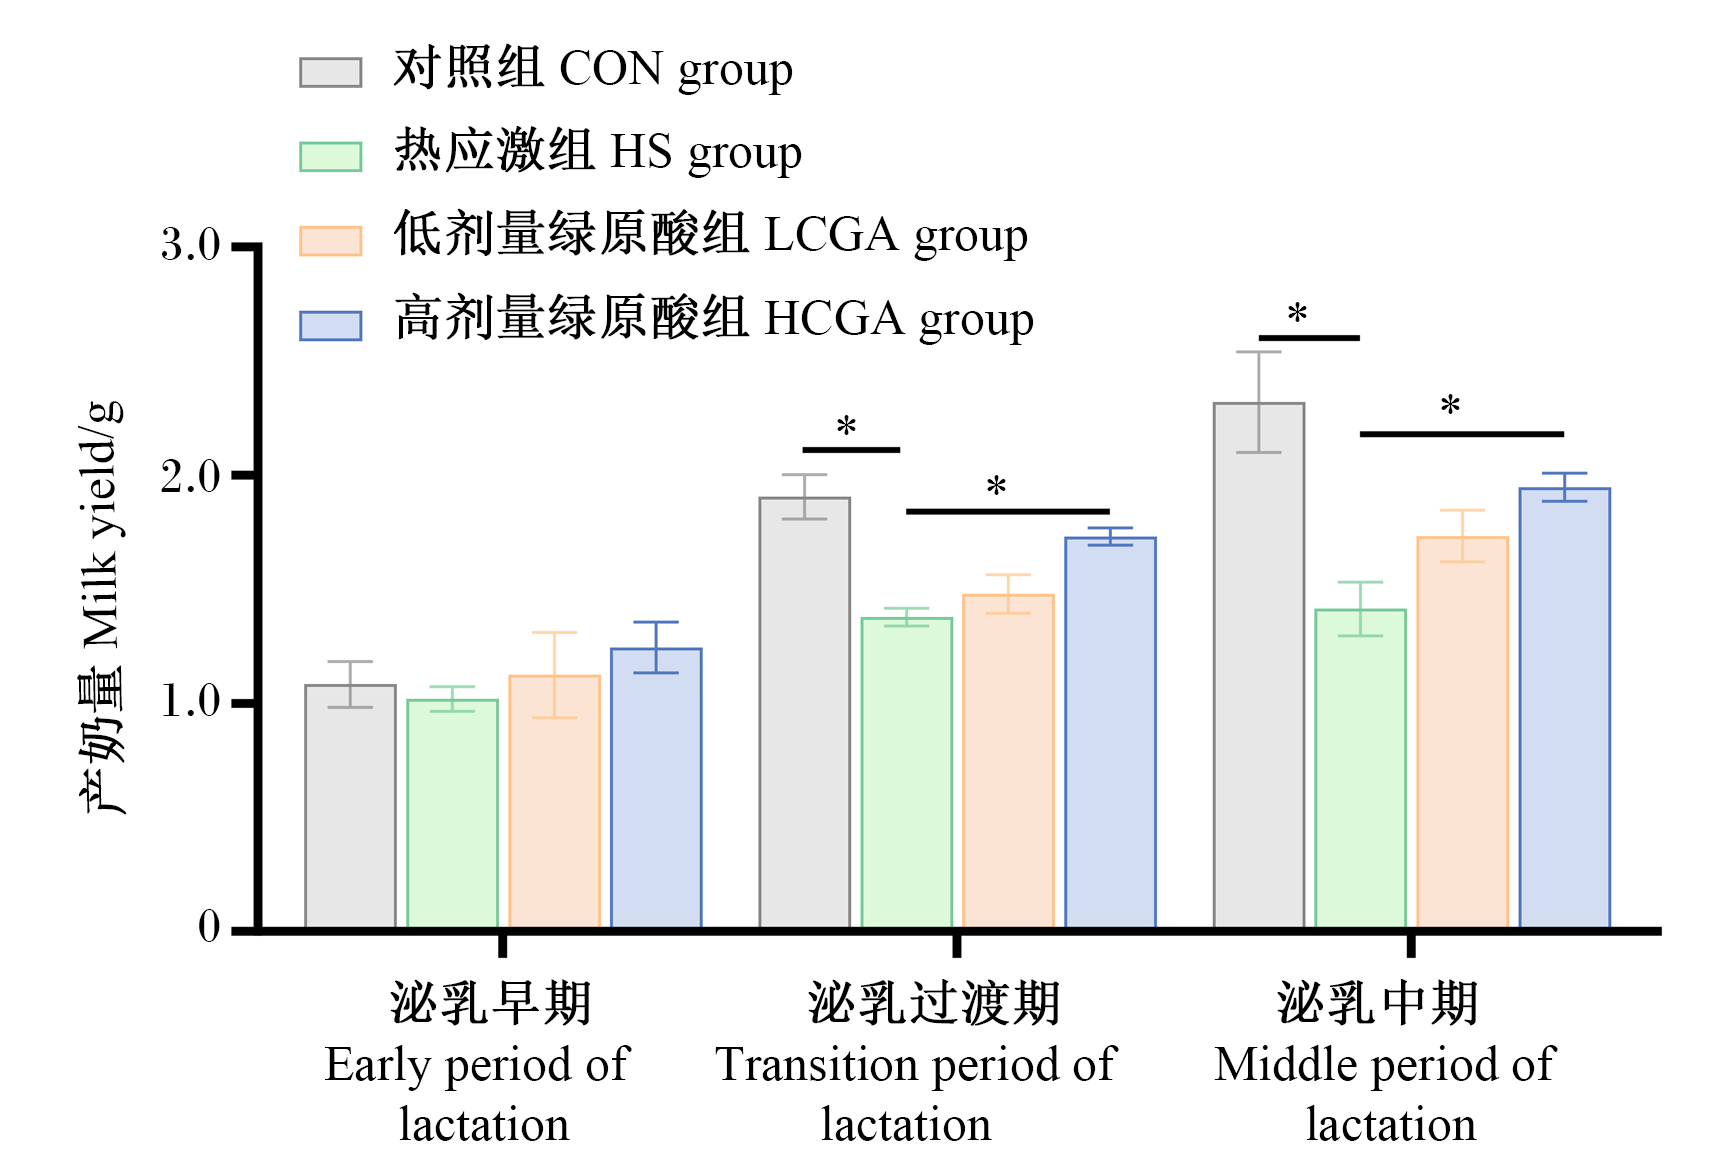
图3所示,在泌乳早期,各组之间母鼠产奶量差异不显著(P>0.05)。与CON组相比,HS组母鼠在泌乳过渡期和泌乳中期的产奶量显著降低(P<0.05),表明热应激明显抑制母鼠泌乳功能。与HS组相比,HCGA组母鼠在泌乳过渡期和泌乳中期的产奶量显著提高(P<0.05),表明高剂量CGA能有效缓解热应激对母鼠泌乳功能的抑制作用。
图3 CGA对热应激母鼠产奶量的影响

Fig.3 Effects of CGA on milk yield of heat-stressed mother mice

2.3 CGA对热应激母鼠乳腺组织形态的影响

图4所示,CON组母鼠乳腺腺泡结构完整,腺泡排列规则,腺泡腔内可见乳汁样内容物,未观察到明显的病理学改变。与CON组相比,HS组母鼠乳腺组织出现明显的病理损伤,表现为腺泡壁水肿并增厚,组织间隙扩大,并伴有明显的充血和淤血现象。经CGA处理后,热应激母鼠乳腺组织的病理损伤明显改善,充血和淤血程度减轻,腺泡壁水肿显著缓解。其中,HCGA组母鼠病理损伤的改善效果优于LCGA组,乳腺组织结构更接近CON组,表明CGA对热应激诱导的乳腺组织损伤具有剂量依赖性的保护作用。
图4 CGA对热应激母鼠乳腺组织形态的影响

Fig.4 Effects of CGA on mammary gland histopathology of heat-stressed mother mice

2.4 CGA对热应激母鼠乳腺中细胞因子和氧化应激指标的影响

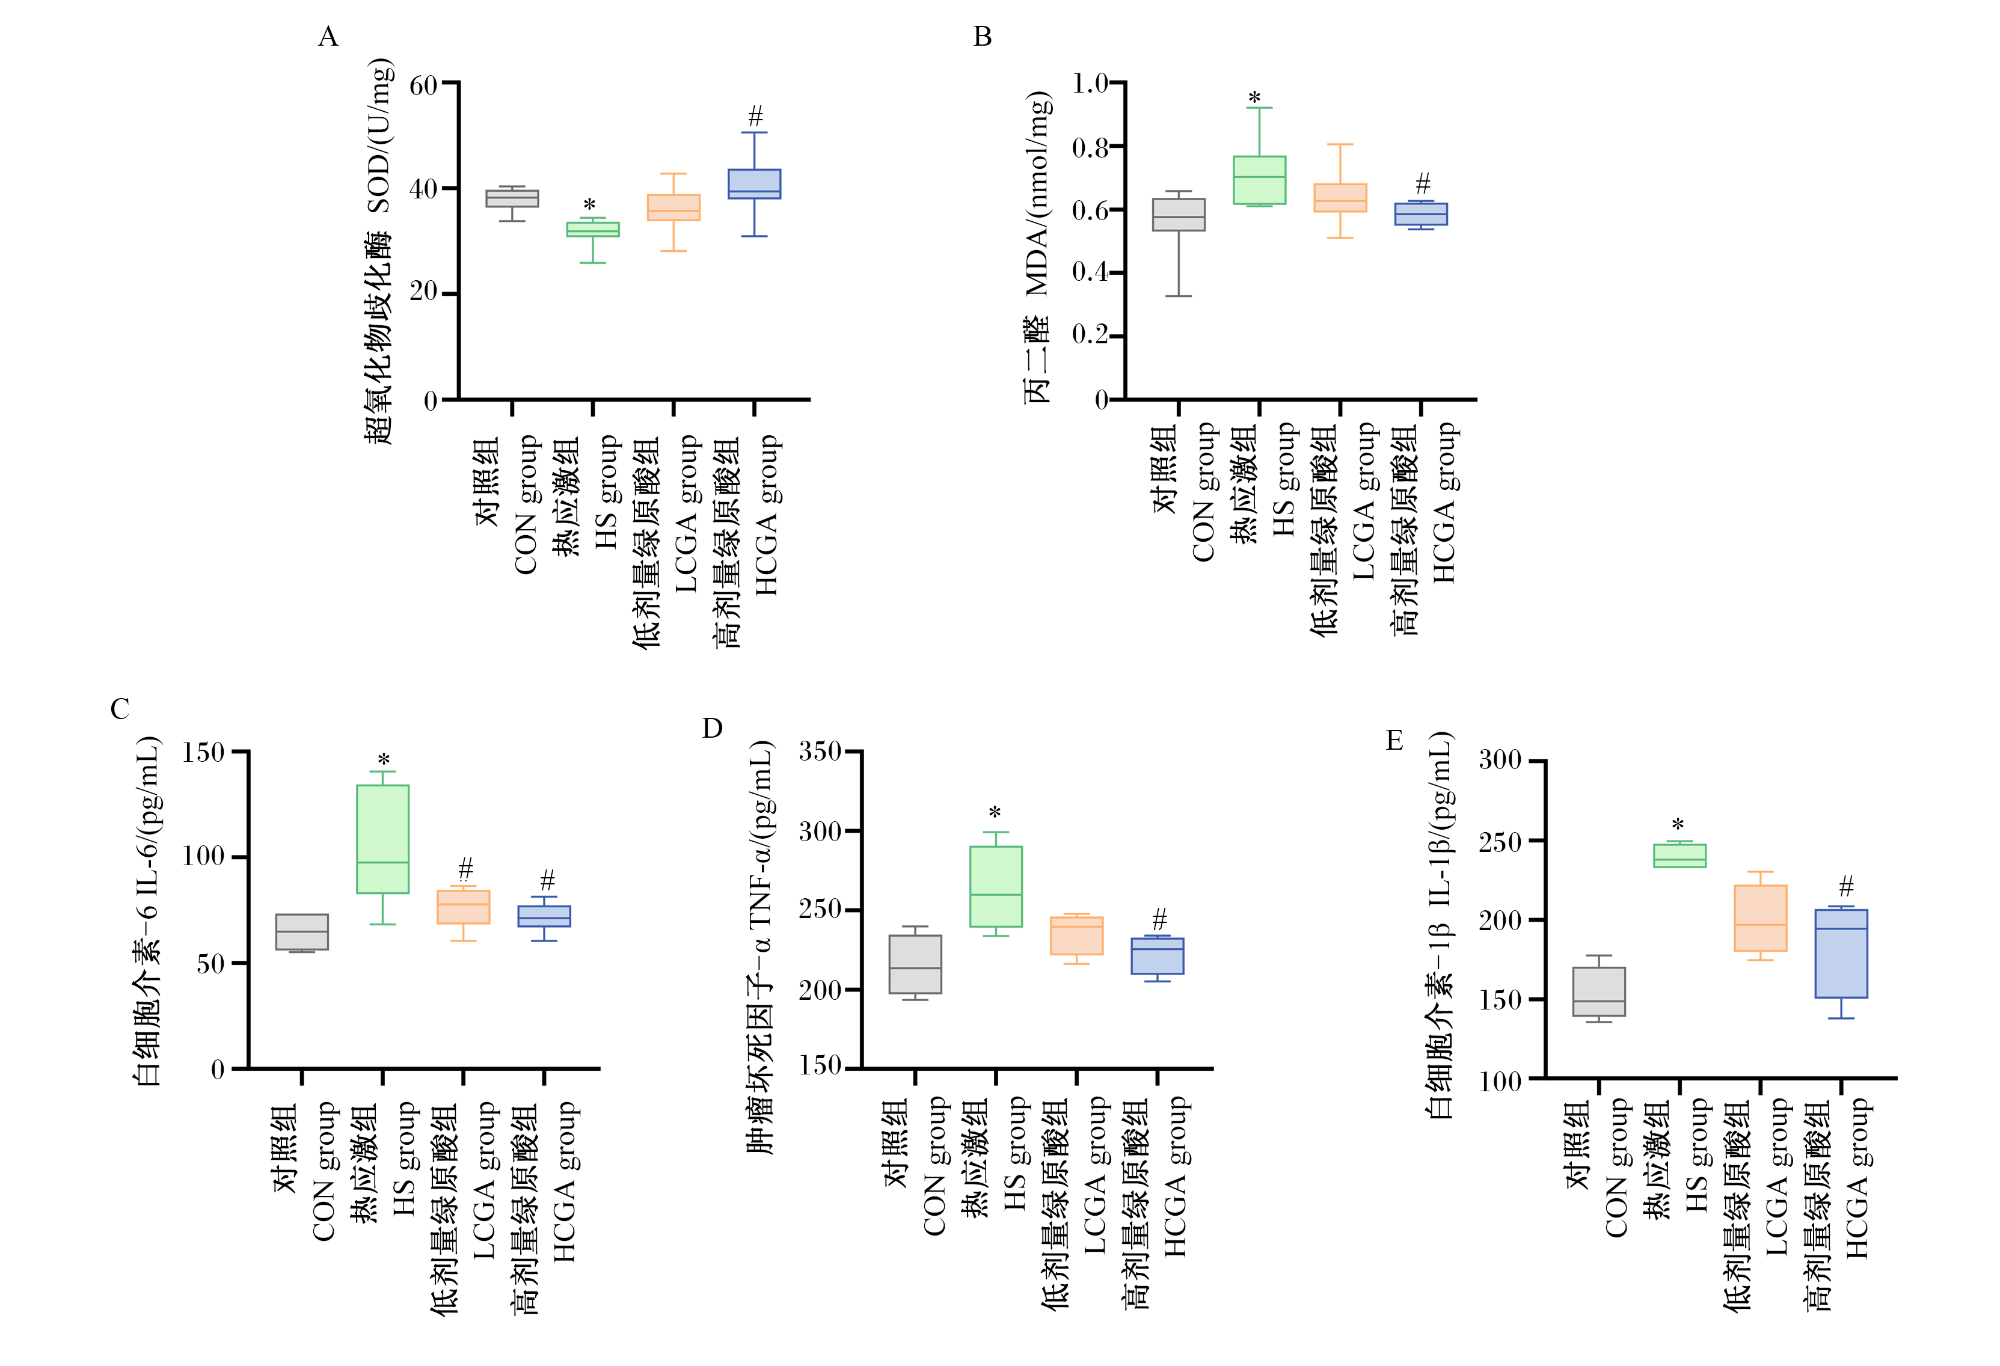
图5所示,与CON组相比,HS组乳腺中MDA含量显著升高(P<0.05),SOD活性显著降低(P<0.05),表明热应激显著诱导母鼠乳腺氧化损伤。与HS组相比,LCGA组乳腺中MDA含量和SOD活性均无显著差异(P>0.05);HCGA组乳腺中MDA含量显著降低(P<0.05),SOD活性显著提高(P<0.05),表明高剂量CGA对热应激诱导的母鼠乳腺氧化损伤具有明显的缓解作用。与CON组相比,HS组乳腺中IL-6、TNF-α和IL-1β含量均显著升高(P<0.05),表明热应激显著诱导母鼠乳腺炎症反应。与HS组相比,LCGA组乳腺中IL-6含量显著降低(P<0.05),TNF-α和IL-1β含量均无显著差异(P>0.05);HCGA组乳腺中IL-6、TNF-α和IL-1β含量均显著降低(P<0.05),表明高剂量CGA对热应激诱导的母鼠乳腺炎症反应具有明显的抗炎作用。
图5 CGA对热应激母鼠乳腺中细胞因子和氧化应激指标的影响

*代表与CON组相比差异显著(P<0.05),#代表与HS组相比差异显著(P<0.05)。下图同。

Fig.5 Effects of CGA on cytokines and oxidative stress indices in mammary gland of heat-stressed mother mice

* represented significant difference compared with the CON group (P<0.05), and # represented significant difference compared with the HS group (P<0.05). The same as below.

2.5 CGA对热应激母鼠乳腺中Nrf2信号通路关键基因和蛋白表达的影响

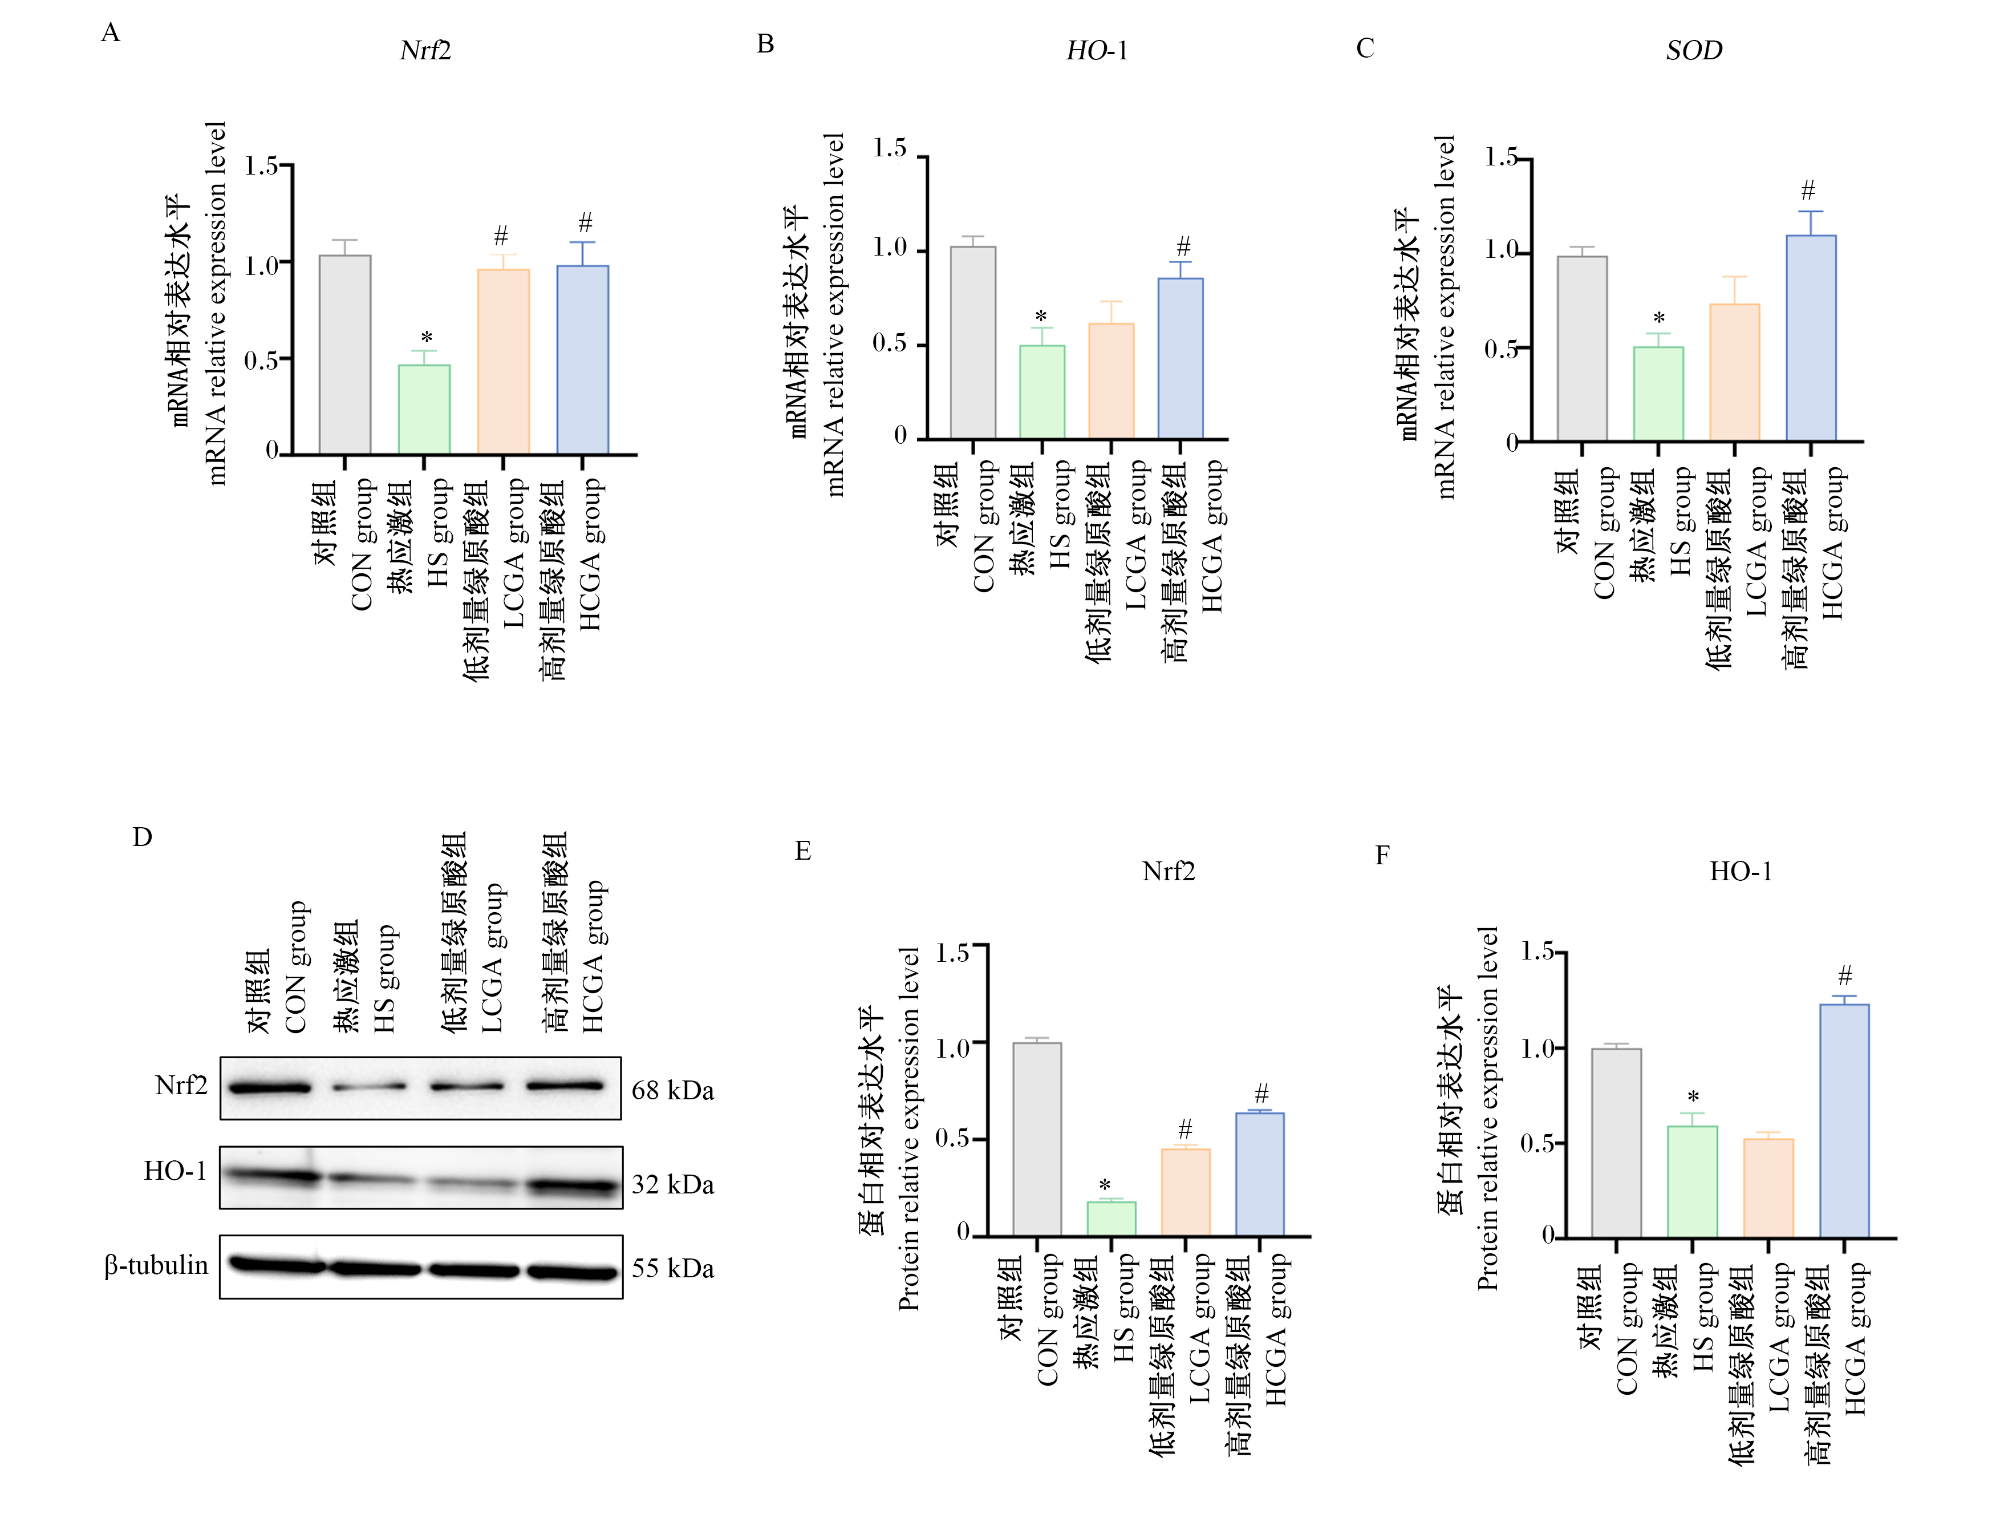
图6所示,与CON组相比,HS组乳腺中Nrf2、HO-1和SOD的mRNA相对表达水平均显著下调(P<0.05),表明热应激显著抑制了母鼠乳腺抗氧化防御系统的激活。与HS组相比,LCGA组乳腺中Nrf2的mRNA相对表达水平显著上调(P<0.01),HO-1和SOD的mRNA相对表达水平无显著差异(P>0.05);HCGA组乳腺中Nrf2、HO-1和SOD的mRNA相对表达水平均显著上调(P<0.05),表明高剂量CGA对母鼠乳腺抗氧化相关基因具有明显的调控作用。进一步的蛋白水平检测结果显示,与HS组相比,HCGA组乳腺中Nrf2和HO-1蛋白相对表达水平均显著升高(P<0.05),与其mRNA表达变化趋势一致,表明高剂量CGA可通过激活Nrf2信号通路,有效改善热应激诱导的母鼠乳腺氧化失衡状态。
图6 CGA对热应激母鼠乳腺中Nrf2信号通路关键基因和蛋白表达的影响

Nrf2:核因子E2相关因子2 nuclear factor erythroid 2-related factor 2;HO-1:血红素加氧酶-1 heme oxygenase-1;SOD:超氧化物歧化酶 superoxide dismutase;β-tubulin:β-微管蛋白。

Fig.6 Effects of CGA on expression of key genes and proteins in Nrf2 signaling pathway in mammary gland of heat-stressed mother mice

2.6 CGA对热应激母鼠乳腺中NF-κB/NLRP3炎症小体信号通路关键基因和蛋白表达的影响
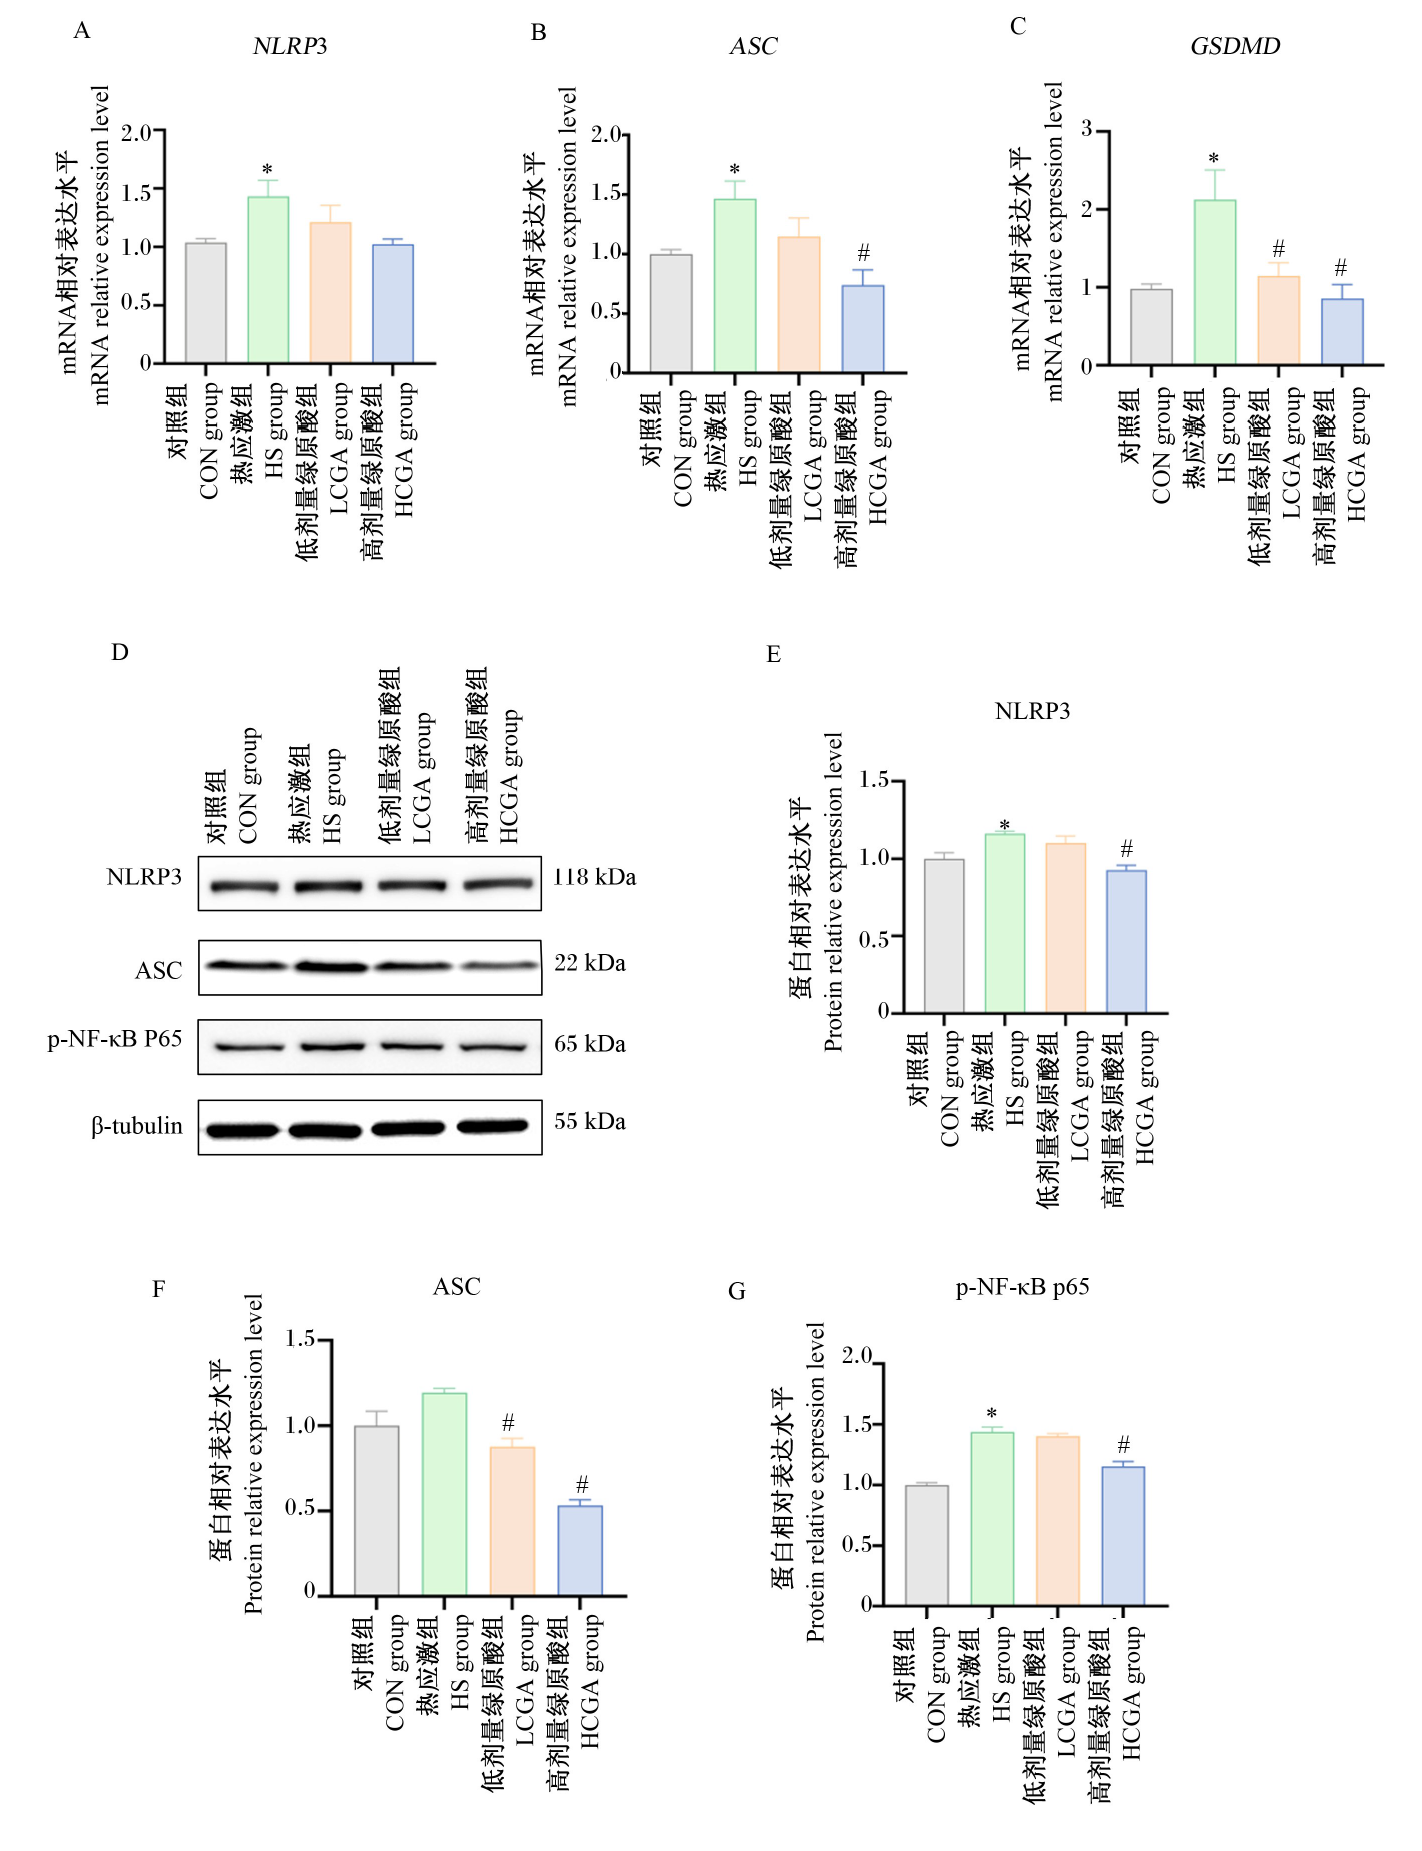
图7所示,与CON组相比,HS组乳腺中NLRP3、ASCGSDMD的mRNA相对表达水平均显著上调(P<0.05),表明热应激显著激活母鼠乳腺NF-κB/NLRP3炎症小体信号通路。与HS组相比,LCGA组乳腺中GSDMD的mRNA相对表达水平显著下调(P<0.05),NLRP3和ASC的mRNA相对表达水平无显著差异(P>0.05);HCGA组乳腺中ASCGSDMD的mRNA相对表达水平显著下调(P<0.05),表明高剂量CGA对NF-κB/NLRP3炎症小体信号通路相关基因具有明显的抑制作用。进一步的蛋白水平检测结果显示,与HS组相比,HCGA组乳腺中NLRP3、ASC及p-NF-κB p65的蛋白相对表达水平均显著降低(P<0.05),表明高剂量CGA可通过抑制NF-κB激活及NLRP3炎症小体组装,从而减轻热应激诱导的母鼠乳腺炎症反应。
图7 CGA对热应激母鼠乳腺中NF-κB/NLRP3炎症小体信号通路关键基因和蛋白表达的影响

NLRP3:核苷酸结合寡聚化结构域样受体蛋白3 nucleotide binding oligomerization domain-like receptor protein 3;ASC:凋亡相关斑点样蛋白 apoptosis associated speck-like protein containing a CARD;GSDMD:Gasdermin D;p-NF-κB p65:磷酸化核因子-κB p65 phosphorylated nuclear factor-κB;β-tubulin:β-微管蛋白。

Fig.7 Effects of CGA on expression of key genes and proteins in NF-κB/NLRP3 inflammasome signaling pathway in mammary gland of heat-stressed mother mice

3 讨论

3.1 CGA对热应激母鼠采食量和产奶量的影响

全球气候变暖导致极端高温事件频发,热应激已成为影响哺乳动物生理功能和生产性能的重要环境因素[12,21]。大量研究表明,热应激可通过抑制食物摄入、扰乱激素分泌及破坏能量代谢稳态,显著降低泌乳动物的泌乳性能[22-24]。泌乳期对环境变化尤为敏感,产奶量和乳品质不仅影响母体健康,还直接威胁后代的营养供给和生长发育[25-26]。在本研究中,热应激显著降低了泌乳期母鼠的采食量,并在产后第12天时引起体重显著下降,提示热应激对母鼠能量摄入和体况维持产生了不利影响。已有研究指出,高温条件下下丘脑体温调节中枢激活内侧饱食中枢,抑制外侧摄食中枢,从而导致采食行为减少[19,27]。采食量的持续下降将限制乳汁合成前体物质的供应,进而抑制泌乳功能的发挥[19,28]。与上述研究结果一致,本研究中HS组母鼠在泌乳过渡期和泌乳中期的产奶量显著下降,表明热应激可通过降低采食量间接抑制乳汁分泌。值得注意的是,补充高剂量CGA显著提高了热应激母鼠的采食量,并有效改善了产奶量,提示CGA具有缓解热应激对泌乳性能抑制作用的潜力。结合前期体外研究中CGA对热诱导MAC-T细胞活性的保护作用,推测CGA可能通过改善乳腺细胞功能和整体能量状态,从而促进泌乳性能的恢复[12]

3.2 CGA对热应激母鼠乳腺病理损伤的缓解作用

乳腺组织结构的完整性是乳汁正常合成与分泌的基础[29-30]。乳腺腺泡壁水肿和增厚会限制腺泡腔的扩张,阻碍乳汁的生成与排出,而组织淤血和充血则会破坏局部血液循环,影响营养物质和氧气的供应,并加重炎症反应,长期可诱发乳腺疾病[31-32]。本研究的组织病理学结果显示,热应激导致泌乳期母鼠乳腺腺泡壁水肿和增厚,并伴随明显的充血和淤血现象,表明热应激对乳腺组织结构造成了显著损伤。这些病理改变可能是热应激条件下乳腺功能受损和产奶量下降的重要组织学基础。相比之下,CGA可剂量依赖性地缓解热应激诱导的乳腺组织病理损伤,其中高剂量CGA对腺泡壁水肿、组织充血和淤血的改善效果尤为明显。乳腺组织结构的恢复有助于改善局部微环境,为乳汁合成和分泌提供良好的组织基础,从而促进泌乳性能的提升。

3.3 CGA通过缓解氧化应激和抑制炎症反应改善热应激母鼠乳腺功能

氧化应激被认为是热应激诱导组织损伤的重要机制之一[33-35]。脂质过氧化产物MDA的升高是氧化损伤发生的典型标志,而SOD作为关键抗氧化酶,在维持乳腺细胞氧化还原稳态中发挥重要作用[16,36-37]。本研究中,热应激显著提高了母鼠乳腺中MDA含量并降低了SOD活性,表明热应激加剧了泌乳期乳腺的氧化损伤;补充高剂量CGA可显著降低乳腺中MDA含量并提高SOD活性,提示CGA能有效增强乳腺抗氧化防御能力,缓解热应激诱导的氧化应激,进一步证实CGA具有良好的抗氧化潜力。除氧化损伤外,热应激还可诱导乳腺炎症反应的发生。TNF-α、IL-1β和IL-6是乳腺炎症过程中关键的促炎因子,可放大炎症信号并加重组织损伤[38-40]。本研究发现,热应激显著提高了母鼠乳腺中上述炎症因子的含量,而高剂量CGA可有效抑制其含量的异常升高,提示CGA在缓解热应激诱导乳腺炎症反应中发挥重要作用。
本研究中,进一步的分子机制研究表明,热应激抑制了乳腺中Nrf2及其下游抗氧化基因HO-1和SOD的表达,同时激活NF-κB/NLRP3炎症小体信号通路,表现为NLRP3、ASCGSDMD及p-NF-κB p65的表达上调。Nrf2是调控细胞抗氧化防御的核心转录因子,而NF-κB/NLRP3炎症小体信号通路在炎症放大和细胞焦亡中起关键作用[10,41-42]。补充CGA上调了Nrf2信号通路相关基因和蛋白的表达,并抑制NF-κB激活及NLRP3炎症小体组装。其中,ASC的表达下调提示NLRP3炎症小体组装受阻[43],而GSDMD的表达下调则表明炎症相关细胞焦亡过程受到抑制[44-45]
此外,Nrf2信号通路与NF-κB信号通路之间存在密切的相互调控关系。已有研究表明,Nrf2的激活不仅能够增强细胞抗氧化防御能力,还可通过抑制NF-κB的活化降低炎症因子的表达,从而在氧化应激与炎症反应之间发挥协同调节作用[46]。与此同时,HO-1作为Nrf2的重要下游效应分子,在维持细胞氧化还原稳态和抑制炎症反应中发挥关键作用,其表达上调有助于减轻组织氧化损伤并改善局部微环境稳定性,这可能是CGA缓解乳腺组织结构损伤的重要分子基础之一[47]。此外,NLRP3炎症小体的异常激活可进一步诱导GSDMD介导的细胞焦亡过程,而细胞焦亡是导致组织炎症反应放大和结构损伤的重要机制之一[48]。乳腺上皮细胞作为乳汁合成与分泌的主要功能细胞,其焦亡程度的增加可能影响乳腺结构完整性并削弱乳汁分泌能力[49]。本研究中,补充CGA降低了热应激诱导的母鼠乳腺中NLRP3、ASCGSDMD的mRNA相对表达水平,提示其可能与抑制炎症小体介导的细胞焦亡过程有关,从而减轻乳腺组织损伤并改善泌乳功能。上述结果表明,CGA可能通过调节Nrf2抗氧化相关因子表达并抑制NF-κB/NLRP3炎症小体相关因子表达,缓解热应激诱导的乳腺氧化损伤和炎症反应,最终改善泌乳功能。

4 结论

热应激抑制泌乳期母鼠的采食量和产奶量,并引起乳腺组织结构损伤、氧化应激加剧及炎症反应激活。补充CGA可有效改善热应激母鼠的泌乳性能,缓解乳腺组织充血、淤血及腺泡水肿等病理改变,降低脂质过氧化水平并提高抗氧化酶活性,从而减轻乳腺氧化损伤。
[1]
HUANG Q, XIAO Y, SUN P. Rumen-mammary gland axis and bacterial extracellular vesicles:exploring a new perspective on heat stress in dairy cows[J]. Animal Nutrition, 2024, 19:70-75.

DOI

[2]
MA F T, SHAN Q, JIN Y H, et al. Effect of Lonicera japonica extract on lactation performance,antioxidant status,and endocrine and immune function in heat-stressed mid-lactation dairy cows[J]. Journal of Dairy Science, 2020, 103(11):10074-10082.

DOI

[3]
LIANG X Z, WU Y, CHAMBERS R G, et al. Determining climate effects on US total agricultural productivity[J]. Proceedings of the National Academy of Sciences, 2017, 114(12):E2285-E2292.

[4]
GUJAR G, TIWARI M, YADAV N, et al. Heat stress adaptation in cows-physiological responses and underlying molecular mechanisms[J]. Journal of Thermal Biology, 2023, 118:103740.

DOI

[5]
LEMAL P, MAY K, KÖNIG S, et al. Invited review:from heat stress to disease-immune response and candidate genes involved in cattle thermotolerance[J]. Journal of Dairy Science, 2023, 106(7):4471-4488.

DOI

[6]
DADO-SENN B, SKIBIEL A L, FABRIS T F, et al. Dry period heat stress induces microstructural changes in the lactating mammary gland[J]. PLoS One, 2019, 14(9):e0222120.

DOI

[7]
BARATTA M, MIRETTI S, MACCHI E, et al. Mammary stem cells in domestic animals:the role of ROS[J]. Antioxidants, 2019, 8(1):6.

DOI

[8]
LU L, LIU H, WU Y, et al. Development and characterization of near-isogenic lines revealing candidate genes for a major 7AL QTL responsible for heat tolerance in wheat[J]. Frontiers in Plant Science, 2020, 11:1316.

DOI PMID

[9]
JHANG J J, CHENG Y T, HO C Y, et al. Monosodium urate crystals trigger Nrf2- and heme oxygenase-1-dependent inflammation in THP-1 cells[J]. Cellular & Molecular Immunology, 2015, 12(4):424-434.

[10]
CAO Z C, WANG H M, CHEN J L, et al. Silk-based hydrogel incorporated with metal-organic framework nanozymes for enhanced osteochondral regeneration[J]. Bioactive Materials, 2023, 20:221-242.

DOI PMID

[11]
LEE J, SONG K, HUH E, et al. Neuroprotection against 6-OHDA toxicity in PC12 cells and mice through the Nrf2 pathway by a sesquiterpenoid from Tussilago farfara[J]. Redox Biology, 2018, 18:6-15.

DOI

[12]
HUANG Q, SHAN Q, MA F T, et al. Chlorogenic acid mitigates heat stress-induced oxidative damage in bovine mammary epithelial cells by inhibiting NF-κB-mediated NLRP3 inflammasome activation via upregulating the Nrf2 signaling pathway[J]. International Journal of Biological Macromolecules, 2025, 301:140133.

DOI

[13]
ALI I, LI C M, KUANG M Q, et al. Nrf2 activation and NF-κB & caspase/bax signaling inhibition by sodium butyrate alleviates LPS-induced cell injury in bovine mammary epithelial cells[J]. Molecular Immunology, 2022, 148:54-67.

DOI

[14]
CUI D L, LIU S Y, TANG M H, et al. Phloretin ameliorates hyperuricemia-induced chronic renal dysfunction through inhibiting NLRP3 inflammasome and uric acid reabsorption[J]. Phytomedicine, 2020, 66:153111.

DOI

[15]
CHOI R J, CHENG M S, KIM Y S. Desoxyrhapontigenin up-regulates Nrf2-mediated heme oxygenase-1 expression in macrophages and inflammatory lung injury[J]. Redox Biology, 2014, 2:504-512.

DOI PMID

[16]
HUANG Q, LIU J S, PENG C, et al. Hesperidin ameliorates H2O2-induced bovine mammary epithelial cell oxidative stress via the Nrf2 signaling pathway[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):57.

DOI

[17]
CHEN S C, YANG C S, CHEN J J. Main bioactive components and their biological activities from natural and processed rhizomes of Polygonum sibiricum[J]. Antioxidants, 2022, 11(7):1383.

DOI

[18]
SHI A M, LI T, ZHENG Y, et al. Chlorogenic acid improves NAFLD by regulating gut microbiota and GLP-1[J]. Frontiers in Pharmacology, 2021, 12:693048.

DOI

[19]
HAN J L, SHAO J J, CHEN Q, et al. Transcriptional changes in the hypothalamus,pituitary,and mammary gland underlying decreased lactation performance in mice under heat stress[J]. The FASEB Journal, 2019, 33(11):12588-12601.

DOI

[20]
MADER T L, DAVIS M S, BROWN-BRANDL T. Environmental factors influencing heat stress in feedlot cattle[J]. Journal of Animal Science, 2006, 84(3):712-719.

PMID

[21]
SAADELDIN I M, SWELUM A A A, ELSAFADI M, et al. Thermotolerance and plasticity of camel somatic cells exposed to acute and chronic heat stress[J]. Journal of Advanced Research, 2020, 22:105-118.

DOI PMID

[22]
MIN L, CHENG J B, SHI B L, et al. Effects of heat stress on serum insulin,adipokines,AMP-activated protein kinase,and heat shock signal molecules in dairy cows[J]. Journal of Zhejiang University:Science B, 2015, 16(6):541-548.

DOI

[23]
PARK T, MA L, GAO S T, et al. Heat stress impacts the multi-domain ruminal microbiota and some of the functional features independent of its effect on feed intake in lactating dairy cows[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):71.

DOI PMID

[24]
DAS R, SAILO L, VERMA N, et al. Impact of heat stress on health and performance of dairy animals:a review[J]. Veterinary World, 2016, 9(3):260-268.

DOI

[25]
ALEXANDRE-GOUABAU M C, DAVID-SOCHARD A, ROYER A L, et al. Moderate high caloric maternal diet impacts dam breast milk metabotype and offspring lipidome in a sex-specific manner[J]. International Journal of Molecular Sciences, 2020, 21(15):5428.

DOI

[26]
BOUROUTZIKA E, KOURETAS D, PAPADOPOULOS S, et al. Effects of melatonin administration to pregnant ewes under heat-stress conditions,in redox status and reproductive outcome[J]. Antioxidants, 2020, 9(3):266.

DOI

[27]
ALBRIGHT J L, ALLISTON C W. Effects of varying the environment upon the performance of dairy cattle[J]. Journal of Animal Science, 1971, 32(3):566-577.

DOI

[28]
JENSEN C, ØSTERGAARD S, SCHEI I, et al. A Meta-analysis of milk production responses to increased net energy intake in Scandinavian dairy cows[J]. Livestock Science, 2015, 175:59-69.

DOI

[29]
XIANG K H, SHEN P, GAO Z Y, et al. Formononetin protects LPS-induced mastitis through suppressing inflammation and enhancing blood-milk barrier integrity via AhR-induced Src inactivation[J]. Frontiers in Immunology, 2022, 13:814319.

DOI

[30]
LIU S Q, GUO W J, JIA Y X, et al. Menthol targeting AMPK alleviates the inflammatory response of bovine mammary epithelial cells and restores the synthesis of milk fat and milk protein[J]. Frontiers in Immunology, 2021, 12:782989.

DOI

[31]
WALL E H, MCFADDEN T B. Triennial lactation symposium:a local affair:how the mammary gland adapts to changes in milking frequency[J]. Journal of Animal Science, 2012, 90(5):1695-1707.

DOI

[32]
OLIVER S P, CALVINHO L F. Influence of inflammation on mammary gland metabolism and milk composition[J]. Journal of Animal Science, 1995, 73(S2):18-33.

DOI

[33]
LIU Z, LIU Y S, XING T, et al. Transcriptome analysis reveals the mechanism of chronic heat stress on meat quality of broilers[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):110.

DOI PMID

[34]
WANG Y R, YANG C X, ELSHEIKH N A H, et al. HO-1 reduces heat stress-induced apoptosis in bovine granulosa cells by suppressing oxidative stress[J]. Aging, 2019, 11(15):5535-5547.

DOI

[35]
ARANDA-CAÑO L, VALDERRAMA R, PEDRAJAS J R, et al. Nitro-oleic acid-mediated nitroalkylation modulates the antioxidant function of cytosolic peroxiredoxin Tsa1 during heat stress in Saccharomyces cerevisiae[J]. Antioxidants, 2022, 11(5):972.

DOI

[36]
FEI W T, ZHANG J J, YU S H, et al. Antioxidative and energy metabolism-improving effects of maca polysaccharide on cyclophosphamide-induced hepatotoxicity mice via metabolomic analysis and Keap1-Nrf2 pathway[J]. Nutrients, 2022, 14(20):4264.

DOI

[37]
LI C, TAN F, YANG J J, et al. Antioxidant effects of Apocynum venetum tea extracts on D-galactose-induced aging model in mice[J]. Antioxidants, 2019, 8(9):381.

DOI

[38]
DING Q, WANG Y, XIA S W, et al. SIRT4 expression ameliorates the detrimental effect of heat stress via AMPK/mTOR signaling pathway in BMECs[J]. International Journal of Molecular Sciences, 2022, 23(21):13307.

DOI

[39]
AKHTAR M, GUO S, GUO Y F, et al. Upregulated-gene expression of pro-inflammatory cytokines (TNF-α,IL-1β and IL-6) via TLRs following NF-κB and MAPKs in bovine mastitis[J]. Acta Tropica, 2020, 207:105458.

DOI

[40]
KOBAYASHI K, MATSUNAGA K, TSUGAMI Y, et al. IL-1β is a key inflammatory cytokine that weakens lactation-specific tight junctions of mammary epithelial cells[J]. Experimental Cell Research, 2021, 409(2):112938.

DOI

[41]
FONG C H Y, BEBIEN M, DIDIERLAURENT A, et al. An antiinflammatory role for IKKbeta through the inhibition of “classical” macrophage activation[J]. Journal of Experimental Medicine, 2008, 205(6):1269-1276.

DOI

[42]
MIYAZAKI T, ZHAO Z, ICHIHARA Y, et al. Mechanical regulation of bone homeostasis through p130Cas-mediated alleviation of NF-κB activity[J]. Science Advances, 2019, 5(9):eaau7802.

DOI

[43]
BROZ P, NEWTON K, LAMKANFI M, et al. Redundant roles for inflammasome receptors NLRP3 and NLRC4 in host defense against Salmonella[J]. Journal of Experimental Medicine, 2010, 207(8):1745-1755.

DOI

[44]
YANG J, LIU Z H, WANG C P, et al. Mechanism of gasdermin D recognition by inflammatory caspases and their inhibition by a gasdermin D-derived peptide inhibitor[J]. Proceedings of the National Academy of Sciences, 2018, 115(26):6792-6797.

DOI

[45]
XUE Z Y, XI Q, LIU H K, et al. miR-21 promotes NLRP3 inflammasome activation to mediate pyroptosis and endotoxic shock[J]. Cell Death & Disease, 2019, 10(6):461.

[46]
WU S J, LIAO X Y, ZHU Z J, et al. Antioxidant and anti-inflammation effects of dietary phytochemicals:the Nrf2/NF-κB signalling pathway and upstream factors of Nrf2[J]. Phytochemistry, 2022, 204:113429.

DOI

[47]
CAMPBELL N K, FITZGERALD H K, DUNNE A. Regulation of inflammation by the antioxidant haem oxygenase 1[J]. Nature Reviews Immunology, 2021, 21(7):411-425.

DOI PMID

[48]
VANDE WALLE L, LAMKANFI M. Drugging the NLRP3 inflammasome:from signalling mechanisms to therapeutic targets[J]. Nature Reviews Drug Discovery, 2024, 23(1):43-66.

DOI

[49]
RAN X, LI K F, LI Y T, et al. HCAR2 modulates the crosstalk between mammary epithelial cells and macrophages to mitigate Staphylococcus aureus infection in the mouse mammary gland[J]. Advanced Science, 2025, 12(9):2411947.

DOI

Outlines

/