RESEARCH PAPER

Effects of Alfalfa Flavonoids on Reproductive Development and Gut Microbiota of Pubertal Female Rats

  • LI Jiebing , 1 ,
  • WANG Meng 2 ,
  • WANG Zhiyuan 2 ,
  • WANG Xuanxuan 2 ,
  • WANG Xiao 2 ,
  • ZHANG Shuhua 3 ,
  • ZHU Xiaoyan , 1, 4, 5, *
Expand
  • 1 College of Animal Science and Technology, Henan Agricultural University, Zhengzhou 450046, China
  • 2 College of International Education, Henan Agricultural University, Zhengzhou 450046, China
  • 3 College of Life Sciences, Henan Agricultural University, Zhengzhou 450046, China
  • 4 Henan Key Laboratory of Innovation and Utilization of Grassland Resources, Zhengzhou 450046, China
  • 5 Henan Forage Engineering Technology Research Center, Zhengzhou 450046, China
* associate professor, E-mail:

Received date: 2026-01-26

  Online published: 2026-09-12

Abstract

This study aimed to investigate the effects of alfalfa flavonoids on growth performance, puberty onset, serum hormone levels, follicular development, embryo implantation, hypothalamic-pituitary-ovarian axis related gene expression, inflammatory responses, and gut microbiota of pubertal female rats. Sixty 21-day-old specific pathogen-free (SPF) grade SD female rats were randomly assigned to 4 groups with 15 replicates per group and 1 rat per replicate. After 7 days of adaptive feeding, rats in the control group (CK group) were administered physiological saline by gavage, whereas rats in the low-, medium- and high-dose alfalfa flavonoid groups were administered 31.25 (LG group), 62.50 (MG group) and 125.00 mg/kg (HG group) alfalfa flavonoids by gavage, respectively. The gavage volume was 2 mL/d for all groups, and gavage was performed once daily at 09:00 for 21 consecutive days. The results showed as follows: 1) compared with the CK group, the average daily feed intake and average daily gain in the LG group were significantly increased (P<0.05), the age of vaginal opening in the LG and MG groups was significantly earlier (P<0.05), but the age of vaginal opening in the HG group was significantly later (P<0.05). 2) Compared with the CK group, the serum luteinizing hormone (LH) and interleukin-10 (IL-10) levels in the LG group were significantly increased (P<0.05). 3) Compared with the CK group, the ovarian index and numbers of mature follicles and corpora lutea in the LG group were significantly increased (P<0.05). 4) Compared with the CK group, the mRNA relative expression levels of follicle-stimulating hormone β (FSHβ), follicle-stimulating hormone receptor (FSHR) and estrogen receptor β (ERβ) in the LG group were significantly increased (P<0.05). 5) Compared with the CK group, the relative abundance of Actinobacteriota in gut in the LG group was significantly decreased (P<0.05), whereas the relative abundances of Bacteroidota and Cyanobacteria in gut were significantly increased (P<0.05). 6) Compared with the CK group, the relative abundance of Lactobacillus in gut in the LG group was significantly increased (P<0.05), whereas the relative abundances of Romboutsia, Clostridium_sensu_stricto_1 and Turicibacter in gut were significantly decreased (P<0.05). In conclusion, gavage administration of alfalfa flavonoids at 31.25 mg/kg shows the best overall effects in pubertal female rats. Alfalfa flavonoids effectively promote sexual maturation and reproductive system development through the coordinated regulation of endocrine function, immune responses, and gut microbial ecology, indicating their potential use as a functional feed additive.

Cite this article

LI Jiebing , WANG Meng , WANG Zhiyuan , WANG Xuanxuan , WANG Xiao , ZHANG Shuhua , ZHU Xiaoyan . Effects of Alfalfa Flavonoids on Reproductive Development and Gut Microbiota of Pubertal Female Rats[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 7048 -7062 . DOI: 10.12418/CJAN2026.562

苜蓿黄酮是从紫花苜蓿(Medicago sativa L.)中分离得到的重要天然活性成分之一,具有抗氧化、抗炎、免疫调节和雌激素样活性等多种生物学功能[1-2]。作为来源天然、安全性高且无药物残留风险的植物次生代谢物,苜蓿黄酮在畜禽生产中具备替代抗生素、开发成为绿色饲料添加剂的应用潜力[3]。已有研究表明,苜蓿活性成分可通过提高机体抗氧化酶活性、降低炎症因子表达、促进免疫器官发育,从而维持机体免疫稳态[4-5]。在动物生产中,饲粮中补充苜蓿黄酮能够改善禽类生长性能和免疫水平[6],调节断奶仔猪结肠微生物组成并影响营养物质消化代谢[7],改变奶牛瘤胃菌群结构特征,进而影响营养物质发酵利用与代谢产物生成[8]。在生殖方面,已有研究发现,给妊娠雌性大鼠灌胃苜蓿总黄酮可提高其繁殖性能,增加产仔数和初生窝重[9]。此外,植物黄酮因其结构上含有类似雌激素的酚环结构,可与雌激素受体结合,发挥雌激素样活性生物效应,从而参与调控卵泡发育及生殖激素分泌[10]。课题组前期研究亦证实,配种前灌胃120 mg/kg苜蓿黄酮能够提高雌性大鼠血清雌二醇(E2)水平并改善卵巢功能[11],提示苜蓿黄酮可能在雌性动物生殖调控中发挥重要作用。
青春期是雌性哺乳动物生殖系统由未成熟向成熟阶段过渡的关键时期,此阶段下丘脑-垂体-卵巢(hypothalamic-pituitary-ovarian,HPO)轴逐步建立并趋于完善,生殖激素分泌水平升高,卵泡发育加速,初次发情的出现标志着性成熟的启动[12]。青春期发育进程的稳定与否,对成年期生殖能力的建立具有决定性意义[13]。然而,该阶段对外界刺激高度敏感,营养供给失衡、氧化应激增强及炎性反应激活等因素都可能干扰HPO轴的正常调控,导致性成熟提前或延迟,进而对后续繁殖性能产生不利影响[14]。因此,在青春期这一生殖发育关键窗口期,探索安全、有效的营养调控策略以优化生殖发育过程,对于促进雌性动物生殖健康具有重要意义。近年来,肠道菌群被认为是连接营养代谢与生殖发育的重要调控枢纽[15]。研究表明,肠道菌群可通过调节短链脂肪酸合成、胆汁酸代谢以及炎症因子释放等途径,参与卵巢功能调控并影响雌激素水平[16]。与此同时,植物黄酮在体内的转化和生物活性发挥亦依赖肠道菌群的参与,其过程受菌群结构及相关代谢酶活性调控[17]。基于此,从青春期这一关键生理阶段出发,系统关注肠道菌群在苜蓿黄酮调节雌性动物生殖发育过程中的作用,为阐明其潜在机制提供了重要理论依据。
目前,关于苜蓿黄酮对青春期雌性动物生殖发育调控作用的研究仍较为有限,尤其在剂量依赖性、生殖轴相关发育、炎性反应以及肠道菌群结构变化等方面,尚缺乏系统而全面的评价。此外,苜蓿黄酮是否可通过改善机体内分泌状态和肠道微生态平衡,从而协同促进青春期雌性动物生殖功能增强,仍有待进一步阐明。鉴于此,本研究以青春期SD雌性大鼠为研究模型,通过灌胃不同剂量的苜蓿黄酮,系统评估对其生长性能、初情启动、血清激素水平、炎性指标、卵泡发育、胚胎着床及肠道菌群结构的影响,旨在揭示苜蓿黄酮促进青春期雌性大鼠生殖发育的生物学效应,为苜蓿黄酮作为天然功能性营养因子在畜禽繁殖健康调控中的应用提供理论依据和科学基础。

1 材料与方法

1.1 试验材料

试验用苜蓿黄酮为商业提取物,总黄酮含量为35%。饲粮配方设计和生产参照国家标准《实验动物 配合饲料营养成分》(GB 14924.3—2010),经过辐照灭菌处理,饲粮组成及营养水平见表1
表1 饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the diet (DM basis)

项目Items 含量Content
原料Ingredients
玉米Corn 51.00
次粉Wheat middlings 10.00
小麦Wheat 10.00
豆粕Soybean meal 10.00
秘鲁鱼粉Peruvian fish meal 5.00
美国鸡肉粉American chicken meal 5.00
预混料Premix1) 4.00
中料Medium feed2) 4.00
大豆油Soybean oil 1.00
合计Total 100.00
营养水平Nutrient levels3)
代谢能ME/(MJ/kg) 14.96
粗蛋白质CP 20.42
粗脂肪EE 4.56
粗纤维CF 2.21
粗灰分Ash 4.91
钙Ca 1.04
总磷TP 0.85

1)预混料为每千克饲粮提供 The premix provided the following per kilogram of the diet:VA 21 974 IU,VD3 3 323 IU,VE 207 mg,VK 16 mg,VB1 17 mg,VB2 42 mg,VB6 19.5 mg,烟酸 niacin 75 mg,泛酸 pantothenic acid 32.7 mg,叶酸 folic acid 6.68 mg,生物素 biotin 0.33 mg,VB12 0.029 mg,Cu 11.2 mg,Fe 166 mg,Mn 80.5 mg,Zn 60.3 mg,Se 0.2 mg。

2)主要包含石粉、磷酸氢钙、食盐、氯化镁和胆碱。Primarily consisted of limestone, dicalcium phosphate, sodium chloride, magnesium chloride and choline.

3)代谢能为计算值[18],粗蛋白质、粗脂肪、粗纤维、粗灰分、钙和总磷含量分别参照GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2006、GB/T 6438—2007、GB/T 6436—2018和GB/T 6437—2018的方法测定。ME was a calculated value[18], the contents of CP, EE, CF, Ash, Ca, and TP were determined according to the methods of GB/T 6432—2018, GB/T 6433—2006, GB/T 6434—2006, GB/T 6438—2007, GB/T 6436—2018 and GB/T 6437—2018, respectively.

1.2 试验设计

本研究的动物使用和试验方案均已通过河南农业大学动物伦理委员会批准(伦理批准号:HENAU-2022-019)。试验用无特定病原体(specific pathogen free,SPF)级SD雌性大鼠购自山东省实验动物中心。选用60只体重相近的21日龄断奶SD雌性大鼠,随机分为4组,每组15个重复,每个重复1只。适应性喂养7 d后,对照组(CK组)灌胃生理盐水,低、中、高剂量苜蓿黄酮组分别灌胃31.25(LG组)、62.50(MG组)和125.00 mg/kg(HG组)苜蓿黄酮(以黄酮含量计)。各组灌胃剂量均为2 mL/d,每天09:00灌胃1次,连续灌胃21 d。

1.3 饲养管理

试验全程在SPF级实验动物房内进行,大鼠自由采食和饮水,环境条件为室温18~22 ℃、相对湿度40%~70%,12 h光照/12 h黑暗(08:00—20:00为光照时间),日常健康状况按常规程序观察记录。

1.4 指标测定

1.4.1 发情期判定与配种

正式试验期间,每日08:00观察各组雌性大鼠阴门发育情况,记录阴门开启日龄和体重。待体重达到约190 g后,每组均随机选取7只雌性大鼠进行发情周期监测。阴道涂片采集及发情周期判断方法参照本课题组前期研究[19]。当个体被判定为发情期时,乙醚麻醉后分别采集血清、卵巢、下丘脑、垂体、肠道组织及肠道内容物等样品。各组其余8只雌性大鼠用于配种试验。按雌∶雄=2∶1于每日20:00合笼,次日08:00分笼,通过阴道涂片检出精子与否判断受配情况;若为阳性则记为妊娠第1天。妊娠第8天08:00对孕鼠麻醉解剖,采集子宫并记录胚胎着床数。

1.4.2 生长性能

正式试验期间,每日记录投料量和剩余饲料量,以计算各组雌性大鼠的平均日采食量(ADFI);每周在固定时间称量体重,以计算平均日增重(ADG)。计算公式如下:
平均日采食量(g/d)=(投料量-剩料量)/(大鼠数量×试验天数);
平均日增重(g/d)=体重增重量/试验天数。

1.4.3 血清激素水平及炎性指标

采集发情期雌性大鼠血样,使用Sorvall ST 16R冷冻离心机(Thermo Fisher Scientific,美国)于4 ℃、1 006×g离心15 min分离血清,-20 ℃保存待测。采用酶联免疫吸附法(enzyme-linked immunosorbent assay,ELISA)检测血清中生殖激素[促性腺激素释放激素(GnRH)、E2、促卵泡刺激素(FSH)、促黄体生成素(LH)、孕酮(PROG)、抗缪勒管激素(AMH)]及炎性因子[肿瘤坏死因子-α(TNF-α)、白细胞介素-10(IL-10)]水平。ELISA试剂盒购自江苏省协同医药生物工程有限责任公司,所有操作均严格按照试剂盒说明书进行。

1.4.4 卵巢和卵泡发育指标

采血后的发情期雌性大鼠打开腹腔,无菌分离出卵巢,称量卵重质量,计算卵巢指数。左侧卵巢经10%甲醛固定后按常规石蜡切片流程处理,制备5 μm苏木精-伊红(hematoxylin-eosin,HE)切片,并在荧光倒置显微镜(IX73型,Olympus,日本)下观察[20],统计各级卵泡和黄体的数量,计算各级卵泡或黄体比例。计算公式如下:
卵巢指数(%)=(卵巢重量/屠宰体重)×100;
各级卵泡或黄体比例(%)=[各级卵泡或黄体数量/(总卵泡+黄体数量) ]×100。

1.4.5 胚胎着床数

于妊娠第8天08:00麻醉处死孕鼠后,打开子宫记录胚胎着床位点数量。

1.4.6 HPO轴相关基因表达

前期结果表明,LG组综合效果最佳,因此后续HPO轴相关基因表达仅在CK组和LG组中进行检测,用于评估苜蓿黄酮对HPO轴相关基因表达的调节作用。青春期雌性大鼠右侧卵巢及下丘脑、垂体组织取材后立即投入液氮速冻,随后转存于-80 ℃备用。总RNA采用Trizol法提取,其浓度及纯度由NanoDrop 2000微量分光光度计(Thermo Fisher Scientific,美国)测定。反转录使用HiScript Ⅲ RT SuperMix for qPCR(+gDNA wiper)反转录试剂盒(南京诺唯赞生物科技股份有限公司),实时荧光定量PCR使用LightCycler 96实时荧光定量PCR仪(Roche Diagnostics,瑞士)配合ChamQ Universal SYBR qPCR Master Mix荧光定量PCR试剂盒(南京诺唯赞生物科技股份有限公司)完成,实时荧光定量PCR引物序列见表2。以β-肌动蛋白(β-actin)为内参基因,采用2-ΔΔCt法计算HPO轴相关基因[下丘脑促性腺激素释放激素1(GnRH1),垂体促性腺激素释放激素受体(GnRHR)、促卵泡激素β(FSHβ)、黄体生成素β(LHβ),卵巢促卵泡激素受体(FSHR)、黄体生成素受体(LHR)、雌激素受体β(ERβ)]mRNA相对表达量。
表2 实时荧光定量PCR引物序列

Table 2 Real-time quantitative PCR primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
β-肌动蛋白β-actin F:ACGTTGACATCCGTAAAGAC
R:GAAGGTGGACAGTGAGGC
200
下丘脑Hypothalamus
促性腺激素释放激素1
GnRH1
F:CTGTTGTTCTGTTGACTGTGTG
R:CTCCTTGCCCATCTCTTG
125
垂体Pituitary
促性腺激素释放激素受体
GnRHR
F:GCTCAGCCATCAACAACA
R:GCAGTAGAGAGTAGGAAAAGG
112
促卵泡激素β
FSHβ
F:ATCCTACTCTGGTGCTTGA
R:ACTTTCTGGGTGTTTGGT
182
黄体生成素β
LHβ
F:GCTGCTGAGCCCAAGTGT
R:GCTGGTGGTGAAGGTGATG
124
卵巢Ovary
促卵泡激素受体
FSHR
F:CAAGCCCAGATTTACAGG
R:TTAAGAGGGACAAGCACG
116
黄体生成素受体
LHR
F:TGTAACACAGGCATCCGA
R:CCATTTCCATACAGTTTTAGTG
164
雌激素受体β
ERβ
F:TCTCCTTTAGCGACCCAT
R:GGCACAACTGCTCCCACT
144

1.4.7 肠道发育指标和肠道菌群结构

前期结果表明,LG组综合效果最佳,因此后续肠道发育及菌群相关指标仅在CK组和LG组中进行检测。用于肠道形态学分析的样本与血清和卵巢指标检测来源一致,每组随机选取7只发情期雌性大鼠,再从中随机选取5只用于肠道菌群16S rRNA测序分析。取小肠中段组织,经10%中性福尔马林固定、常规石蜡包埋、切片及HE染色处理,在光学显微镜下测量绒毛高度和隐窝深度,并计算绒隐比(V/C),用于评价小肠形态发育。
用于肠道菌群分析的小肠内容物样品于-80 ℃保存。肠道微生物群落结构通过16S rRNA基因高通量测序进行分析。首先提取样品的基因组DNA,并采用1%琼脂糖凝胶电泳检测DNA质量。随后以细菌16S rRNA基因V3~V4可变区为目标区域,采用通用引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')进行PCR扩增。PCR反应采用TransGen AP221-02(TransStart FastPfu DNA Polymerase)试剂体系,在ABI GeneAmp® 9700型PCR仪上完成。PCR产物经纯化后,利用QuantiFluorTM-ST蓝色荧光定量系统(Promega,美国)进行定量检测,并按等量原则混合样品构建PE扩增子文库。文库构建完成后,在上海美吉生物医药科技有限公司采用Illumina MiSeq平台进行高通量测序。测序获得的原始数据在美吉生物云平台(https://cloud.majorbio.com)进行生物信息学分析,原始数据已上传至Genome Sequence Archive(GSA)数据库,登录号为CRA039865。

1.5 数据统计分析

试验数据先用Excel 2021整理,采用SPSS 20.0软件进行统计分析。4组间比较的指标先进行正态性和方差齐性检验。若满足条件,采用单因素方差分析(one-way ANOVA),组间多重比较用LSD法;若方差不齐,则用Welch检验,多重比较用Tamhane T2法。2组间比较的指标采用独立样本t检验(符合正态分布且方差齐)或Mann-Whitney U秩和检验(方差不齐)。结果以“平均值±标准误”表示,P<0.05为差异显著。

2 结果与分析

2.1 苜蓿黄酮对青春期雌性大鼠生长性能和初情启动的影响

表3可见,与CK组相比,LG组的平均日采食量和平均日增重显著提高(P<0.05),LG组和MG组的阴门开启日龄分别显著提前了5.72和4.86 d(P<0.05),HG组的阴门开启日龄显著推迟了5.43 d(P<0.05);LG组的阴门开启体重显著降低(P<0.05),HG组的阴门开启体重显著提高(P<0.05)。
表3 苜蓿黄酮对青春期雌性大鼠生长性能和初情启动的影响

Table 3 Effects of alfalfa flavonoid on growth performance and puberty onset of pubertal female rats

项目
Items
CK组
CK group
LG组
LG group
MG组
MG group
HG组
HG group
P
P-value
平均日采食量ADFI/(g/d) 15.48±0.22b 19.59±0.36a 21.54±0.62a 15.89±1.74b 0.011
平均日增重ADG/(g/d) 4.40±0.10b 5.00±0.10a 4.49±0.11b 4.47±0.15b 0.004
阴门开启日龄Age of vaginal opening/d 32.43±0.37b 26.71±0.52c 27.57±0.30c 37.86±0.40a <0.001
阴门开启体重Body weight of vaginal opening/g 108.34±1.49b 97.34±1.62c 105.20±2.08b 165.69±1.85a <0.001

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 苜蓿黄酮对青春期雌性大鼠血清激素水平的影响

表4可见,LG组血清LH水平显著高于其他各组(P<0.05),分别较CK组、MG组和HG组提高了17.42%、10.89%和12.62%。各组之间其他血清激素水平差异不显著(P>0.05)。这说明低剂量苜蓿黄酮对HPO轴具有选择性调节作用,主要表现为促进垂体LH分泌。
表4 苜蓿黄酮对青春期雌性大鼠血清激素水平的影响

Table 4 Effects of alfalfa flavone on serum hormone levels of pubertal female rats

项目
Items
CK组
CK group
LG组
LG group
MG组
MG group
HG组
HG group
P
P-value
促性腺激素释放激素GnRH/(mIU/mL) 78.50±3.51 78.64±4.62 78.74±4.03 79.24±3.61 0.981
促卵泡素FSH/(IU/L) 11.72±0.43 11.78±0.59 11.68±0.60 11.75±0.63 0.991
促黄体素LH/(mIU/mL) 43.46±1.97c 51.03±0.71a 46.02±2.08b 45.31±1.19bc 0.001
雌二醇E2/(pmol/L) 51.83±4.45 52.41±3.98 52.98±4.98 52.88±5.18 0.978
孕酮PROG/(mg/mL) 15.72±1.32 15.65±0.61 15.81±1.60 15.41±0.56 0.831
抗缪勒管激素AMH/(pg/mL) 3 552.14±129.43 3 597.00±132.02 3 466.00±172.71 3 458.78±118.51 0.236

2.3 苜蓿黄酮对青春期雌性大鼠卵巢和卵泡发育指标的影响

图1可见,各组卵巢均可见不同发育阶段的卵泡,包括初级卵泡、次级卵泡、成熟卵泡、闭锁卵泡及黄体结构,但各组卵巢形态存在明显差异。CK组卵巢结构较为完整,可见数量适中的发育卵泡;LG组卵巢组织最为饱满,成熟卵泡和发育良好的次级卵泡数量较多,闭锁卵泡数量较少,卵泡壁结构清晰;MG组卵泡发育中等;HG组闭锁卵泡数量增多,卵巢结构紊乱。这表明低剂量苜蓿黄酮有利于卵泡发育,而高剂量苜蓿黄酮可能对卵巢发育造成抑制作用。
图1 青春期雌性大鼠卵巢HE染色切片

Fig.1 HE stained sections of ovarian of pubertal female rats (40×)

表5可见,与CK组相比,LG组卵巢指数显著提高(P<0.05),LG组的成熟卵泡和黄体数量分别显著提高了41.52%和38.42%(P<0.05)。各组之间初级、次级和闭锁卵泡数量无显著差异(P>0.05)。
表5 苜蓿黄酮对青春期雌性大鼠卵巢和卵泡发育指标的影响

Table 5 Effects of alfalfa flavonoids on ovarian and follicle development indexes of pubertal female rats

项目
Items
CK组
CK group
LG组
LG group
MG组
MG group
HG组
HG group
P
P-value
卵巢指数Ovarian index 0.05±0.00b 0.06±0.00a 0.05±0.00ab 0.05±0.00b 0.009
初级卵泡Primary follicle 14.14±1.48 11.43±1.88 15.30±1.98 13.54±2.74 0.451
次级卵泡Secondary follicle 22.85±1.80 18.84±1.23 21.47±2.97 19.83±1.43 0.516
成熟卵泡Mature follicle 20.69±2.29b 29.28±2.63a 17.92±2.04b 23.31±1.58ab <0.001
黄体Corpus luteum 18.53±2.18b 25.65±1.64a 20.19±1.99ab 17.43±2.31b 0.046
闭锁卵泡Atretic follicle 21.33±1.77 19.88±2.37 21.10±2.18 25.14±4.16 0.986

2.4 苜蓿黄酮对妊娠期雌性大鼠胚胎着床的影响

图2表6可见,与CK组相比,LG组和MG组的胚胎着床数有所增加,而HG组略有下降,但各组之间无显著差异(P>0.05)。
图2 雌性大鼠妊娠第8天胚胎着床情况

Fig.2 Embryo implantation status on day 8 of pregnancy of female rats

表6 苜蓿黄酮对妊娠期雌性大鼠胚胎着床数的影响

Table 6 Effects of alfalfa flavonoids on number of embryo implantations of pubertal female rats

项目
Item
CK组
CK group
LG组
LG group
MG组
MG group
HG组
HG group
P
P-value
胚胎着床数Number of embryo implantations 14±1 15±1 15±1 13±1 0.062

2.5 苜蓿黄酮对青春期雌性大鼠血清炎性指标的影响

表7可见,与CK组相比,LG组的血清IL-10水平显著提高了10.70%(P<0.05);MG组和HG组的血清IL-10水平有所升高,但与CK组和LG组差异均不显著(P>0.05)。各组之间血清TNF-α水平无显著差异(P>0.05)。这提示低剂量苜蓿黄酮具有更明显的抗炎调节作用,可增强机体的抗炎信号。
表7 苜蓿黄酮对青春期雌性大鼠血清炎性指标的影响

Table 7 Effects of alfalfa flavonoids on serum inflammatory indexes of pubertal female rats

项目
Items
CK组
CK group
LG组
LG group
MG组
MG group
HG组
HG group
P
P-value
肿瘤坏死因子-α TNF-α 294.46±3.38 295.57±8.44 292.62±11.65 298.43±10.45 0.976
白细胞介素-10 IL-10 59.93±1.09b 66.34±1.48a 63.19±2.55ab 63.21±0.68ab 0.016

2.6 苜蓿黄酮对青春期雌性大鼠HPO轴相关基因表达的影响

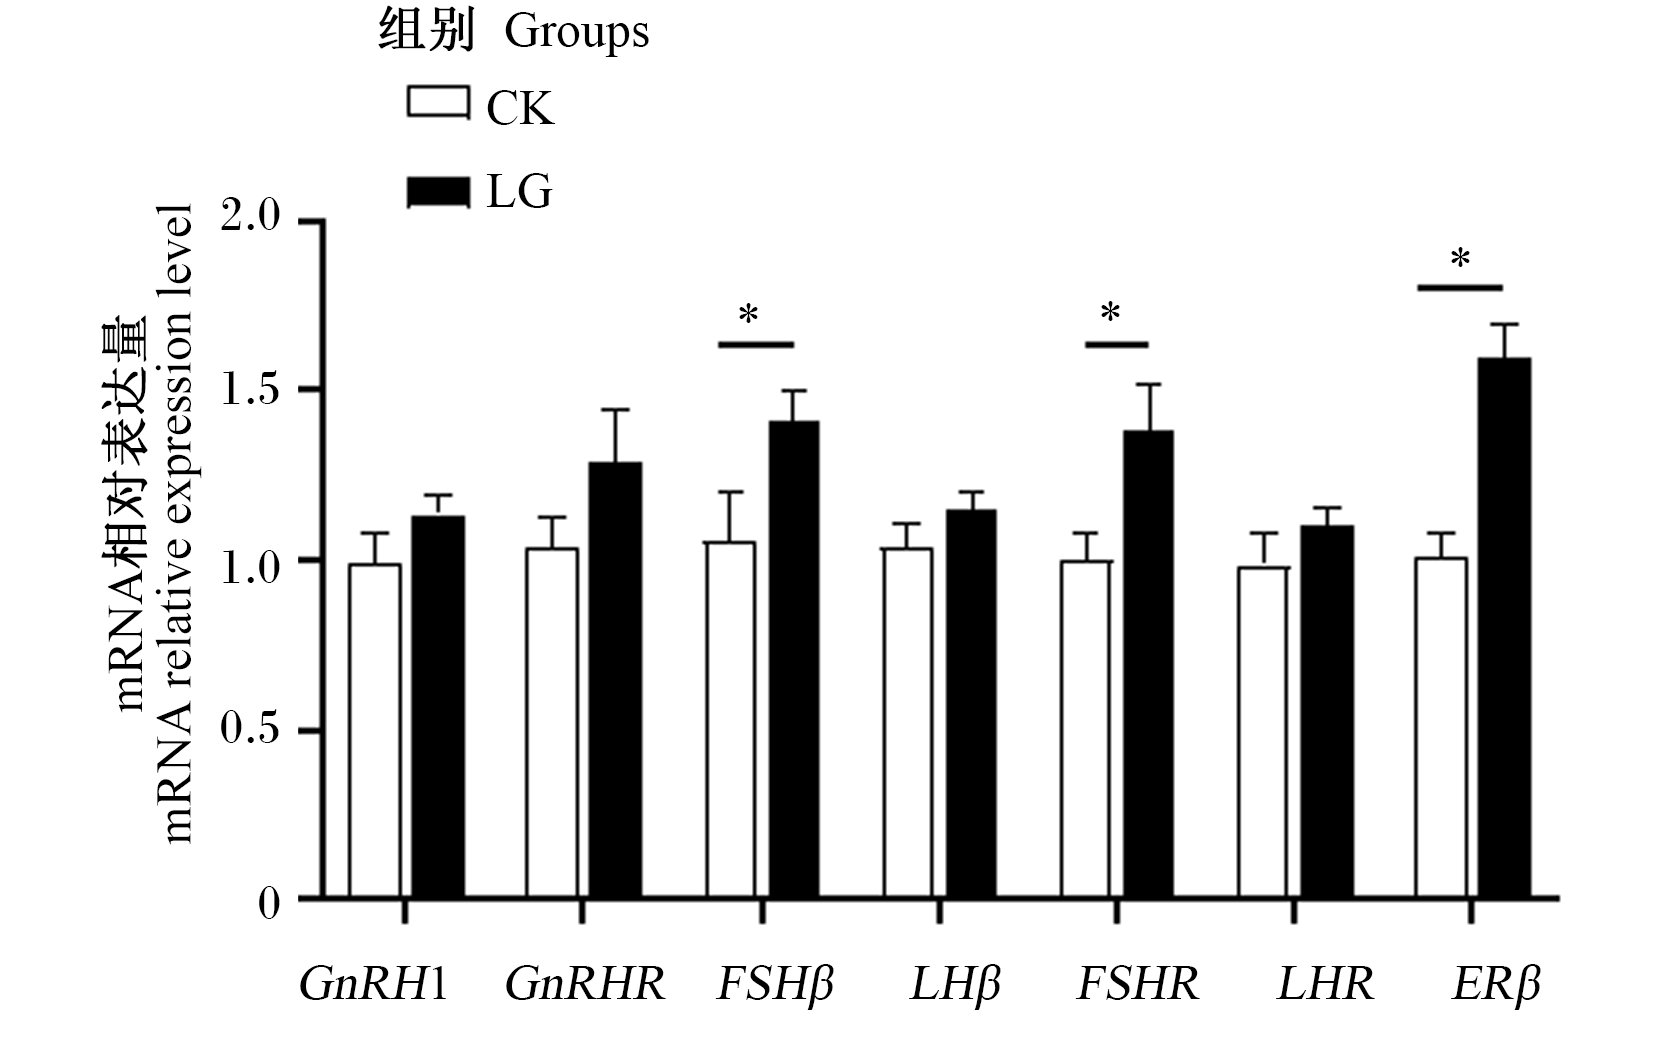
图3可见,与CK组相比,LG组的GnRH1、GnRHRLHβLHR的mRNA相对表达量均有所升高,但差异不显著(P>0.05);LG组的FSHβFSHRERβ的mRNA相对表达量显著升高(P<0.05)。
图3 苜蓿黄酮对青春期雌性大鼠HPO轴相关基因表达的影响

GnRH1:促性腺激素释放激素1 gonadotrophin releasing hormone 1;GnRHR:促性腺激素释放激素受体 gonadotrophin releasing hormone receptor;FSHβ:促卵泡激素β follicle stimulating hormone β;LHβ:黄体生成素β luteinizing hormone β;FSHR:促卵泡激素受体 follicle stimulating hormone receptor;LHR:黄体生成素受体 luteinizing hormone receptor;ERβ:雌激素受体β estrogen receptor β。*表示差异显著 * mean significant difference (P<0.05)。

CK:对照组 control group;LG:低剂量组low-dose group。下图同 the same as below。

Fig.3 Effects of alfalfa flavonoids on expression of gene related to HPO axis of pubertal female rats

2.7 苜蓿黄酮对青春期雌性大鼠肠道发育指标和肠道菌群结构的影响

2.7.1 肠道发育指标

图4表8可见,与CK组相比,LG组小肠绒毛在形态学上呈现出结构更完整、排列更紧密的趋势;CK组与LG组的小肠绒毛高度、隐窝深度和绒隐比差异均不显著(P>0.05)。
图4 青春期雌性大鼠小肠形态结构

Fig.4 Morphological structure of small intestine of pubertal female rats

表8 苜蓿黄酮对青春期雌性大鼠肠道发育指标的影响

Table 8 Effects of alfalfa flavonoids on intestinal development indexes of pubertal female rats

项目Items CK组CK group LG组LG group PP-value
绒毛高度Villus height/μm 341.46±19.12 349.89±11.35 0.710
隐窝深度Crypt depth/μm 187.48±8.45 184.76±5.16 0.788
绒隐比V/C 1.82±0.05 1.89±0.03 0.186

2.7.2 肠道菌群结构

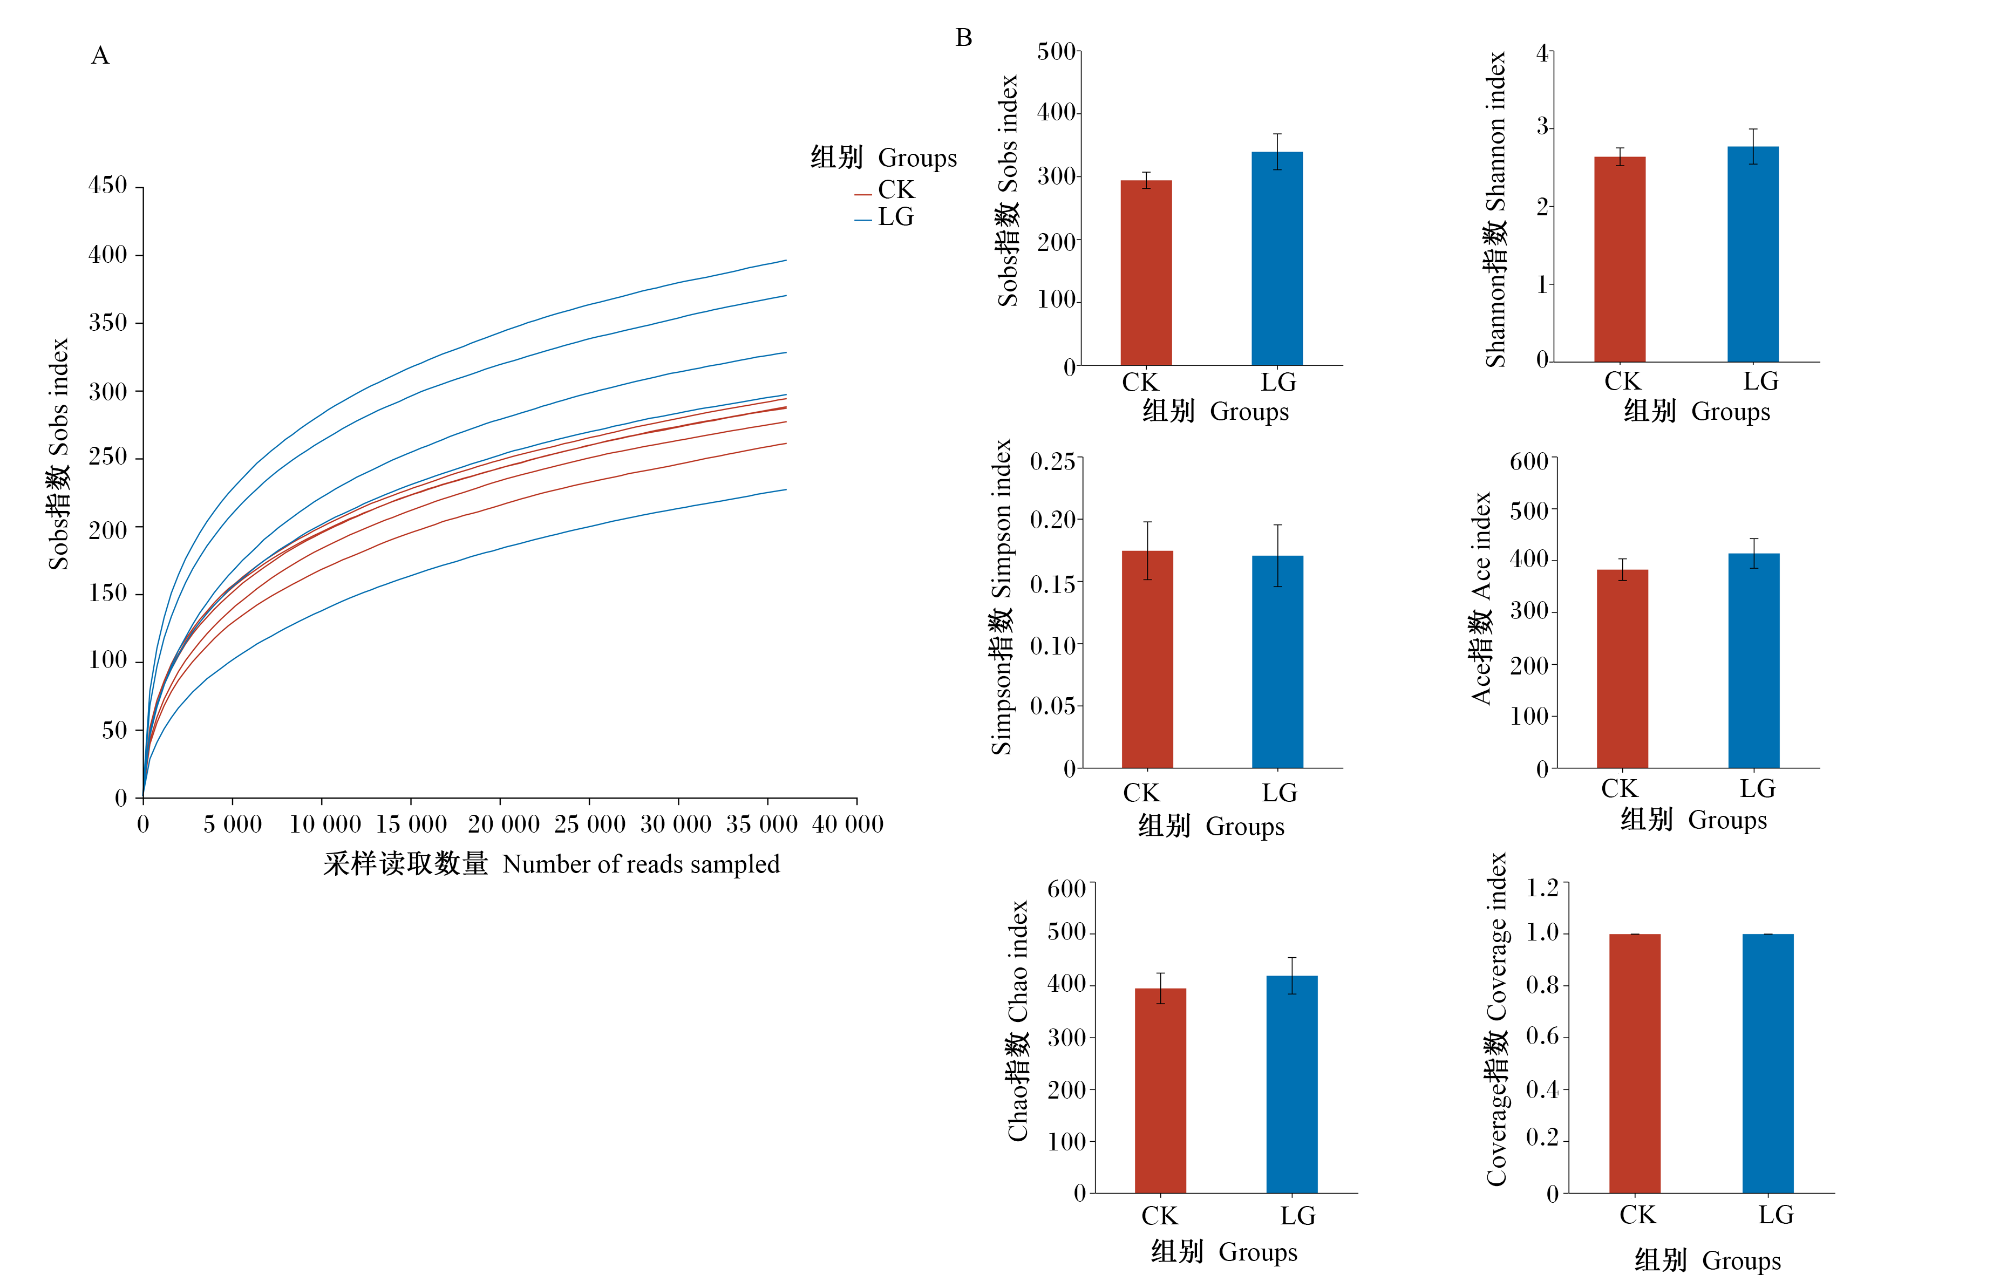
图5可见,CK组与LG组样本的稀释曲线均趋于平缓,表明测序深度基本覆盖了肠道菌群,且整体上LG组曲线略高于CK组,提示其菌群多样性有升高趋势。Alpha多样性分析结果显示,LG组的Sobs、Shannon、Ace和Chao指数均高于CK组,但差异均未达到显著水平(P>0.05)。
图5 样品稀释曲线(A)和Alpha多样性分析(B)

Fig.5 Sample dilution curves (A) and Alpha diversity analysis (B)

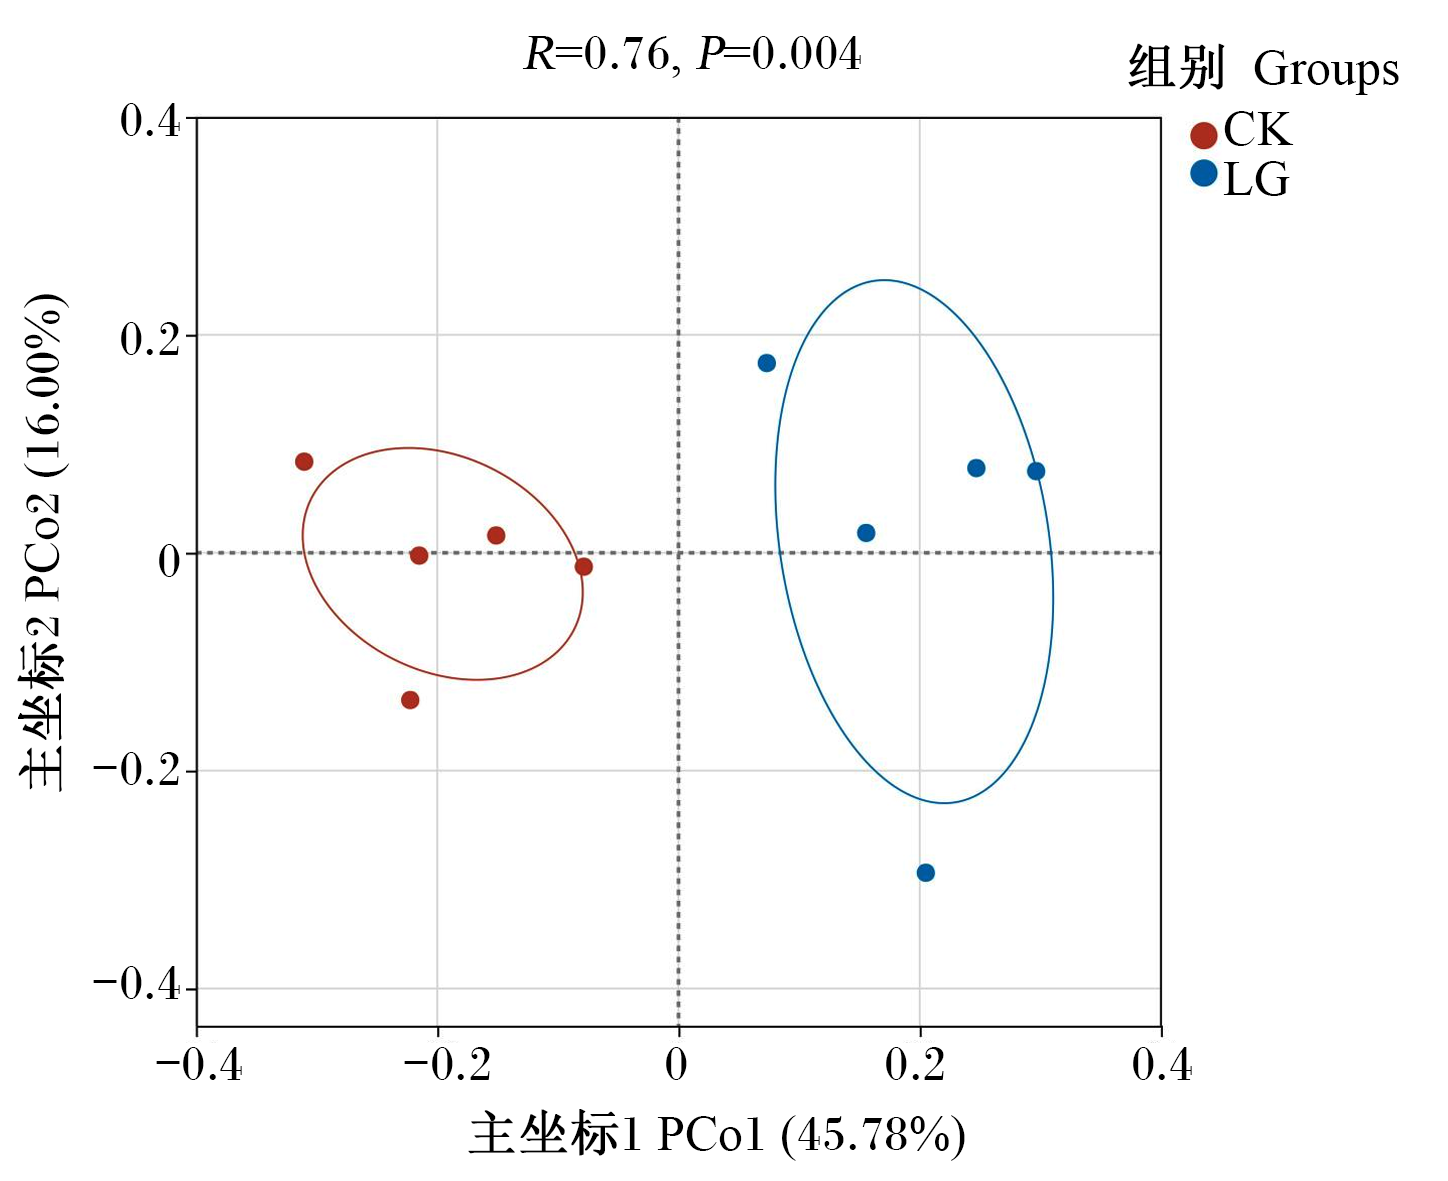
图6可见,基于操作分类单元(operational taxonomic units,OTU)水平的Beta多样性主坐标分析(principal co-ordinates analysis,PCoA)显示,CK组与LG组样本明显分离,说明LG组与CK组之间肠道菌群组成存在较大差异。
图6 Beta多样性PCoA分析

Fig.6 Beta diversity PCoA analysis

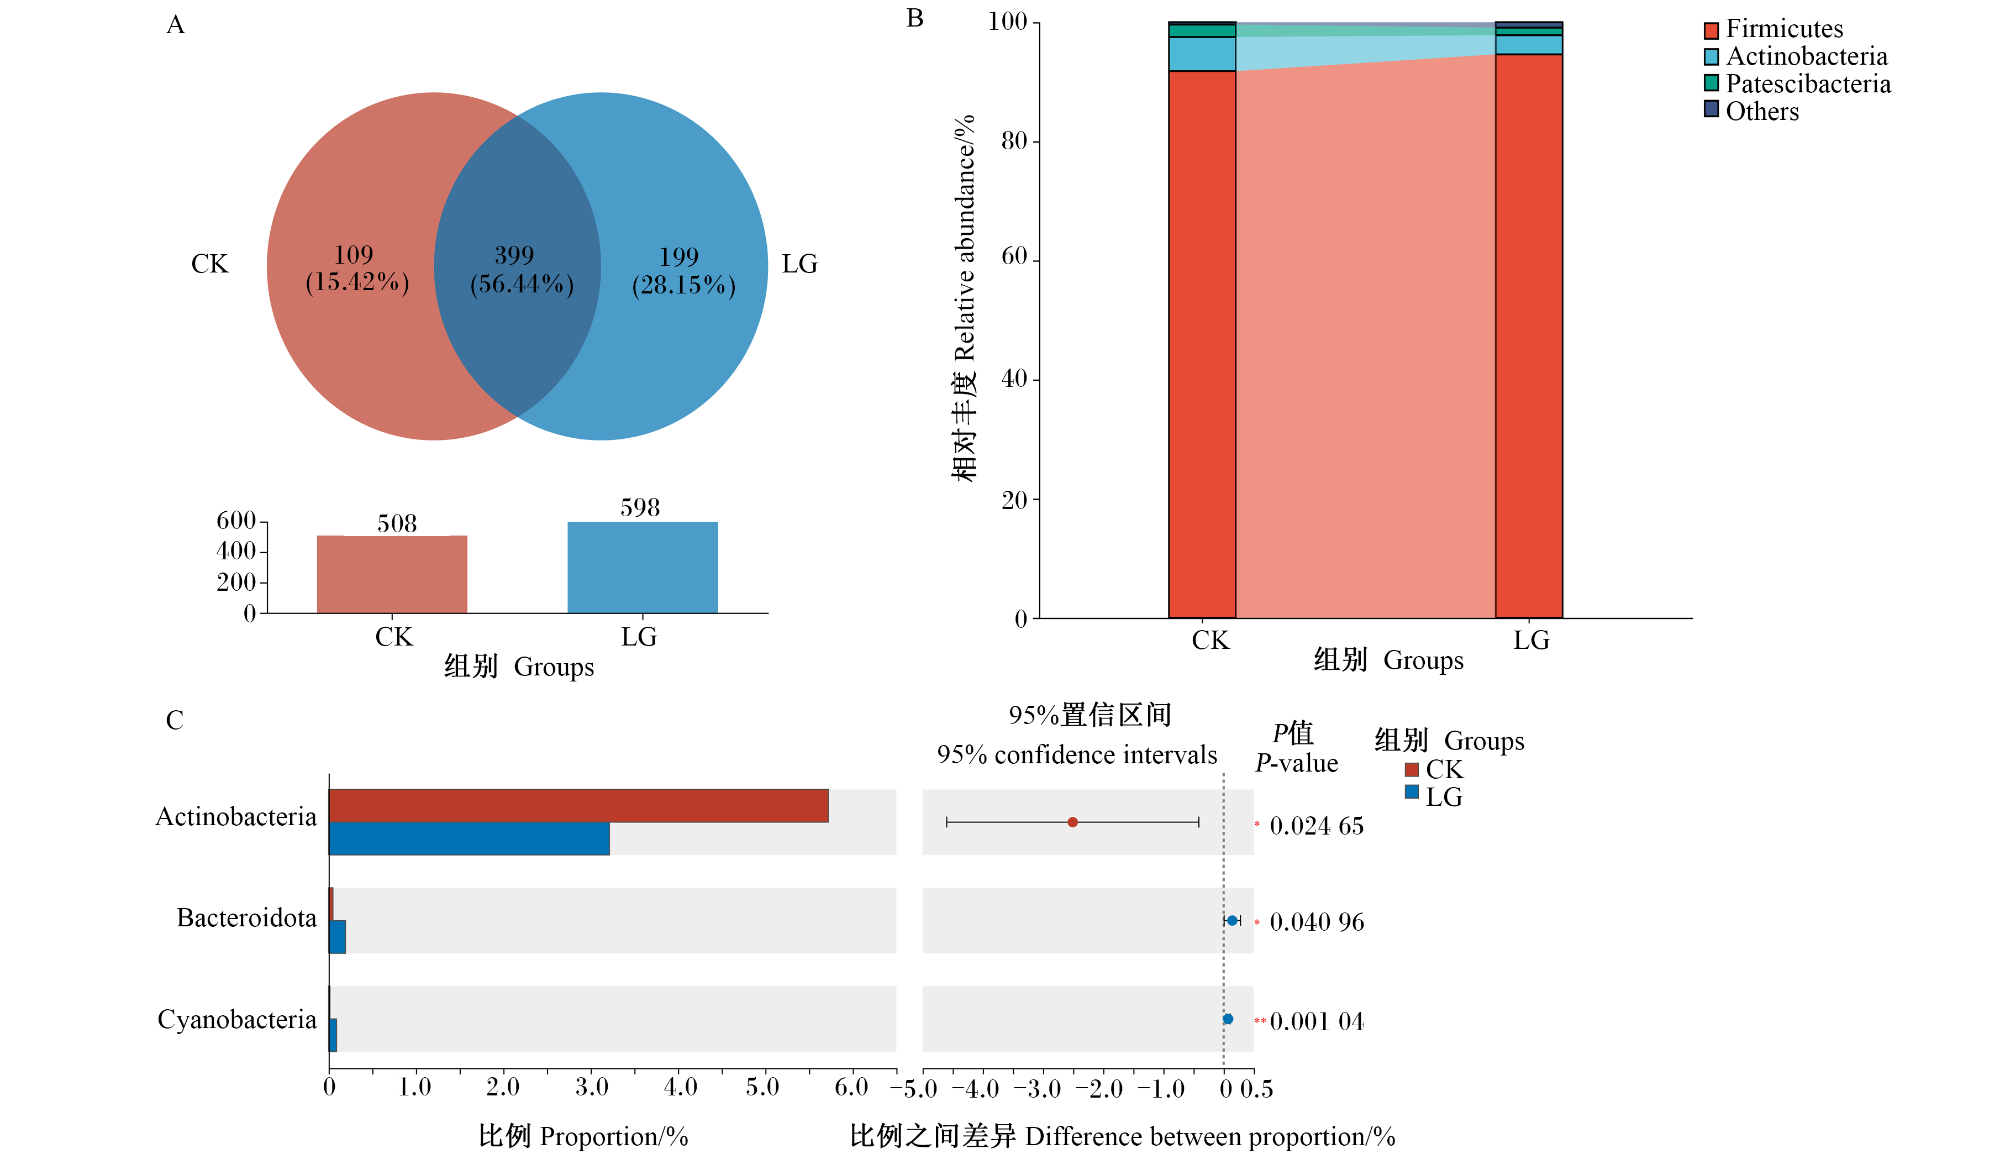
以97%序列相似性为阈值对OTU进行Venn分析,用于比较CK组与LG组之间的共有和特有菌群。由图7可见,CK组和LG组分别检测到508和598个OTU,其中CK组特有109个OTU,LG组特有199个OTU,CK组和LG组共享399个OTU,说明低剂量苜蓿黄酮可提高肠道菌群的丰富度。在门水平上,CK组和LG组的肠道菌群均以厚壁菌门(Firmicutes)、放线菌门(Actinobacteriota)和髌骨细菌门(Patescibacteria)为优势菌群。与CK组相比,LG组的肠道放线菌门相对丰度显著降低(P<0.05),肠道拟杆菌门(Bacteroidota)和蓝藻菌门(Cyanobacteria)相对丰度显著升高(P<0.05),提示低剂量苜蓿黄酮在增加青春期雌性大鼠菌群丰富度的同时,重塑了肠道菌群在门水平上的结构组成。
图7 肠道菌群OTU丰富度及门水平组成和差异分析

Firmicutes:厚壁菌门;Actinobacteria:放线菌门;Patescibacteria:髌骨细菌门;Bacteroidetes:拟杆菌门;Cyanobacteria:蓝细菌门;Others:其他。

A:韦恩图 Venn diagram;B:门水平下肠道菌群组成 gut microbiota composition at phylum level;C:门水平下肠道菌群相对丰度差异 differences in relative abundance of gut microbiota at phylum level。

Fig.7 OTU richness and composition and difference analysis at phylum level of gut microbiota

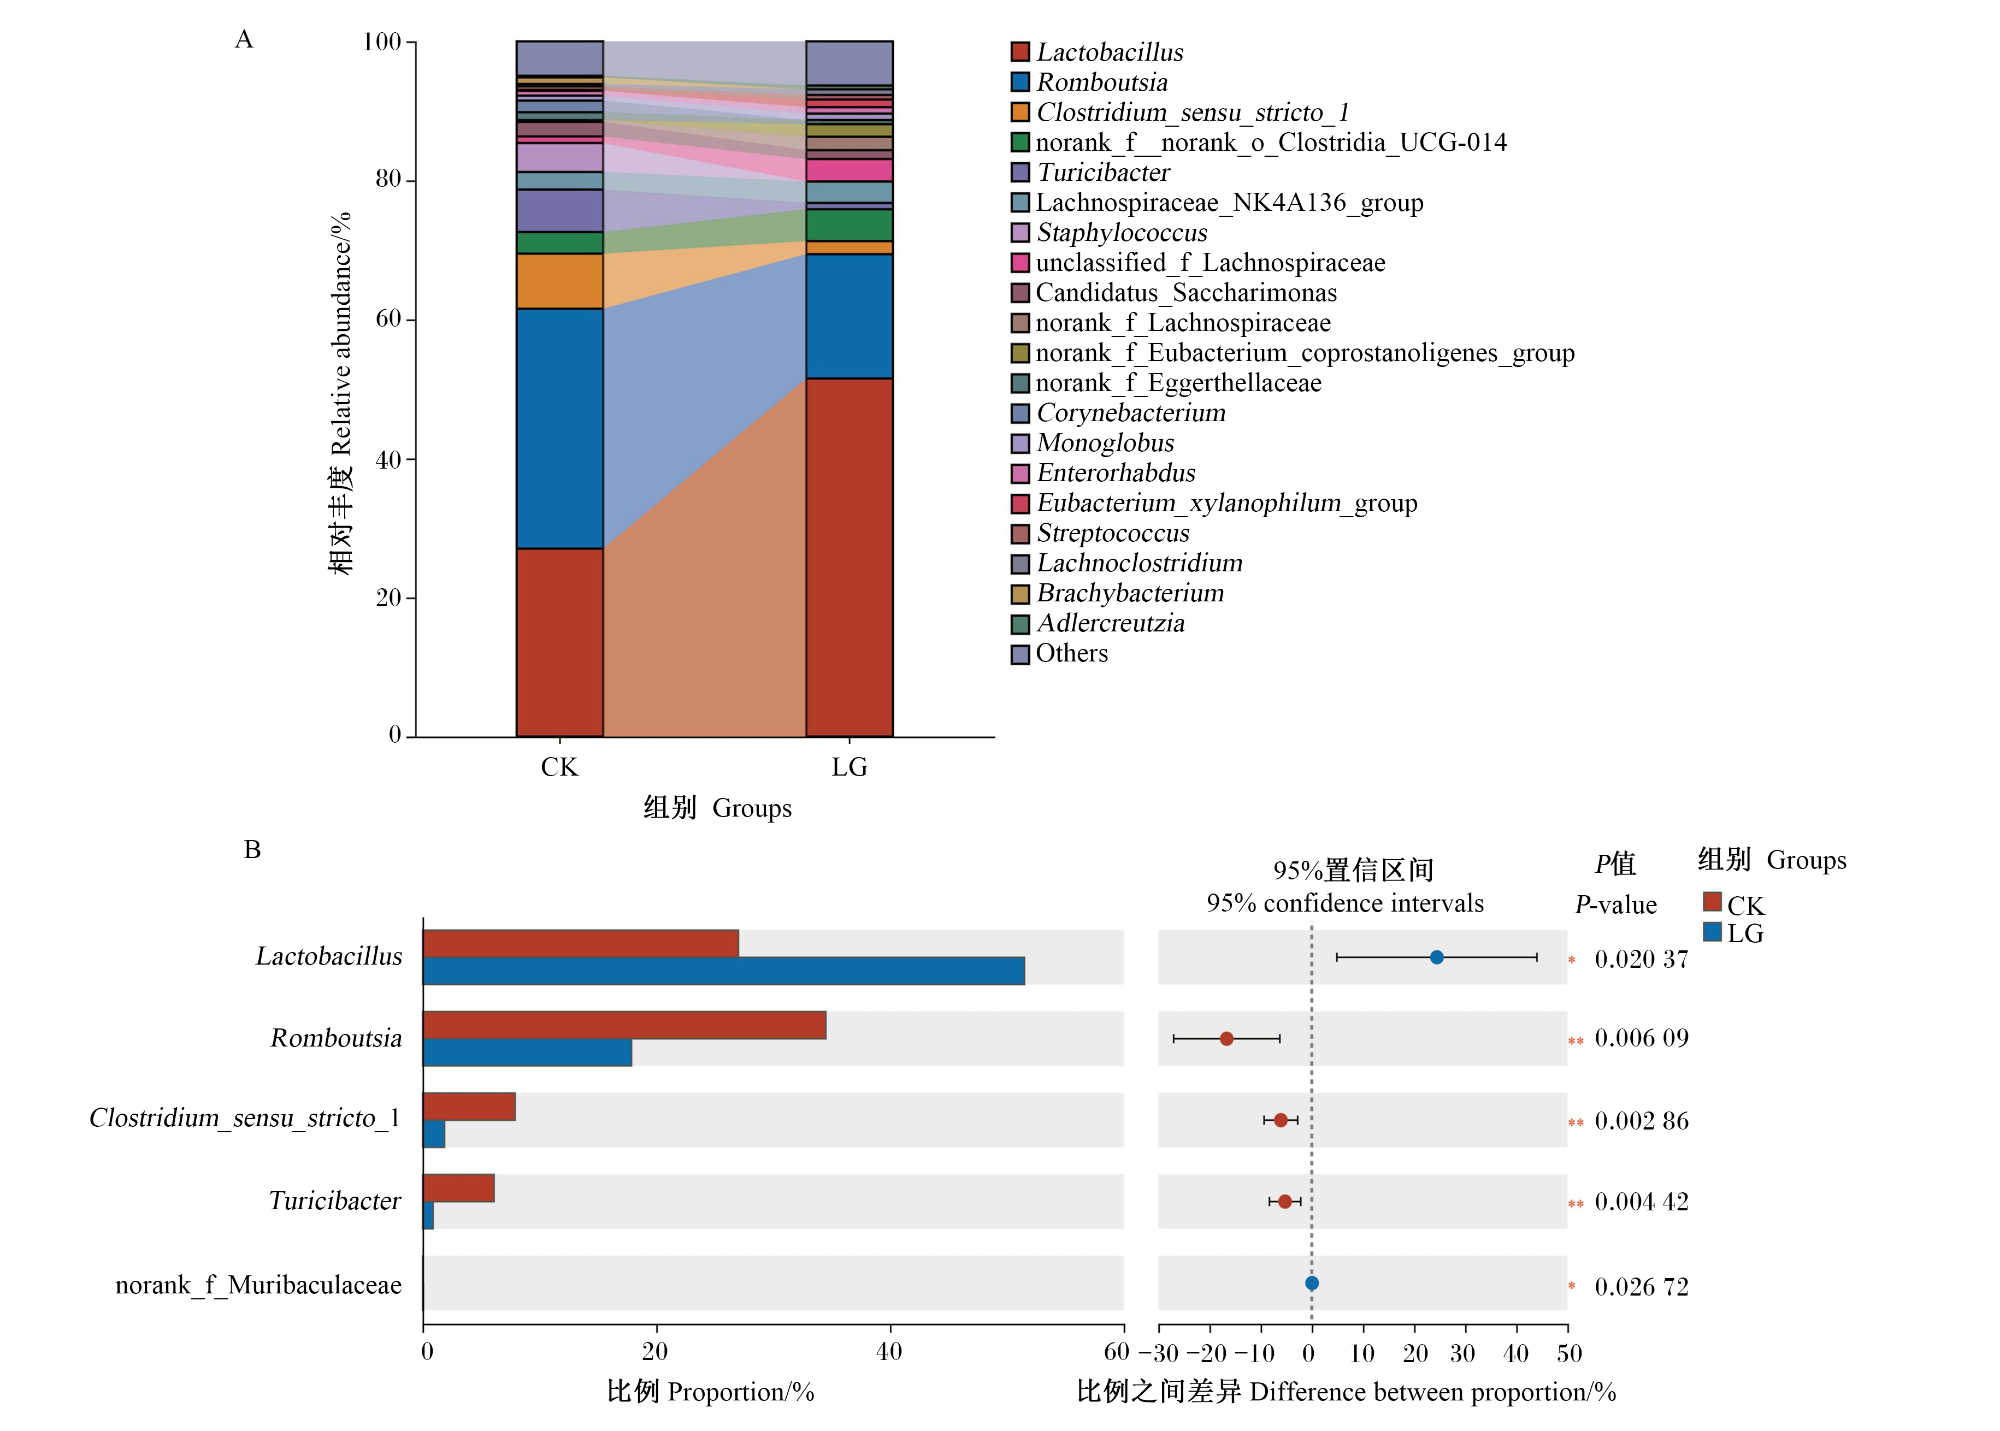
图8可见,在属水平上,CK和LG组的肠道菌群均以乳杆菌属(Lactobacillus)、罗姆布茨菌属(Romboutsia)、狭义梭菌属1(Clostridium_sensu_stricto_1)和苏黎世杆菌属(Turicibacter)等为主要优势菌群。与CK组相比,LG组的肠道Lactobacillus相对丰度显著升高(P<0.05),肠道RomboutsiaClostridium_sensu_stricto_1和Turicibacter相对丰度显著降低(P<0.05)。提示低剂量苜蓿黄酮可改变青春期雌性大鼠肠道菌群的组成。
图8 属水平下肠道菌群组成和差异分析

A:属水平下肠道菌群组成 gut microbiota composition at genus level;B:属水平下肠道菌群相对丰度差异 differences in relative abundance of gut microbiota at genus level。

仅注释主要菌属 Only annotated the main genera。Lactobacillus:乳杆菌属;Romboutsia:罗姆布茨菌属;Clostridium_sensu_stricto_1:狭义梭菌属1;Turicibacter:苏黎世杆菌属;Lachnospiraceae_NK4A136_group:毛螺菌科NK4A136群;Staphylococcus:葡萄球菌属;Corynebacterium:肠杆状菌属;Monoglobus:单球菌属;Enterorhabdus:肠棒菌属;Streptococcus:链球菌属;Lachnoclostridium:毛螺梭菌属;Brachybacterium:小短杆菌属;Adlercreutzia:阿德勒氏菌属。下图同 the same as below。

Fig.8 Composition and difference analysis of gut microbiota at genus level

2.8 属水平肠道菌群组成与主要指标的相关性分析

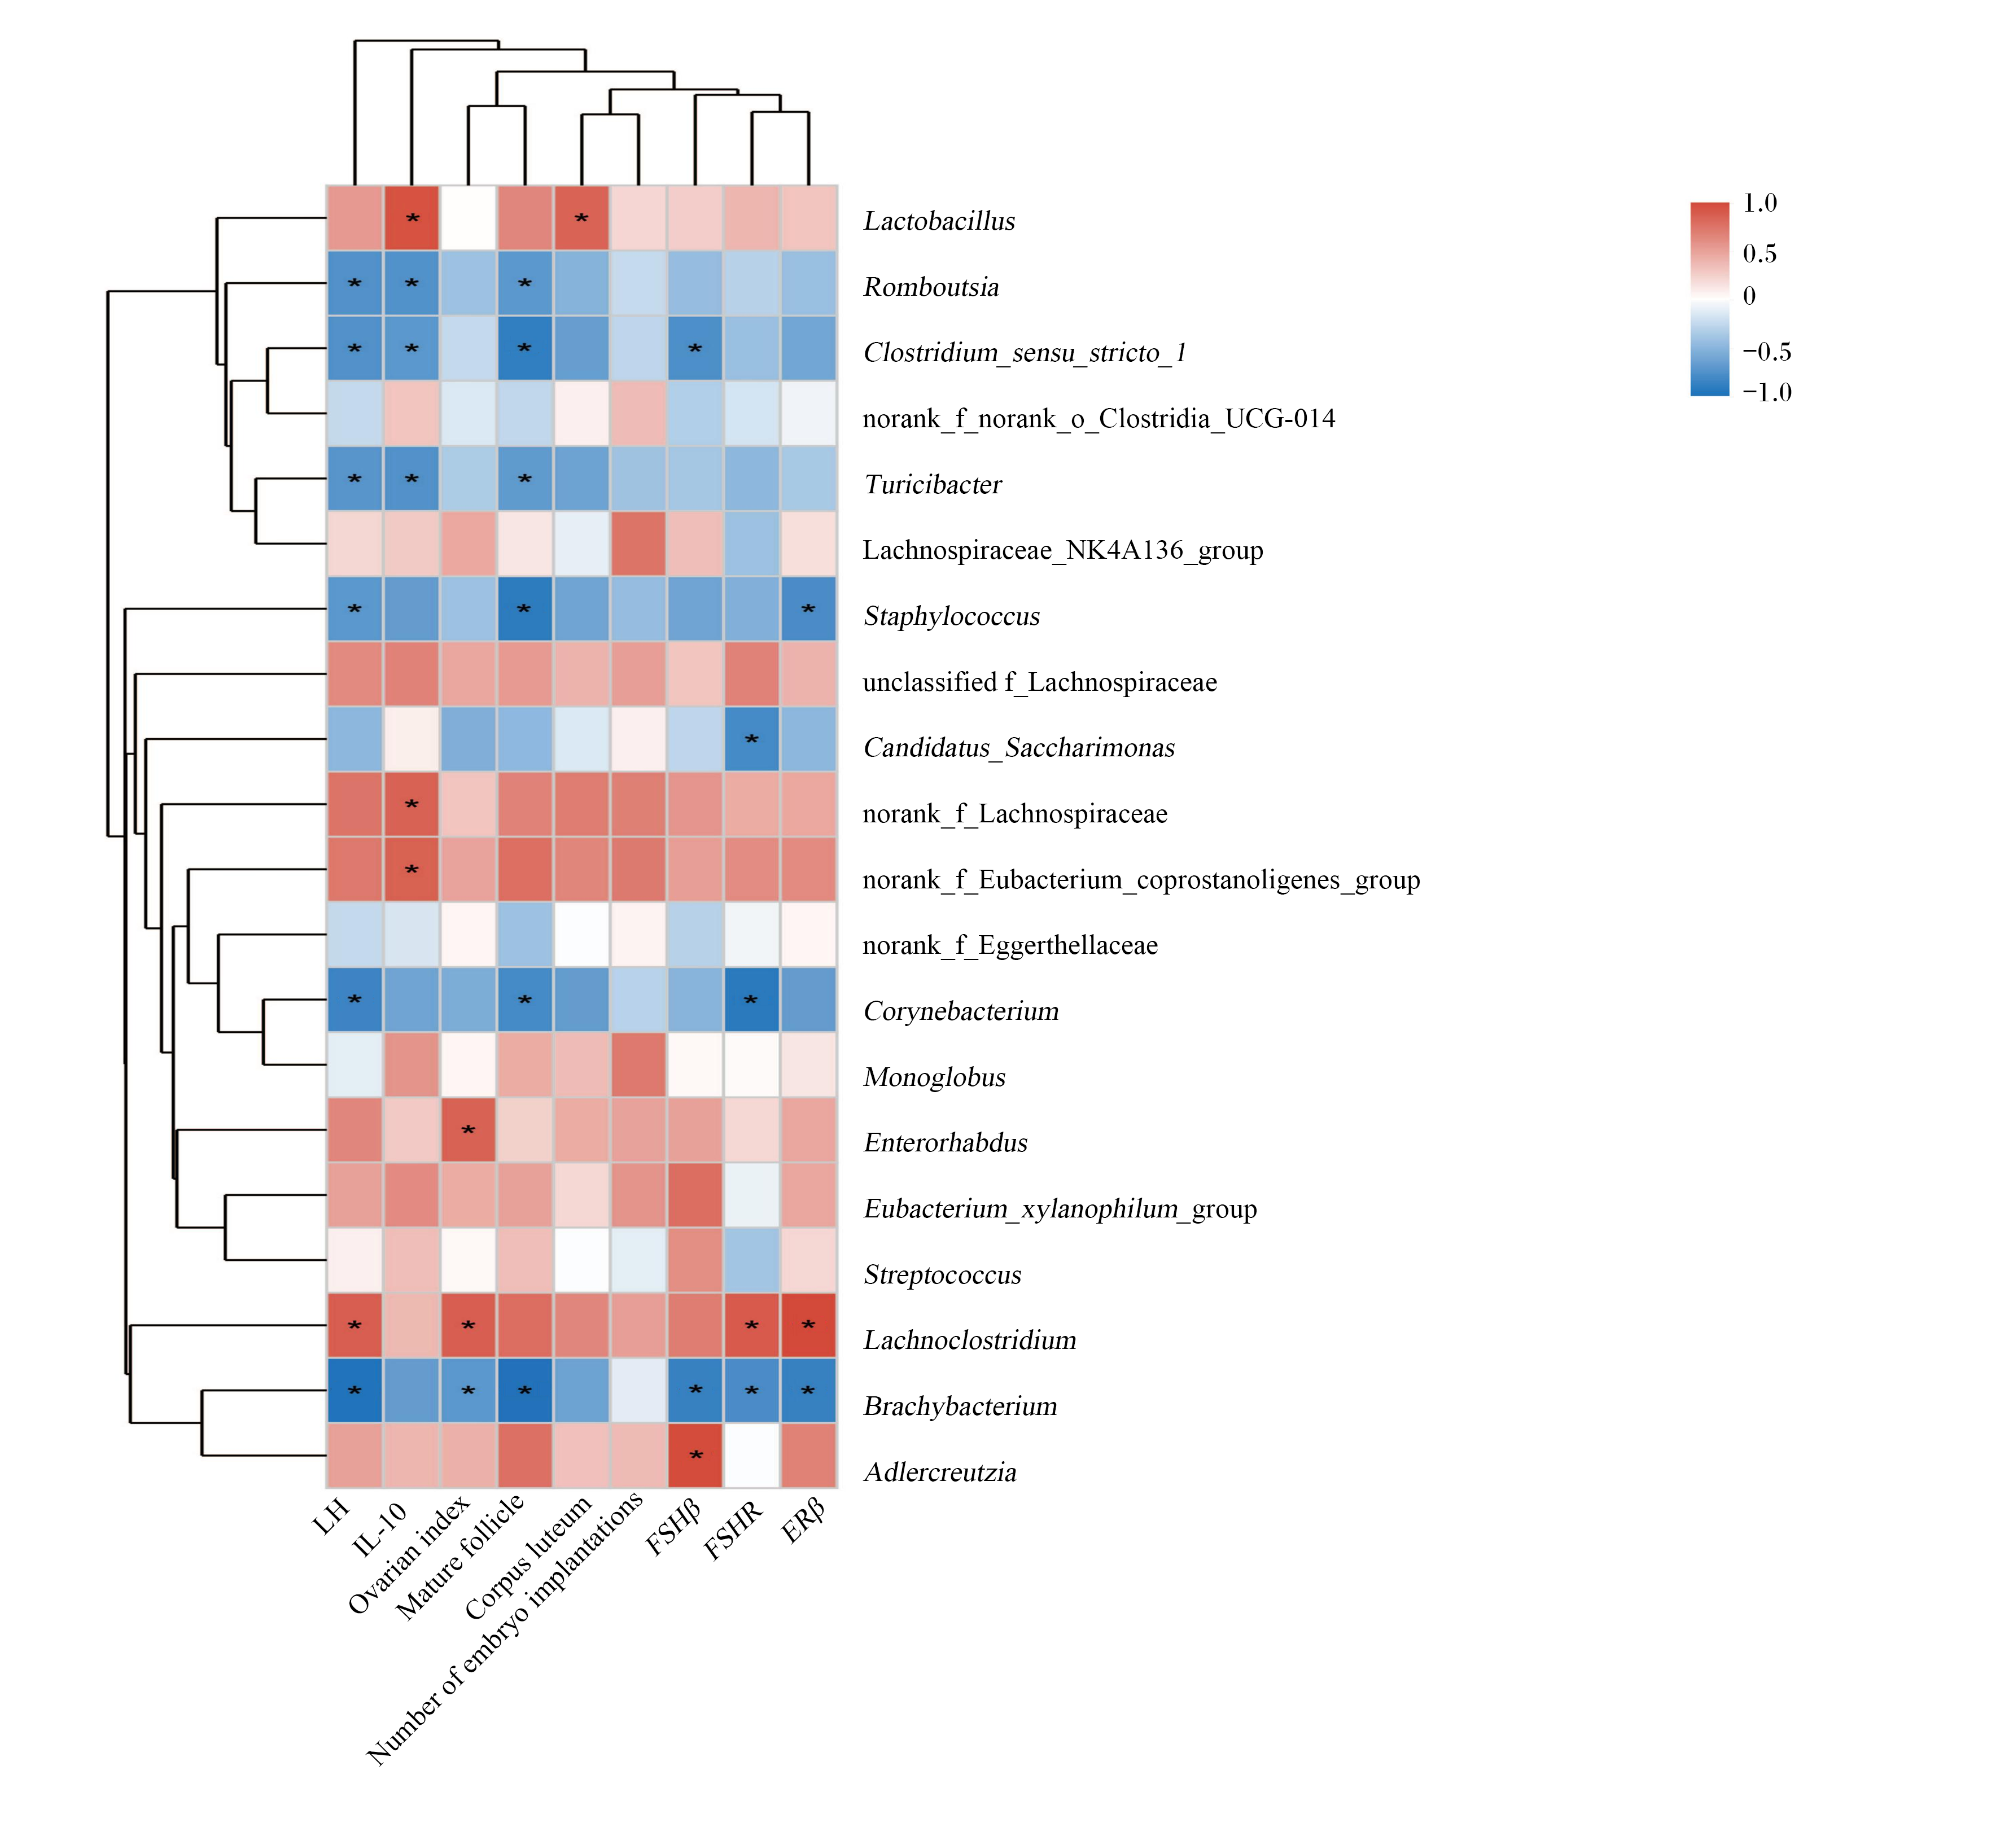
图9可见,进一步的Spearman相关性分析结果显示,肠道Lactobacillus相对丰度与血清IL-10水平和卵巢黄体数量呈显著正相关(P<0.05),而肠道RomboutsiaClostridium_sensu_stricto_1和Turicibacter相对丰度均与血清LH、IL-10水平及卵巢成熟卵泡数量呈显著负相关(P<0.05)。这表明青春期雌性大鼠肠道菌群组成与炎性状态及卵巢功能指标的变化密切相关。
图9 属水平肠道菌群组成与主要指标的相关性分析

LH:黄体生成素 luteinizing hormone;IL-10:白细胞介素-10 interleukin-10;Ovarian index:卵巢指数;Mature follicle:成熟卵泡;Corpus luteum:黄体;Number of embryo implantations:胚胎着床数;FSHβ:促卵泡激素β follicle stimulating hormone β;FSHR:促卵泡激素受体 follicle stimulating hormone receptor;ERβ:雌激素受体β estrogen receptor β。

*代表显著相关(P<0.05)。

Fig.9 Correlation analysis of composition of gut microbiota at genus level and main indexes

* represented significant correlation (P<0.05).

3 讨论

本研究发现,低剂量苜蓿黄酮可显著提高青春期雌性大鼠的平均日采食量和平均日增重,提示其在一定程度上改善了机体的生长状态。已有研究表明,植物黄酮类化合物可通过调节能量代谢和营养利用促进动物采食与生长[21-22],与本研究结果基本一致。在初情启动方面,低剂量和中剂量苜蓿黄酮均显著提前了雌性大鼠阴门开启日龄,且LG组阴门开启体重最低,HG组最高,提示苜蓿黄酮在一定剂量范围内可降低性成熟所需的体重阈值,呈现一定的剂量依赖性。阴门开启是雌性大鼠青春期到来的典型外部标志,其发生过程受HPO轴激活和雌激素水平变化的共同调控[23]。结合植物黄酮的类雌激素样作用推测,低剂量苜蓿黄酮可能通过适度调节HPO轴功能,在促进生长的同时提前性发育进程。
HPO轴是驱动初情启动和生殖器官发育的关键内分泌通路,其中GnRH及其下游的LH、FSH在性成熟过程中起核心调控作用[24-25]。已有研究表明,苜蓿黄酮等植物黄酮具有类雌激素样效应,可通过调节内分泌信号影响生殖功能[26-27]。本研究发现,在所设定的剂量范围内,苜蓿黄酮对HPO轴的调控具有一定选择性,主要表现为低剂量条件下血清LH水平升高,而E2、FSH和PROG等激素水平变化相对有限。结合LG组初情启动提前、成熟卵泡和黄体数量增加以及胚胎着床数升高等表型结果,推测低剂量苜蓿黄酮可能通过适度增强LH信号,促进青春期相关内分泌轴的启动,从而有利于性发育进程的推进;而中、高剂量并未表现出相同的促进效应,提示其作用具有一定的剂量敏感性。在此基础上,基因转录水平的结果进一步支持了低剂量苜蓿黄酮对促性腺激素信号的“局部放大效应”。与CK组相比,LG组垂体FSHβ及卵巢FSHRERβ的mRNA相对表达量显著上调,提示苜蓿黄酮可能通过增强卵巢局部对FSH和雌激素样信号的应答能力,提高卵巢对初情启动信号的敏感性。已有研究表明,FSHβFSHR在卵泡生长及卵巢功能维持中具有关键作用,其基因突变或功能异常可导致卵巢功能受损甚至不育[28-29]。本研究中FSHβFSHR表达的同步上调,结合ERβ表达上调而血清E2水平未明显升高的结果,提示低剂量苜蓿黄酮可能通过强化卵巢内局部信号转导,而非依赖血清雌激素的大幅升高来促进卵泡成熟。此外,炎性状态被认为是影响生殖内环境稳态的重要因素。与CK组相比,苜蓿黄酮干预后各剂量组雌性大鼠血清IL-10水平均呈上升趋势,其中LG组升幅最明显。IL-10作为典型抗炎细胞因子,可抑制促炎反应并维持机体免疫稳态。因此,低剂量苜蓿黄酮在增强LH-FSH-ERβ生殖轴信号的同时,通过改善机体抗炎状态,为青春期性发育和生殖功能的发挥提供了更加稳定、低炎性的内环境支持。
卵巢和卵泡发育状况是评价雌性动物生殖潜力的重要形态学指标,其中成熟卵泡和黄体数量的变化尤其能反映排卵水平及早期妊娠支持能力[30-31]。已有研究表明,苜蓿黄酮及其他中草药黄酮类化合物可通过调节卵巢内甾体合成相关通路,促进卵泡发育和性成熟进程[28,32]。本研究中,低剂量苜蓿黄酮提高了成熟卵泡和黄体数量,而初级、次级及闭锁卵泡数量变化不明显;相反,高剂量苜蓿黄酮则伴随闭锁卵泡数量升高。该结果提示,苜蓿黄酮在适宜剂量范围内更有利于卵泡终末成熟和排卵相关过程的推进。结合前述血清激素水平结果可以进一步理解这一现象。LH是触发排卵和促进黄体形成的关键信号,其适度增强有助于卵泡成熟和排卵事件的发生。因此,LG组成熟卵泡和黄体数量升高,可能与LH信号增强所介导的卵泡终末分化和排卵过程密切相关。此外,LG组初情启动提前及胚胎着床数增加等结果,与卵巢中成熟卵泡和黄体数量升高表现出一致趋势,进一步支持了苜蓿黄酮在适宜剂量范围内通过调节HPO轴功能、增强卵巢反应性,从而改善生殖发育和繁殖性能的可能作用模式。
基于肠道菌群门、属水平分析结果,苜蓿黄酮在适宜剂量范围内对肠道菌群具有一定的选择性重塑作用,而非导致菌群整体失衡。进一步的相关性分析显示,肠道Lactobacillus相对丰度与血清抗炎细胞因子IL-10水平及卵巢黄体数量呈显著正相关,而肠道RomboutsiaClostridium_sensu_stricto_1和Turicibacter相对丰度均与血清LH、IL-10水平及卵巢成熟卵泡数量呈显著负相关。已有研究表明,乳杆菌属在维持肠道微生态稳定、调节免疫反应及改善宿主代谢状态方面具有重要作用[33-34];相反,Clostridium_sensu_stricto_1常被认为是动物肠道中的机会性致病菌,其相对丰度升高与炎症反应增强密切相关[35-37]。本研究中,肠道Clostridium_sensu_stricto_1相对丰度与血清IL-10水平的负相关关系,进一步支持了其潜在促炎特征。与此同时,RomboutsiaTuricibacter在多项研究中被认为与代谢紊乱或炎症状态相关[38-39],其在LG组中相对丰度的下降,可能有助于改善机体的免疫和内分泌环境。综合来看,低剂量苜蓿黄酮通过增加与抗炎及生殖有利指标相关的益生菌属、降低与炎症及生殖不利指标相关的菌属,在不依赖肠道结构重塑的前提下优化了肠道微生态环境。这种菌群组成的改变可能通过改善机体炎性状态并影响内分泌信号通路,为青春期生殖轴的启动及卵巢功能的提升提供了有利的微环境支持。
综合来看,低剂量苜蓿黄酮通过增加与抗炎及生殖有利指标相关的益生菌属、降低与炎症及生殖不利指标相关的菌属,在不依赖显著肠道结构重塑的前提下优化了肠道微生态环境。这种菌群组成的改变可能通过改善机体炎性状态并影响内分泌信号通路,为青春期生殖轴的启动及卵巢功能的提升提供了有利的微环境支持。需要指出的是,本研究所用苜蓿黄酮为标准化商业提取物(总黄酮含量为35%),未进一步对其具体黄酮单体组成进行鉴定。已有研究表明,苜蓿黄酮主要含有木犀草素、芹菜素等活性成分[40-41],但不同黄酮单体在调控肠道菌群及生殖发育中的具体作用仍有待进一步研究。

4 结论

苜蓿黄酮对青春期雌性大鼠性成熟和生殖发育具有明显的剂量效应,其中31.25 mg/kg低剂量表现出最佳综合效果。该剂量可提前初情启动、改善卵巢发育并提高胚胎着床水平,同时伴随生殖相关激素与基因表达增强以及肠道菌群结构优化。
[1]
KANG Y C, CHEN X H, LONG Q, et al. Anti-atherosclerotic effect of alfalfa flavonoid extract by regulating inflammation and oxidative stress in HUVEC cells and rats[J]. Journal of Functional Foods, 2024, 121:106426.

DOI

[2]
HONG Y H, WANG S C, HSU C, et al. Phytoestrogenic compounds in alfalfa sprout (Medicago sativa) beyond coumestrol[J]. Journal of Agricultural and Food Chemistry, 2011, 59(1):131-137.

DOI

[3]
MA J X, HUANGFU W K, YANG X, et al. “King of the forage”-alfalfa supplementation improves growth,reproductive performance,health condition and meat quality of pigs[J]. Frontiers in Veterinary Science, 2022, 9:1025942.

DOI

[4]
CUI Y L, LI F, ZHU X Y, et al. Alfalfa saponins inhibit oxidative stress-induced cell apoptosis through the MAPK signaling pathway[J]. Redox Report, 2022, 27(1):1-8.

DOI PMID

[5]
占今舜, 陈小连, 詹康, 等. 苜蓿黄酮对脂多糖诱导下奶牛乳腺上皮细胞凋亡的影响[J]. 草业学报, 2018, 27(1):187-194.

DOI

ZHAN J S, CHEN X L, ZHAN K, et al. Effects of alfalfa flavonoids on apoptosis of bovine mammary epithelial cells induced by lipopolysaccharide[J]. Acta Prataculturae Sinica, 2018, 27(1):187-194. (in Chinese)

[6]
OUYANG K H, XU M S, JIANG Y, et al. Effects of alfalfa flavonoids on broiler performance,meat quality,and gene expression[J]. Canadian Journal of Animal Science, 2016, 96(3):332-341.

DOI

[7]
曲根, 刘建宇, 郭志鹏, 等. 苜蓿草粉和黄酮对断奶仔猪结肠微生物区系的影响[J]. 草业学报, 2019, 28(6):175-184.

DOI

QU G, LIU J Y, GUO Z P, et al. Effects of alfalfa meal and alfalfa flavonoids on colon microflora of weaned piglets[J]. Acta Prataculturae Sinica, 2019, 28(6):175-184. (in Chinese)

DOI

[8]
占今舜, 邬彩霞, 刘明美, 等. 饲粮添加苜蓿黄酮对奶牛瘤胃菌群的影响[J]. 草业学报, 2017, 26(7):82-89.

DOI

ZHAN J S, WU C X, LIU M M, et al. Effects of alfalfa flavonoids as dietary additives on bacterial flora in the rumen of dairy cows[J]. Acta Prataculturae Sinica, 2017, 26(7):82-89. (in Chinese)

[9]
王伟, 田苗苗, 梁新平, 等. 苜蓿总黄酮对妊娠雌鼠繁殖性能及相关基因表达量的影响[J]. 草业学报, 2013, 22(6):249-256.

DOI

WANG W, TIAN M M, LIANG X P, et al. Effect of alfalfa flavonoids on reproductive performance of female rats in pregnancy and on gene expression in the hypothalamus-pituitary-ovarian gonadal axis[J]. Acta Prataculturae Sinica, 2013, 22(6):249-256. (in Chinese)

DOI

[10]
INTHARUKSA A, ARUNOTAYANUN W, NA TAKUATHUNG M, et al. Daidzein and genistein:natural phytoestrogens with potential applications in hormone replacement therapy[J]. International Journal of Molecular Sciences, 2025, 26(14):6973.

DOI

[11]
王伟. 苜蓿黄酮对不同生理阶段雌鼠繁殖性能及相关基因表达的影响[D]. 硕士学位论文. 郑州: 河南农业大学, 2013.

WANG W. Effect of alfalfa flavonoids on reproductivity and gene expression from the hypothalamus-pituitary-ovarian axis at difference physiological stages[D]. Master’s Thesis. Zhengzhou: Henan Agricultural University, 2013. (in Chinese)

[12]
ZUCHELO L T S, ALVES M S, BARACAT E C, et al. Menstrual pattern in polycystic ovary syndrome and hypothalamic-pituitary-ovarian axis immaturity in adolescents:a systematic review and Meta-analysis[J]. Gynecological Endocrinology, 2024, 40(1):2360077.

DOI

[13]
GUARNERI A M, KAMBOJ M K. Physiology of pubertal development in females[J]. Pediatric Medicine, 2019, 2:42.

DOI

[14]
AKBARINEJAD V, CUSHMAN R A. Developmental programming of reproduction in the female animal[J]. Animal Reproduction Science, 2024, 263:107456.

DOI

[15]
QI X Y, YUN C Y, SUN L L, et al. Gut microbiota-bile acid-nterleukin-22 axis orchestrates polycystic ovary syndrome[J]. Nature Medicine, 2019, 25(8):1225-1233.

DOI

[16]
LIU M Q, SUN J M, JIA Z Y, et al. Medicago sativa L. saponin-driven Lactobacillus intestinalis restores intestinal stemness in naturally aged mice via the bile acid-FXR-Wnt signaling axis[J]. Advanced Science, 2026, 13(4):e15370.

DOI

[17]
XIONG H H, LIN S Y, CHEN L L, et al. The interaction between flavonoids and intestinal microbes:a review[J]. Foods, 2023, 12(2):320.

DOI

[18]
National Research Council, et al.Board on Agriculture,Committee on Animal Nutrition, Nutrient requirements of laboratory animals[S]. 4th rev. ed.Washington,D. C.: National Academy Press,1995:11-79.

[19]
李梦尧, 赵淑敏, 李佳静, 等. 饲粮中添加苜蓿草粉对青春期SD雌鼠初情启动和卵泡发育的影响[J]. 中国畜牧杂志, 2025, 61(7):349-356.

LI M Y, ZHAO S M, LI J J, et al. Effects of adding alfalfa meal to the diet on the onset of puberty and follicular development in SD female rats during puberty[J]. Chinese Journal of Animal Science, 2025, 61(7):349-356. (in Chinese)

[20]
WINSHIP A L, SARMA U C, ALESI L R, et al. Accurate follicle enumeration in adult mouse ovaries[J]. Journal of Visualized Experiments, 2020, 164:e61782.

[21]
LIU B S, WANG W J, ZHU X Y, et al. Response of gut microbiota to dietary fiber and metabolic interaction with SCFAs in piglets[J]. Frontiers in Microbiology, 2018, 9:2344.

DOI PMID

[22]
王梦竹, 刘艳丰, 张文举. 紫花苜蓿黄酮类化合物对动物机体生理活性影响的研究进展[J]. 中国畜牧兽医, 2015, 42(10):2688-2694.

DOI

WANG M Z, LIU Y F, ZHANG W J. Research progress of flavonoids of Medicago sativa on animal physiological activity[J]. China Animal Husbandry & Veterinary Medicine, 2015, 42(10):2688-2694. (in Chinese)

[23]
DEVILLERS M M, MHAOUTY-KODJA S, GUIGON C J. Deciphering the roles & regulation of estradiol signaling during female mini-puberty:insights from mouse models[J]. International Journal of Molecular Sciences, 2022, 23(22):13695.

DOI

[24]
READ J E, VASILE-TUDORACHE A, NEWSOME A, et al. Disorders of puberty and neurodevelopment:a shared etiology?[J]. Annals of the New York Academy of Sciences, 2024, 1541(1):83-99.

DOI

[25]
HOWARD S R. Interpretation of reproductive hormones before,during and after the pubertal transition-identifying health and disordered puberty[J]. Clinical Endocrinology, 2021, 95(5):702-715.

DOI

[26]
陈衡, 潘相文, 王飞飞, 等. 大豆异黄酮生物合成与调控的分子机制研究进展[J]. 土壤与作物, 2021, 10(2):126-142.

CHEN H, PAN X W, WANG F F, et al. Molecular mechanisms of isoflavone biosynthesis and regulation in soybean:a review[J]. Soil and Crops, 2021, 10(2):126-142. (in Chinese)

[27]
LIU X, BIN C L, ZHOU Z H, et al. The neurobiology of plant-based therapeutics in women’s reproductive health:mechanisms,efficacy,and clinical translation[J]. Frontiers in Nutrition, 2025, 12:1591534.

DOI

[28]
王伟, 王凤云, 田苗苗, 等. 苜蓿总黄酮对未达性成熟期及成年雌性大鼠下丘脑-垂体-卵巢性腺轴相关基因表达量的影响[J]. 草地学报, 2014, 22(3):600-604.

DOI

WANG W, WANG F Y, TIAN M M, et al. Effects of alfalfa flavonoids on the gene expression of hypothalamus-pituitary-ovarian gonadal axis in the preadolescence and maturity of female rat[J]. Acta Agrestia Sinica, 2014, 22(3):600-604. (in Chinese)

DOI

[29]
HEDDAR A, OGUR C, DA COSTA S, et al. Genetic landscape of a large cohort of primary ovarian insufficiency:new genes and pathways and implications for personalized medicine[J]. eBioMedicine, 2022, 84:104246.

DOI

[30]
张炳婕, 冯艳红, 张兰, 等. 补肾促排方对大鼠卵巢颗粒细胞黄体生成素受体和卵泡刺激素受体的影响[J]. 现代中西医结合杂志, 2017, 26(8):807-809,850.

ZHANG B J, FENG Y H, ZHANG L, et al. Influence of Bushen Cupai formula on the expression of luteinizing hormone receptor and follicle stimulating hormone receptor in rat ovarian granulosa cells[J]. Modern Journal of Integrated Traditional Chinese and Western Medicine, 2017, 26(8):807-809,850. (in Chinese)

[31]
YIN Q, SPRADLING A C. Distinct waves of ovarian follicles contribute to mouse oocyte production[J]. eLife, 2025,14:RP107352.

[32]
张焱, 张华. 哺乳动物卵巢卵泡发育调控机制研究进展[J]. 生理学报, 2020, 72(1):63-74.

ZHANG Y, ZHANG H. Research advances in regulating mechanisms of mammalian ovarian folliculogenesis[J]. Acta Physiologica Sinica, 2020, 72(1):63-74. (in Chinese)

[33]
JI F H, LI M, HAN X, et al. Lactobacilli-mediated regulation of the microbial-immune axis:a review of key mechanisms,influencing factors,and application prospects[J]. Foods, 2025, 14(10):1763.

DOI

[34]
LI C X, PENG K X, XIAO S Q, et al. The role of Lactobacillus in inflammatory bowel disease:from actualities to prospects[J]. Cell Death Discovery, 2023, 9(1):361.

DOI

[35]
WANG X Y, SHAO Y, ZHOU X L, et al. Dynamic changes in the gut microbiota during peripartum in jennies[J]. Animals, 2025, 15(9):1337.

DOI

[36]
GU W C, ZHANG L K, HAN T, et al. Dynamic changes in gut microbiome of ulcerative colitis:initial study from animal model[J]. Journal of Inflammation Research, 2022, 15:2631-2647.

DOI

[37]
LI Y J, LI J, DAI C. The role of intestinal microbiota and mast cell in a rat model of visceral hypersensitivity[J]. Journal of Neurogastroenterology and Motility, 2020, 26(4):529-538.

DOI

[38]
GRANATO A, XIE Q Y, WONG A, et al. Metabolic dysfunction associated with alterations in gut microbiota in adolescents with obesity[J]. Diabetes, 2025, 74(5):720-733.

[39]
LI C X, PENG K X, LONG Y Y, et al. Gut microbiota Turicibacter strains differentially modify bile acids and host lipids[J]. Nature Communications, 2023, 14(1):3669.

DOI

[40]
STOCHMAL A, PIACENTE S, PIZZA C, et al. Alfalfa (Medicago sativa L.) flavonoids.1.Apigenin and luteolin glycosides from aerial parts[J]. Journal of Agricultural and Food Chemistry, 2001, 49(2):753-758.

DOI

[41]
JOOLAEI AHRANJANI P, RASHIDI NODEH H, ESFANDIARI Z, et al. Advances in extracting bioactive constituents from Medicago sativa L. (alfalfa):a systematic approach of green and conventional techniques[J]. Applied Food Research, 2026, 6(1):101696.

DOI

Outlines

/