RESEARCH PAPER

Construction and Expression of Recombinant Pichia pastoris for Cell-Penetrating Antimicrobial Peptides and Activity Identification

  • LI Ling , 1 ,
  • QIN Yumeng 2 ,
  • PAN Chunyuan 1 ,
  • ZHANG Aizhong , 1, * ,
  • JIANG Ning , 1, *
Expand
  • 1 Key Laboratory of Efficient Utilization of Feed Resources and Nutrition Regulation in Cold Region of Heilongjiang Province, College of Animal Science and Veterinary Medicine, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 Agriculture and Rural Bureau of Wangkui County, Heilongjiang Province, Suihua 152101, China
* ZHANG Aizhong, professor, E-mail: ;
JIANG Ning, professor, E-mail:

Received date: 2026-01-22

  Online published: 2026-09-12

Abstract

This experiment was conducted to construct recombinant Pichia pastoris for expressing cell-penetrating antimicrobial peptides and verify the in vitro biological activities of purified products. Meanwhile, enhanced green fluorescent protein (eGFP) fusion expression systems were established to facilitate expression monitoring and further research on intracellular action mechanisms. Four gene sequences, including C3M4 (a CecMd-derived antimicrobial peptide targeting Salmonella), C3M4-CPP (cell-penetrating antimicrobial peptide formed by conjugating C3M4 with ovine intestinal epithelial cell-specific cell-penetrating peptide CPP), as well as C3M4-eGFP and C3M4-CPP-eGFP obtained by fusing the above two peptides with eGFP, were inserted into the pGAPZαA vectors. The recombinant plasmids were electrotransformed into Pichia pastoris SMD1168 to generate four recombinant yeast strains. Sodium dodecyl sulfate-polyacrylamide gel electrophoresis (SDS-PAGE), Western Blot and bicinchoninic acid (BCA) method were used for qualitative and quantitative analysis of expressed proteins. After affinity purification, the in vitro antibacterial activity, stability and hemolytic activity of target proteins were further evaluated. The results showed that recombinant expression vectors and recombinant Pichia pastoris were successfully constructed, and all four peptides were successfully secreted. The strains secreting C3M4 and C3M4-CPP achieved the highest protein yields at 72 h of fermentation, and the target protein concentrations were 2.91 and 3.33 g/L, respectively. The maximum protein production of strains expressing C3M4-eGFP and C3M4-CPP-eGFP occurred at 96 and 60 h of fermentation, with target protein concentrations of 4.89 and 5.23 g/L, respectively. All purified products exhibited antibacterial activity against both Gram-positive and Gram-negative bacteria. Their antibacterial activity slightly decreased after high-temperature, acidic and pepsin treatments, whereas trypsin treatment markedly reduced antibacterial activity. The four purified products showed low hemolytic activity against porcine, murine, ovine and chicken red blood cells. In conclusion, this study confirmed that cell-penetrating antimicrobial peptide C3M4-CPP can be efficiently secreted by recombinant Pichia pastoris. The purified peptide has favorable broad-spectrum antibacterial activity and stability, and exhibits potential to be developed as novel antibacterial agents or feed additives.

Cite this article

LI Ling , QIN Yumeng , PAN Chunyuan , ZHANG Aizhong , JIANG Ning . Construction and Expression of Recombinant Pichia pastoris for Cell-Penetrating Antimicrobial Peptides and Activity Identification[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 7159 -7170 . DOI: 10.12418/CJAN2026.570

在畜牧业生产中,畜禽经常因遭受细菌感染而引发疾病。细菌感染可分为胞外感染与胞内感染,部分胞内致病菌侵入宿主细胞后可持续增殖,且在感染过程中能够抵抗巨噬细胞的杀伤,从而逃脱机体免疫系统的清除[1],因此,此类病原菌引发的感染较难控制。若采用高剂量抗生素开展治疗,不仅易对宿主细胞产生毒副作用,日趋严峻的抗生素耐药性问题还会通过食源性途径威胁人畜健康[2]。目前最有前景的抗生素替代品是具有细胞穿透活性的抗菌肽(antimicrobial peptides,AMPs),其能够直接作用于胞内致病菌,在防控胞内感染方面展现出优势[3]
抗菌肽是一类多功能小分子蛋白质,具有抗细菌、抗真菌及抗病毒等生物学活性[4]。细胞穿透肽(cell penetrating peptides,CPPs)为一类短肽,能够穿透多种生物膜进入细胞而不破坏细胞膜结构[5],可高效运载药物、蛋白质、核酸等生物活性大分子进入细胞内部[6]。部分抗菌肽自身跨膜能力较弱,限制了其在动物胞内感染防控中的应用。将抗菌肽与CPPs偶联,能够增强抗菌肽进入感染细胞的能力,进而使其更好地发挥抗菌作用[7]。已有研究证实,将抗菌肽OP145与CPPs R8偶联得到OP145-R8,相较于单独使用抗菌肽OP145,该融合肽可有效清除胞内外粪肠球菌OG1RF[8]。本课题组将利用噬菌体展示技术筛选获得的羊小肠上皮细胞特异性穿透肽[9]作为配体,与靶向沙门氏菌的CecMd衍生抗菌肽C3M4偶联,构建了靶向羊小肠的入胞抗菌肽C3M4-CPP;初步研究证明,该化学合成的靶向入胞抗菌肽C3M4-CPP较抗菌肽C3M4具有更好的细胞膜穿透活性,可杀灭羊小肠细胞内的鼠伤寒沙门氏菌[10]。然而,化学合成法成本较高,限制了该肽的规模化应用;基因重组技术则是实现抗菌肽高效、低成本生产的重要手段。毕赤酵母因其分泌表达能力强、产量高、安全性好、成本较低以及易于规模化发酵等优势,已成为表达外源蛋白的优选基因工程菌[11],其相关表达载体pGAPZαA亦具有良好的食品安全性。因此,本研究拟采用毕赤酵母表达系统,对靶向沙门氏菌抗菌肽C3M4及其靶向入胞抗菌肽C3M4-CPP进行重组表达与纯化,并系统评价其体外生物活性;为了便于表达监测和体内机制研究,同时比较了上述抗菌肽融合增强型绿色荧光蛋白(eGFP)标签的表达效果,以期为新型抗菌药物及饲料添加剂的研发提供理论依据与试验基础。

1 材料与方法

1.1 质粒与菌株

表达载体pGAPZαA与毕赤酵母SMD1168购自南京钟鼎生物技术有限公司;大肠杆菌(ATCC25922)、无乳链球菌(ATCC13813)、金黄色葡萄球菌(ATCC43300)、鸡沙门氏菌(ATCC10398)、铜绿假单胞菌(ATCC9027)、粪肠球菌(ATCC29212)均由黑龙江省寒区饲料资源高效利用与营养调控重点实验室提供。

1.2 主要试剂

高纯度质粒小提试剂盒购自天根生化科技(北京)有限公司;酵母基因组DNA提取试剂盒、十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶制备试剂盒、三羟甲基甘氨酸(Tricine)-SDS-PAGE凝胶制备试剂盒、蛋白质Marker购自北京索莱宝科技有限公司;组氨酸(His)标签小鼠单克隆抗体、辣根过氧化物酶标记山羊抗小鼠免疫球蛋白G(IgG)、二喹啉甲酸(BCA)蛋白浓度测定试剂盒购自上海碧云天生物技术股份有限公司;限制性内切酶EcoR Ⅰ、Not Ⅰ、Avr Ⅱ购自宝日医生生物技术(北京)有限公司;2×Taq PCR Mix、DNA Marker购自北京兰杰柯科技有限公司;博来霉素(Zeocin)购自赛默飞世尔科技公司;其余试剂均为国产分析纯。

1.3 重组表达载体的构建

以靶向沙门氏菌抗菌肽C3M4(氨基酸序列为GLLKGLLKKIGKKIRVGVRTRA)及其靶向入胞抗菌肽C3M4-CPP(氨基酸序列为GLLKGLLKKIGKKIRVGVRTRAVLNSLID)为基础肽序列,在此基础上再分别连接报告基因eGFP构成标记肽序列,按照毕赤酵母偏好密码子翻译、优化核酸序列;在序列5'端添加EcoR Ⅰ酶切位点,3'端连接6×His标签并引入Not Ⅰ酶切位点。委托南京钟鼎生物技术有限公司完成全基因合成,构建重组表达载体pGAPZαA-C3M4、pGAPZαA-C3M4-CPP、pGAPZαA-C3M4-eGFP和pGAPZαA-C3M4-CPP-eGFP,并分别转入大肠杆菌TOP10中,用于菌体扩增和质粒提取;通过PCR(引物序列:C3M4与C3M4-CPP上游引物序列为5'-ATGGGTTTGTTGAAGGGTTT-3',C3M4-eGFP与C3M4-CPP-eGFP上游引物序列为5'-TTTGTTGAAGGGTTTGTT-3';下游通用引物序列为5'-TTAATGGTGATGATGATGAT-3')与双酶切鉴定是否成功构建表达载体[12]

1.4 重组毕赤酵母的构建

采用限制性内切酶Avr Ⅱ对重组质粒进行线性化处理,将完全线性化的质粒进行乙酸钠浓缩,使其浓度达到1~10 μg/μL。取80 μL毕赤酵母SMD1168感受态细胞与10 μg质粒充分混匀,在1 500 V、25 μF、220 Ω条件下进行电转;电转复苏后取适量菌液涂布于含100 μg/mL Zeocin的YPD固体培养基,30 ℃培养至长出单菌落,从不同位置挑取3个转化子,分别进行液体培养及酵母基因组DNA提取,随后进行PCR鉴定。

1.5 目的蛋白表达

挑取经鉴定电转化成功的转化子接种于5 mL含有25 μg/mL Zeocin的YPD液体培养基中,30 ℃振荡培养12 h后,按1∶50接种到100 mL YPD液体培养基中培养,72 h后以10 000×g离心10 min,收集上清液,采用三氯乙酸法沉淀蛋白,进行SDS-PAGE和蛋白质免疫印迹(Western Blot)验证[13]

1.6 最佳发酵时间测定

将4株重组毕赤酵母分别培养12、24、36、48、60、72、84、96、108、120、132、144 h,收集各培养时间点发酵上清液,使用BCA蛋白浓度测定试剂盒测定总蛋白浓度,并进行SDS-PAGE分析,利用Image Lab软件分析目的条带占比,计算目的蛋白产量,以确定最佳发酵时间[12]

1.7 目的蛋白纯化

由于目的基因合成时连接了6×His标签,目的蛋白可与镍离子金属螯合介质特异性结合,据此使用5 mL镍离子-氮川三乙酸(Ni-NTA)预装重力柱进行亲和层析纯化。将经硫酸铵沉淀浓缩、透析除盐后的蛋白样品注入平衡过的预装柱内,重复上样2~3次后,使用含20~40 mmol/L咪唑的结合缓冲液过柱3次,以洗脱与填料结合不牢的杂蛋白,再加入含有500 mmol/L咪唑的洗脱缓冲液,将流出的洗脱液重复上柱2~3次,收集目的蛋白洗脱液,低温透析后,参照1.6所述方法进行蛋白定性与定量分析。

1.8 纯化产物的体外生物活性鉴定

1.8.1 最小抑菌浓度(MIC)与最小杀菌浓度(MBC)

参照微量肉汤稀释法[11]测定MIC。将对数生长期的6种受试菌(大肠杆菌、无乳链球菌、金黄色葡萄球菌、鸡沙门氏菌、铜绿假单胞菌、粪肠球菌)菌液浓度稀释至1×10⁵ CFU/mL。向无菌96孔板的各孔中先加入50 μL MHB培养基,再吸取50 μL纯化产物加入到第1孔,充分混匀后吸取50 μL混合液转移至第2孔,依次倍比稀释至第10孔,吸出50 μL混合液弃除;向第1~11孔分别加入50 μL受试菌液,以第11孔作为阳性对照,第12孔加入50 μL MHB培养基作为阴性对照。37 ℃培养12 h后,利用酶标仪(RNE90002,Reagen,美国)检测490 nm处吸光度值,吸光度值突增的前1孔对应的纯化产物浓度为MIC。分别吸取各澄清试验孔内液体,均匀涂布于MHA培养基,37 ℃培养16 h后进行菌落计数,无菌落生长对应的纯化产物浓度即为MBC。试验重复3次。

1.8.2 高温、低pH及蛋白酶处理后稳定性

对纯化产物分别进行以下处理:1)置于金属浴中100 ℃加热1 h;2)与pH 3.0盐酸溶液等体积混合,37 ℃温育1 h;3)分别与1 mg/mL胃蛋白酶、胰蛋白酶溶液等体积混合,37 ℃温育1 h后,95 ℃加热5 min灭活蛋白酶。完成上述处理后,按照1.8.1方法测定MIC,考察纯化产物的抑菌活性是否改变。每个试验重复3次。

1.8.3 溶血活性

分别采集猪、羊、小鼠、鸡的新鲜血液于含肝素钠的抗凝管中(试验程序经黑龙江八一农垦大学科学技术伦理委员会审批,审查登记号为DWKJXY2022064),1 000×g离心5 min,弃血清,收集下层红细胞,采用磷酸盐缓冲液(PBS)洗涤3次,制成1%红细胞悬液。向无菌96孔板的各孔中先加入60 μL PBS,再吸取60 μL纯化产物加入到第1孔,充分混匀后吸取60 μL混合液转移至第2孔,依次倍比稀释至第10孔,吸出60 μL混合液弃除;再向第1~12孔加入60 μL 1%红细胞悬液,第11孔作为阴性对照,第12孔再加入60 μL 0.2% TritonX-100作为阳性对照;密封后37 ℃孵育1 h,1 000×g离心5 min,吸取上清液至新的96孔板,用酶标仪(RNE90002,Reagen,美国)在570 nm下测定吸光度值。试验重复3次。溶血率的计算公式为:
溶血率(%)=100×(试验孔吸光度值-阴性对照孔吸光度值)/(阳性对照孔吸光度值-阴性对照孔吸光度值)。

1.9 数据统计分析

试验数据采用Excel 2024进行整理,总蛋白浓度数据利用Graphpad Prism 9.5.0软件作图。

2 结果与分析

2.1 重组表达载体的构建

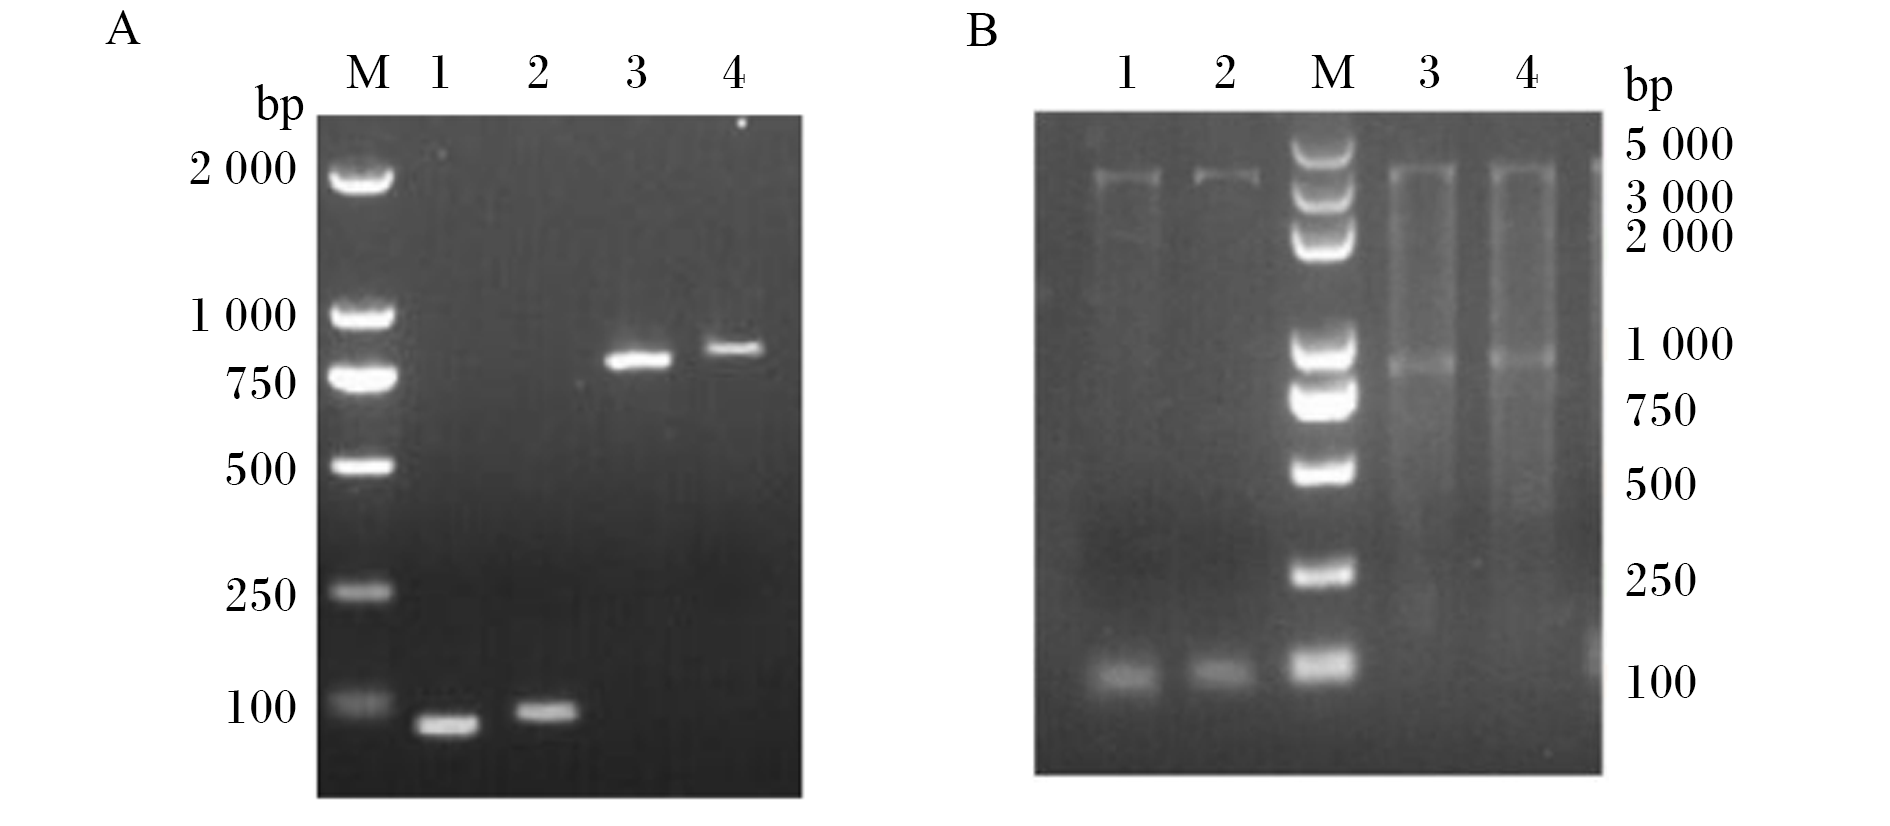
C3M4、C3M4-CPP、C3M4-eGFP和C3M4-CPP-eGFP基因的理论长度分别为72、93、801和822 bp。重组表达载体的PCR鉴定结果如图1-A所示,pGAPZαA-C3M4与pGAPZαA-C3M4-CPP扩增产物在100 bp附近出现明亮的特异性条带,pGAPZαA-C3M4-eGFP与pGAPZαA-C3M4-CPP-eGFP扩增产物在750~1 000 bp区间出现明亮的特异性条带,片段大小与各目的基因理论长度相符。重组表达载体的双酶切鉴定结果如图1-B所示,空载体pGAPZαA全长为3 147 bp,各重组表达载体酶切产物在3 000~5 000 bp区间出现特异性条带(载体骨架),并分别在100 bp附近及750~1 000 bp区间出现特异性条带,条带大小与PCR 鉴定结果一致。
图1 重组表达载体鉴定

A:PCR鉴定;B:双酶切鉴定。泳道M:DNA Marker;泳道1:pGAPZαA-C3M4;泳道2:pGAPZαA-C3M4-CPP;泳道3:pGAPZαA-C3M4-eGFP;泳道4:pGAPZαA-C3M4-CPP-eGFP。

Fig.1 Identification of recombinant expression vectors

A: PCR identification; B: double digestion identification. Lane M: DNA Marker; lane 1:pGAPZαA-C3M4; lane 2: pGAPZαA-C3M4-CPP; lane 3: pGAPZαA-C3M4-eGFP; lane 4: pGAPZαA-C3M4-CPP-eGFP.

2.2 重组毕赤酵母的构建

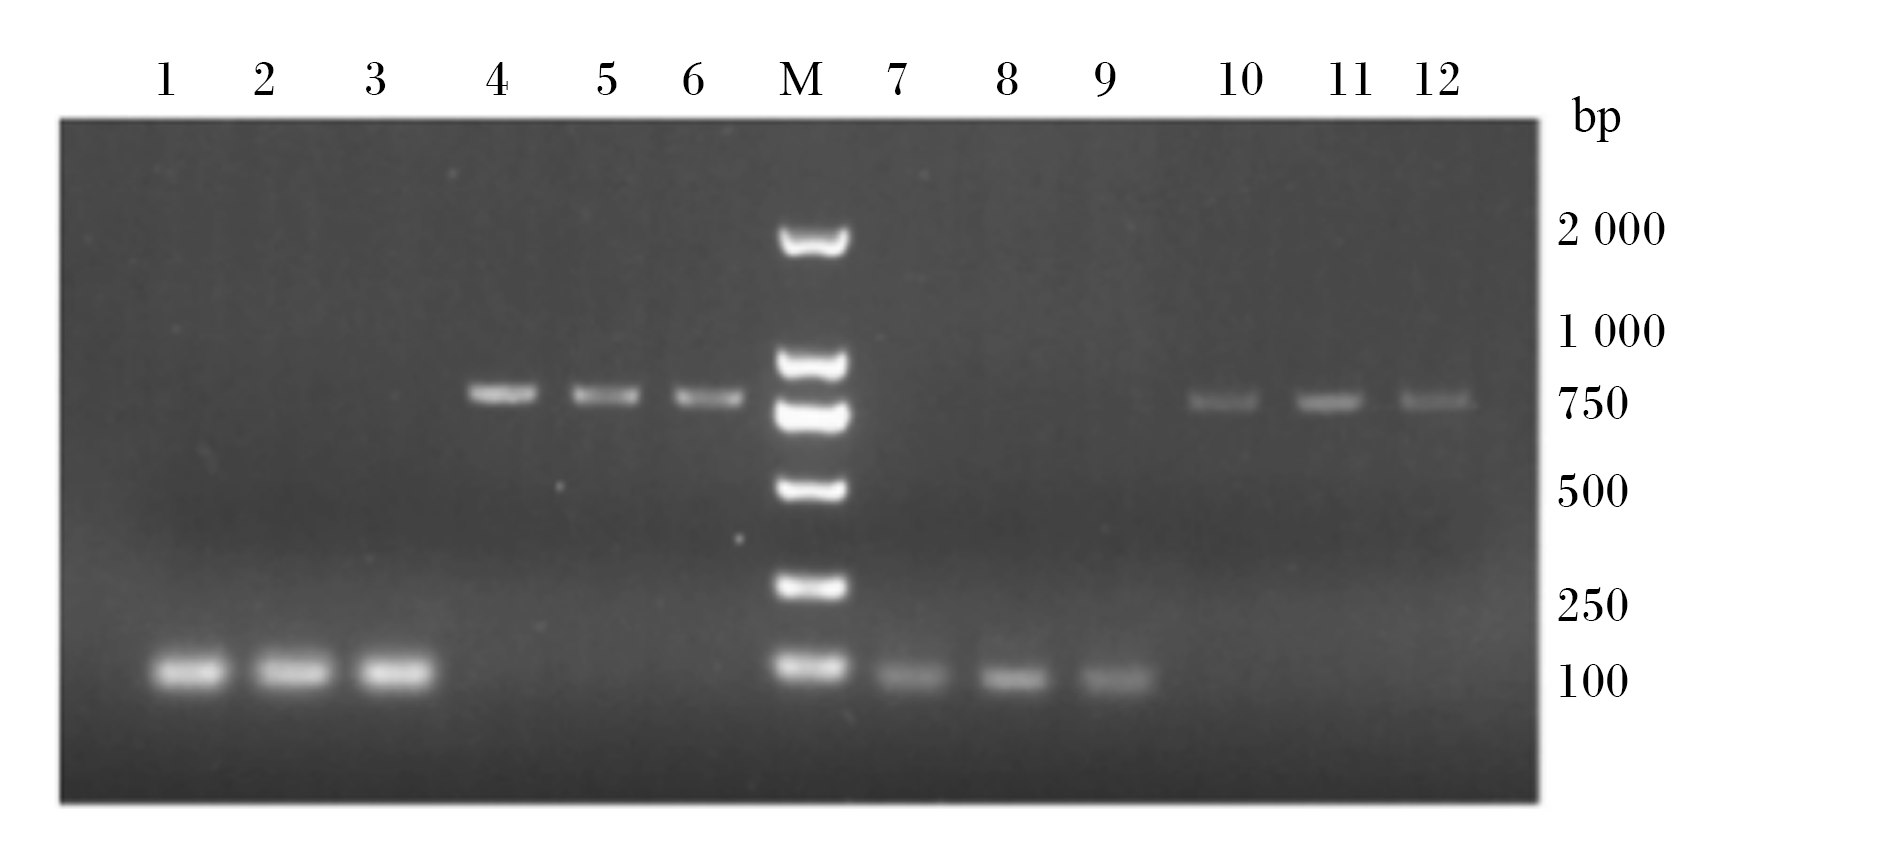
4株重组毕赤酵母的PCR鉴定结果如图2所示,菌株扩增产物片段大小与电转前重组表达载体PCR扩增产物一致,表明表达C3M4、C3M4-CPP、C3M4-eGFP、C3M4-CPP-eGFP的重组毕赤酵母构建成功。
图2 重组毕赤酵母的PCR鉴定

泳道M:DNA Marker;泳道1~3:pGAPZαA-C3M4转化子;泳道4~6:pGAPZαA-C3M4-eGFP转化子;泳道7~9:pGAPZαA-C3M4-CPP转化子;泳道10~12:pGAPZαA-C3M4-CPP-eGFP转化子。

Fig.2 PCR identification of recombinant Pichia pastoris

Lane M: DNA Marker; lanes 1-3: pGAPZαA-C3M4 transformant; lanes 4-6: pGAPZαA-C3M4-eGFP transformant; lanes 7-9: pGAPZαA-C3M4-CPP transformant; lanes 10-12: pGAPZαA-C3M4-CPP-eGFP transformant.

2.3 目的蛋白表达

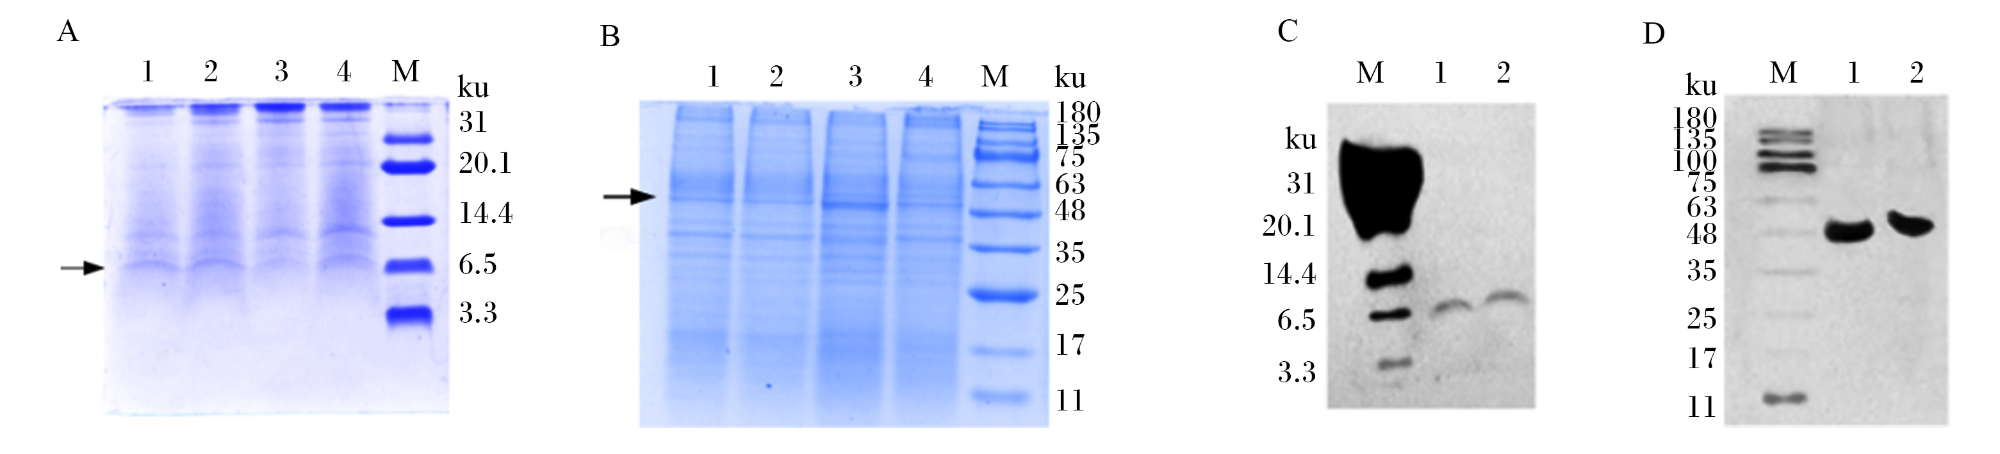
图3所示,采用Tricine-SDS-PAGE制胶试剂盒分离小分子多肽,结果(图3-A)显示泳道1~4 (C3M4与C3M4-CPP)在6.5 ku附近出现特异性条带,与Western Blot鉴定结果(图3-C)中条带位置吻合,分子质量接近7 ku,且C3M4-CPP条带位置略高于C3M4。携带eGFP的融合蛋白经SDS-PAGE检测(图3-B),泳道1~4(C3M4-CPP-eGFP与C3M4-eGFP)在略高于48 ku处出现特异性条带,与Western Blot鉴定结果(图3-D)一致,分子质量接近50 ku,且C3M4-CPP-eGFP条带位置略高于C3M4-eGFP。
图3 重组毕赤酵母分泌蛋白鉴定

A:Tricine-SDS-PAGE鉴定(泳道M:蛋白质Marker;泳道1~2:C3M4;泳道3~4:C3M4-CPP);B:SDS-PAGE鉴定(泳道M:蛋白质Marker;泳道1~2:C3M4-CPP-eGFP;泳道3~4:C3M4-eGFP);C:Western Blot分析(泳道M:蛋白质Marker;泳道1:C3M4;泳道2:C3M4-CPP);D:Western Blot分析(泳道M:蛋白质Marker;泳道1:C3M4-eGFP;泳道2:C3M4-CPP-eGFP)。黑色箭头指示目的蛋白条带。

Fig.3 Identification of secretory proteins from recombinant Pichia pastoris

A: Tricine-SDS-PAGE identification (lane M: protein Marker; lanes 1-2: C3M4; lanes 3-4: C3M4-CPP); B: SDS-PAGE identification (lane M: protein Marker; lanes 1-2: C3M4-CPP-eGFP; lanes 3-4: C3M4-eGFP); C: Western Blot analysis (lane M: protein Marker; lane 1: C3M4; lane 2: C3M4-CPP); D: Western Blot analysis (lane M: protein Marker; lane 1: C3M4-eGFP; lane 2: C3M4-CPP-eGFP). Black arrows indicated the target protein bands.

2.4 最佳发酵时间测定

图4可知,4株重组毕赤酵母的总蛋白产量均随发酵时间延长呈先升高后降低的趋势。其中,C3M4与C3M4-CPP重组菌株均在发酵72 h时总蛋白产量达到峰值,分别为11.64和11.94 g/L(图4-A~D);C3M4-eGFP重组菌株在发酵96 h时总蛋白产量最高,为13.26 g/L(图4-E~F);C3M4-CPP-eGFP重组菌株在发酵60 h时总蛋白产量最高,为13.79 g/L(图4-G~H)。根据条带占比计算各重组菌株发酵液中目的蛋白浓度:C3M4为2.91 g/L,C3M4-CPP为3.33 g/L,C3M4-eGFP为4.89 g/L,C3M4-CPP-eGFP为5.23 g/L。
图4 重组毕赤酵母分泌蛋白量随发酵时间的变化规律

A、B:分泌C3M4重组菌株不同发酵时间发酵上清液的Tricine-SDS-PAGE鉴定及总蛋白浓度;C、D:分泌C3M4-CPP重组菌株不同发酵时间发酵上清液的Tricine-SDS-PAGE鉴定及总蛋白浓度;E、F:分泌C3M4-eGFP重组菌株不同发酵时间发酵上清液的SDS-PAGE鉴定及总蛋白浓度;G、H:分泌C3M4-CPP-eGFP重组菌株不同发酵时间发酵上清液的SDS-PAGE鉴定及总蛋白浓度。泳道M:蛋白质Marker;泳道1:12 h;泳道2:24 h;泳道3:36 h;泳道4:48 h;泳道5:60 h;泳道6:72 h;泳道7:84 h;泳道8:96 h;泳道9:108 h;泳道10:120 h;泳道11:132 h;泳道12:144 h。黑色箭头指示目的蛋白条带。

Fig.4 Dynamics in secretory protein yields of recombinant Pichia pastoris with fermentation time

A, B: Tricine-SDS-PAGE identification and total protein concentration of fermentation supernatants from recombinant strain secreting C3M4 at different fermentation time; C, D: Tricine-SDS-PAGE identification and total protein concentration of fermentation supernatants from recombinant strain secreting C3M4-CPP at different fermentation time; E, F: SDS-PAGE identification and total protein concentration of fermentation supernatants from recombinant strain secreting C3M4-eGFP at different fermentation time; G, H: SDS-PAGE identification and total protein concentration of fermentation supernatants from recombinant strain secreting C3M4-CPP-eGFP at different fermentation time. Lane M: protein Marker; lane 1: 12 h; lane 2: 24 h; lane 3: 36 h; lane 4: 48 h; lane 5: 60 h; lane 6: 72 h; lane 7: 84 h; lane 8: 96 h; lane 9: 108 h; lane 10: 120 h; lane 11: 132 h; lane 12: 144 h. Black arrows indicated the target protein bands.

2.5 目的蛋白纯化

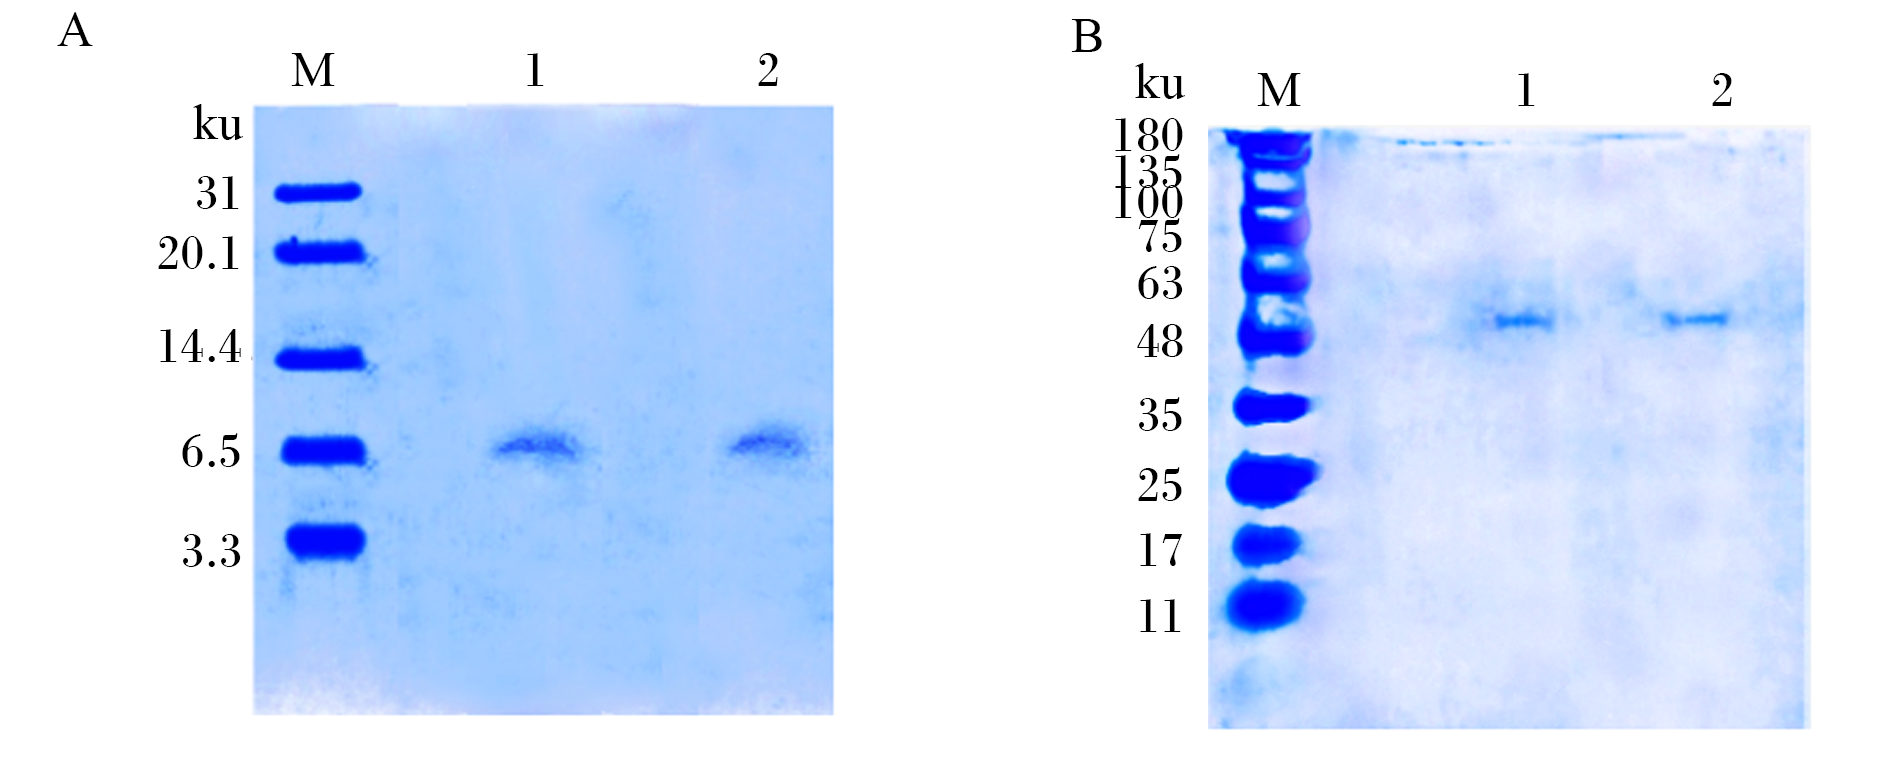
含C3M4、C3M4-CPP、C3M4-eGFP、C3M4-CPP-eGFP的发酵上清液经亲和纯化后,目的蛋白浓度分别为800.59、832.73、1 016.80、1 067.60 μg/mL。Tricine-SDS-PAGE鉴定结果(图5-A)显示,泳道1与泳道2均在接近7 ku处出现单一条带,分别对应目的蛋白C3M4和C3M4-CPP。SDS-PAGE鉴定结果(图5-B)显示,泳道1与泳道2均在接近50 ku处出现单一条带,对应目的蛋白C3M4-eGFP和C3M4-CPP-eGFP。上述条带位置与纯化前鉴定结果一致,获得的纯化蛋白可用于后续试验。
图5 纯化产物SDS-PAGE鉴定

A:Tricine-SDS-PAGE鉴定(泳道M:蛋白质Marker;泳道1:纯化产物C3M4;泳道2:纯化产物C3M4-CPP);B:SDS-PAGE鉴定(泳道M:蛋白质Marker;泳道1:纯化产物C3M4-eGFP;泳道2:纯化产物C3M4-CPP-eGFP)。

Fig.5 SDS-PAGE identification of purified products

A: Tricine-SDS-PAGE identification (lane M: protein Marker; lane 1: purified product C3M4; lane 2: purified product C3M4-CPP); B: SDS-PAGE identification (lane M: protein Marker; lane 1: purified product C3M4-eGFP; lane 2: purified product C3M4-CPP-eGFP).

2.6 纯化产物的体外生物活性鉴定

2.6.1 MIC和MBC

表1可知,C3M4、C3M4-CPP、C3M4-eGFP和C3M4-CPP-eGFP对革兰氏阳性菌和革兰氏阴性菌均表现出不同程度的抑菌和杀菌活性。为准确反映活性分子数量,结果以摩尔浓度(μmol/L)表示。其中C3M4-CPP的抑菌和杀菌活性与C3M4相当;C3M4-CPP-eGFP的抑菌和杀菌活性略高于C3M4-eGFP。对于eGFP融合多肽,其MIC结果表明融合蛋白保持了基本抗菌活性,为其后续作为荧光示踪工具开展胞内机制研究提供了依据。
表1 纯化产物对受试菌株的MIC和MBC

Table 1 MIC and MBC of purified products against tested strains μmol/L

项目
Items
革兰氏阴性菌Gram-negative bacteria 革兰氏阳性菌Gram-positive bacteria
大肠杆菌
Escherichia
coli
鸡沙门氏菌
Salmonella
gallinarum
铜绿假单胞菌
Pseudomonas
aeruginosa
粪肠球菌
Enterococcus
faecalis
金黄色葡萄球菌
Staphylococcus
aureus
无乳链球菌
Streptococcus
agalactiae
最小抑菌浓度MIC
C3M4 7.15 7.15 14.30 14.30 3.58 14.30
C3M4-CPP 6.67 6.67 13.34 13.34 3.34 13.34
C3M4-eGFP 1.27 2.54 5.08 5.08 2.54 5.08
C3M4-CPP-eGFP 1.21 1.21 1.21 2.43 1.21 2.43
最小杀菌浓度MBC
C3M4 7.15 7.15 14.30 28.60 7.15 14.30
C3M4-CPP 6.67 6.67 13.34 13.34 6.67 13.34
C3M4-eGFP 2.54 2.54 5.08 5.08 5.08 5.08
C3M4-CPP-eGFP 2.43 1.21 2.43 4.86 1.21 2.43

2.6.2 高温、低pH及蛋白酶处理后稳定性

表2可知,经100 ℃高温处理后,除C3M4对鸡沙门氏菌和金黄色葡萄球菌的抑菌活性略有下降外,其余抗菌肽对各受试菌株的抑菌活性保持稳定。经pH 3.0盐酸溶液处理后,C3M4对鸡沙门氏菌的抑菌活性略有下降,对金黄色葡萄球菌的MIC升至4倍;C3M4-CPP仅对金黄色葡萄球菌的抑菌活性略有下降,对其余5株受试菌的MIC保持不变;C3M4-eGFP与C3M4-CPP-eGFP仅对粪肠球菌的抑菌活性减弱,对其余5株受试菌的MIC亦保持不变。经胃蛋白酶处理后,C3M4对大肠杆菌、铜绿假单胞菌和无乳链球菌的抑菌活性保持稳定,对其余受试菌的抑菌活性略有下降;C3M4-CPP对金黄色葡萄球菌和粪肠球菌、C3M4-eGFP对大肠杆菌和粪肠球菌及C3M4-CPP-eGFP对铜绿假单胞菌和粪肠球菌的抑菌活性略有下降。经胰蛋白酶处理后,除C3M4对粪肠球菌仍保留抑菌活性外,其余多肽在试验浓度范围均未检出对粪肠球菌的抑菌活性;总体而言,4条抗菌肽对各受试菌的抑菌活性虽大幅度降低,但仍未完全丧失。
表2 不同处理条件下纯化产物对受试菌株的MIC

Table 2 MIC of purified products against tested strains under different treatment conditions μmol/L

处理条件
Treatment
conditions
纯化产物
Purified
products
革兰氏阴性菌Gram-negative bacteria 革兰氏阳性菌Gram-positive bacteria
大肠杆菌
Escherichia
coli
鸡沙门氏菌
Salmonella
gallinarum
铜绿假单胞菌
Pseudomonas
aeruginosa
粪肠球菌
Enterococcus
faecalis
金黄色葡萄球菌
Staphylococcus
aureus
无乳链球菌
Streptococcus
agalactiae
未处理Untreated C3M4 7.15 7.15 14.30 14.30 3.58 14.30
C3M4-CPP 6.67 6.67 13.34 13.34 3.34 13.34
C3M4-eGFP 1.27 2.54 5.08 5.08 2.54 5.08
C3M4-CPP-eGFP 1.21 1.21 1.21 2.43 1.21 2.43
100 ℃ C3M4 7.15 14.30 14.30 14.30 7.15 14.30
C3M4-CPP 6.67 6.67 13.34 13.34 3.34 13.34
C3M4-eGFP 1.27 2.54 5.08 5.08 2.54 5.08
C3M4-CPP-eGFP 1.21 1.21 1.21 2.43 1.21 2.43
pH 3.0 C3M4 7.15 14.30 14.30 14.30 14.30 14.30
C3M4-CPP 6.67 6.67 13.34 13.34 6.67 13.34
C3M4-eGFP 1.27 2.54 5.08 10.17 2.54 5.08
C3M4-CPP-eGFP 1.21 1.21 1.21 4.86 1.21 2.43
胃蛋白酶Pepsin C3M4 7.15 14.30 14.30 28.60 7.15 14.30
C3M4-CPP 6.67 6.67 13.34 26.68 6.68 13.34
C3M4-eGFP 2.54 2.54 5.08 10.17 2.54 5.08
C3M4-CPP-eGFP 1.21 1.21 2.43 4.86 1.21 2.43
胰蛋白酶Trypsin C3M4 57.18 57.18 57.18 57.18 57.18 57.18
C3M4-CPP 53.38 53.38 53.38 - 53.38 53.38
C3M4-eGFP 10.17 10.17 10.17 - 10.17 10.17
C3M4-CPP-eGFP 9.71 9.71 9.71 - 9.71 9.71

“-”表示在最高受试浓度下仍未观察到抑菌效果。

“-” indicates no antibacterial effect was observed at the maximum tested concentration.

2.6.3 溶血活性

表3可知,4种纯化产物对不同动物血细胞的溶血活性均较低。C3M4在浓度为28.60 μmol/L时引起鸡血细胞溶血,C3M4-CPP、C3M4-eGFP与C3M4-CPP-eGFP在各自试验最大浓度条件下,均未使4种受试动物红细胞溶血率达到5%。在对应最高受试浓度下,C3M4-CPP最大溶血率≤4.19%,C3M4-eGFP最大溶血率≤3.89%,C3M4-CPP-eGFP最大溶血率≤3.09%。
表3 红细胞溶血率达5%时纯化产物的浓度

Table 3 Concentrations of purified products for 5% hemolysis rate of red blood cells μmol/L

项目
Items
猪红细胞
Porcine RBCs
羊红细胞
Ovine RBCs
鼠红细胞
Murine RBCs
鸡红细胞
Chicken RBCs
C3M4 57.18 57.18 - 28.60
C3M4-CPP - - - -
C3M4-eGFP - - - -
C3M4-CPP-eGFP - - - -

“-”表示在最高受试浓度下红细胞溶血率仍未达到5%。

“-” indicates that the hemolysis rate of red blood cells did not reach 5% at the maximum tested concentration.

3 讨论

为高效表达入胞抗菌肽,本研究选用了毕赤酵母表达系统,该系统不仅遗传稳定性高、增殖能力强,且具备高效分泌外源蛋白与翻译后修饰的能力,有利于维持抗菌肽的生物学活性[14]。Lai等[15]研究表明,相较于大肠杆菌和枯草芽孢杆菌,抗菌肽cecB2在毕赤酵母中表达量最高,且纯化产物对革兰氏阴性菌显示出较强的抑菌活性。与上述结论一致,本研究构建的重组毕赤酵母同样实现了较高水平的目的蛋白表达。
酵母系统对于不同抗菌肽分子的表达潜力,有随着分子量增加而呈现产量升高的趋势,如Zhao等[12]在毕赤酵母SMD1168中分别表达抗菌肽CC34及其四聚体CC34-4js,二者产量分别为648.2和1 105.3 mg/L。本研究在相同系统中所获结果也揭示了这一规律,偶联肽C3M4-CPP的蛋白表达量为3.33 g/L,略高于基础抗菌肽C3M4,两者因分子质量接近而分泌动态相似;而融合eGFP标签后,分子质量最大的C3M4-CPP-eGFP蛋白表达量达到5.23 g/L,高于其他3种多肽。这也表明合适的分子偶联可促进重组蛋白的高效分泌,且在毕赤酵母表达系统中,较大分子质量的重组蛋白往往更有利于高效表达。eGFP作为高度稳定的可溶性蛋白,已被多项研究证实可提升融合蛋白的表达水平,并可作为报告分子用于优化表达条件[16]。刘威等[17]及Halder等[18]研究表明,eGFP融合标签能增强抗菌肽的表达与稳定性,与本研究结果一致。此外,毕赤酵母表达抗菌肽具有明显的时间依赖性,需通过发酵时间优化以实现最大产物产量。Zhu等[19]报道抗菌肽pPIC9K-K在发酵72 h时达到表达量峰值37.15 mg/L,发酵96 h后表达量下降;Batman等[20]也观察到融合肽(RW)4-RMTEWP在发酵96 h时达到最高表达量256 mg/L。尽管本研究与已有报道的表达量差异较大,但产物随发酵时间的分泌变化规律相近,说明合理控制发酵时长对提升重组抗菌肽产量具有重要意义。
本试验所表达的4种抗菌肽对革兰氏阴性菌与革兰氏阳性菌均有抗菌活性,且C3M4经与CPPs偶联嵌合后仍维持较强抑菌活性。Du等[21]研究发现,将CPPs与FtsZpa肽进行偶联,所得产物对金黄色葡萄球菌、大肠杆菌、铜绿假单胞菌等多种革兰氏阳性菌及革兰氏阴性菌表现出广谱抗菌活性,与本研究结果相似。本课题组田宛鑫等[22]通过荧光显微镜观察发现,毕赤酵母表达的入胞抗菌肽C3M4-CPP-eGFP能穿透羊空肠细胞膜,直接在胞内发挥作用,对胞内致病菌的杀伤效率显著提升。何文浩等[23]研究发现,通过十二指肠灌注入胞抗菌肽,可提升羔羊胸腺、脾脏的抗氧化能力,有效调节炎性因子表达水平,从而预防羔羊感染沙门氏菌。入胞抗菌肽的作用机制可能与CPPs介导的递送效应相关,即CPPs能够提升抗菌肽在细菌细胞膜表面或膜内的局部富集浓度,从而增强多肽对细菌膜结构的破坏作用。Lee等[24]研究发现,CPPs与抗菌肽偶联后,其对革兰氏阳性菌和革兰氏阴性菌的抗菌活性分别提升了2~4倍和4~16倍。本研究中,偶联CPPs虽可改善C3M4的抑菌活性,但提升幅度有限,原因可能包括以下几方面:1)C3M4自身抑菌活性较强,与CPPs偶联后增效空间有限,CPPs的贡献更多体现在赋予其靶向穿透功能性上;2)表达序列引入的6×His标签虽便于纯化与鉴定,但可能在一定程度上干扰CPPs与抗菌肽的偶联协同效应[25];3)毕赤酵母表达系统中目的蛋白分泌前的修饰加工也可能对其最终活性产生影响。
稳定性是限制抗菌肽生产应用的一个重要因素,多数抗菌肽对胰蛋白酶敏感,这制约了其口服应用。Zhang等[26]在毕赤酵母中表达的融合抗菌肽AP138L-arg26,在低pH、高温及胃蛋白酶处理后仍能保持抑菌活性,但对胰蛋白酶敏感,孵育30 min后失去活性,这与本研究结果相似。本研究中的入胞抗菌肽在高温、强酸及胃蛋白酶等处理条件下仍能维持较强的抑菌活性,说明其结构稳定性较好。尽管它们对胰蛋白酶较敏感,可能影响其在肠道环境中的持久活性,但前期研究发现其具有较高的穿透效率[23],而且通过调整口服剂量可以实现持续释放,也可借助序列优化、包被等手段改善其在消化道内的稳定性。此外,本研究中4种多肽诱导红细胞发生溶血的临界浓度均远高于MIC,表明其溶血活性较低、细胞安全性良好。有研究表明,将抗菌肽与CPPs偶联在增强抗菌活性的同时也降低了细胞毒性[20]。Huo等[27]将LL-37类似物KR-12与穿透肽TAT偶联,所得TAT-KR-12肽在浓度高达1 024 μg/mL时仍无明显溶血效应。因此,C3M4与CPPs偶联后在活性与安全性上的综合优势,为其开发成为新型抗菌制剂或替抗饲料添加剂奠定了良好基础。
需要说明的是,在对比不同抗菌肽抑菌活性时,浓度单位的选择对结果解读至关重要,当受试抗菌肽分子质量存在较大差异时尤为明显。质量浓度(μg/mL)会因分子质量不同造成活性分子数量不对等,摩尔浓度(μmol/L)则能够直接表征活性分子数量,更适用于从化学计量角度分析抗菌肽与细菌的相互作用[28]。本研究主要考察偶联CPPs前后的活性变化,由于比较对象分子质量相近,无论以摩尔浓度还是质量浓度表示,其活性变化趋势基本一致。

4 结论

本研究证实入胞抗菌肽C3M4-CPP可在重组毕赤酵母中高效分泌表达,纯化产物具备良好广谱抗菌活性与稳定性,具备开发为新型抗菌制剂或饲料添加剂的潜力。
[1]
MCCLURE E E, CHÁVEZ A S O, SHAW D K, et al. Engineering of obligate intracellular bacteria:progress,challenges and paradigms[J]. Nature Reviews Microbiology, 2017, 15(9):544-558.

DOI

[2]
BAINDARA P. Antimicrobial peptides:an emerging hope in the era of new infections and resistance[J]. Antibiotics, 2025, 14(6):546.

DOI

[3]
ZHANG K Y, LI X, YU C, et al. Promising therapeutic strategies against microbial biofilm challenges[J]. Frontiers in Cellular and Infection Microbiology, 2020, 10:359.

DOI PMID

[4]
PATYRA E, KWIATEK K. Insect meals and insect antimicrobial peptides as an alternative for antibiotics and growth promoters in livestock production[J]. Pathogens, 2023, 12(6):854.

DOI

[5]
KUMAR P, KIZHAKKEDATHU J N, STRAUS S K. Antimicrobial peptides:diversity,mechanism of action and strategies to improve the activity and biocompatibility in vivo[J]. Biomolecules, 2018, 8(1):4.

DOI

[6]
HADJICHARALAMBOUS A, BOURNAKAS N, NEWMAN H, et al. Antimicrobial and cell-penetrating peptides:understanding penetration for the design of novel conjugate antibiotics[J]. Antibiotics, 2022, 11(11):1636.

DOI

[7]
INOUE G, TOYOHARA D, MORI T, et al. Critical side chain effects of cell-penetrating peptides for transporting oligo peptide nucleic acids in bacteria[J]. ACS Applied Bio Materials, 2021, 4(4):3462-3468.

DOI PMID

[8]
NG W N I, KALIMUTHU S, LAW C O K, et al. Intracellular bacterial eradication using a novel peptide in vitro[J]. International Endodontic Journal, 2023, 56(11):1360-1372.

DOI

[9]
刘思佳, 徐晓东, 姜宁, 等. 噬菌体展示技术筛选羊小肠上皮细胞穿透肽[J]. 动物营养, 2023, 35(9):6033-6041.

LIU S J, XU X D, JIANG N, et al. Screening of sheep small intestinal epithelial cell-penetrating peptides by phage display technology[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):6033-6041. (in Chinese)

[10]
姜宁, 张晨雪, 张爱忠, 等. 一种细胞穿透肽、入胞抗菌肽及其应用:CN202310750359.X[P].2023-06-25.

JIANG N, ZHANG C X, ZHANG A Z, et al. A cell-penetrating peptide/intracellular antimicrobial peptide and its application:CN202310750359.X[P].2023-06-25. (in Chinese)

[11]
ZHOU L L, LIAN K Q, WANG M T, et al. The antimicrobial effect of a novel peptide LL-1 on Escherichia coli by increasing membrane permeability[J]. BMC Microbiology, 2022, 22(1):220.

DOI

[12]
ZHAO Z H, ZHANG C X, LI J, et al. Effect of tandem repeats of antimicrobial peptide CC34 on production of target proteins and activity of Pichia pastoris[J]. Protein Expression and Purification, 2023, 212:106342.

DOI

[13]
ZHAN N, ZHANG L C, YANG H, et al. Design and heterologous expression of a novel dimeric LL37 variant in Pichia pastoris[J]. Microbial Cell Factories, 2021, 20(1):143.

DOI

[14]
WANG S S, LV X X, ZHAO Z, et al. Expression of Ietalurus punetaus β-defensin based on recombinant Pichia pastoris[J]. Chinese Journal of Biotechnology, 2020, 36(8):1590-1599.

[15]
LAI W S, KAN S C, LIN C C, et al. Antibacterial peptide CecropinB2 production via various host and construct systems[J]. Molecules, 2016, 21(1):103.

DOI

[16]
RANA M S, WANG X Y, BANERJEE A. An improved strategy fluorescent tagging of membrane proteins for overexpression and purification in mammalian cells[J]. Biochemistry, 2018, 57(49):6741-6751.

DOI

[17]
刘威, 王玉莲, 王林, 等. LfcinB与EGFP融合蛋白在毕赤酵母中的胞内表达与分离纯化[J]. 现代食品科技, 2024, 40(12):67-74.

LIU W, WANG Y L, WANG L, et al. Intracellular expression,isolation and purification of LfcinB and EGFP fusion protein in Pichia pastoris[J]. Modern Food Science and Technology, 2024, 40(12):67-74. (in Chinese)

[18]
HALDER S, JAISWAL N, BALAJEE S C, et al. Efficient production of a novel recombinant fusion protein of EIEC effector IpaD and EGFP:biophysical characterization and functional studies[J]. Biochimica et Biophysica Acta:Proteins and Proteomics, 2025, 1873(4):141066.

DOI

[19]
ZHU Y H, LI Y W, FANG Y X, et al. Boosting expression of a specifically targeted antimicrobial peptide K in Pichia pastoris by employing a 2A self-cleaving peptide-based expression system[J]. Antibiotics, 2024, 13(10):986.

DOI

[20]
BATMAN S G, KESMEN Z. Recombinant expression and functional characterization of defensin-like peptide TEWP and its analogs in Pichia pastoris[J]. World Journal of Microbiology and Biotechnology, 2025, 41(10):392.

DOI

[21]
DU R L, HUNG C H, LEUNG A S L, et al. Development of broad-spectrum antimicrobial peptides through the conjugation of FtsZ-binding and cell-penetrating peptides[J]. ACS Infectious Diseases, 2025, 11(8):2190-2204.

DOI

[22]
田宛鑫, 李红岩, 许万鑫, 等. 入胞抗菌肽对羔羊肠道屏障功能的影响[J]. 动物营养学报, 2025, 37(8):5371-5381.

DOI

TIAN W X, LI H Y, XU W X, et al. Effects of intracellular antimicrobial peptide on intestinal barrier function of lambs[J]. Chinese Journal of Animal Nutrition, 2025, 37(8):5371-5381. (in Chinese)

DOI

[23]
何文浩, 许万鑫, 田宛鑫, 等. 入胞抗菌肽对羔羊免疫器官指数、抗氧化及免疫功能的影响[J]. 中国畜牧杂志, 2025, 61(9):363-369.

HE W H, XU W X, TIAN W X, et al. Effects of intracellular antimicrobial peptide on immune organ index,antioxidant and immune function of lambs[J]. Chinese Journal of Animal Science, 2025, 61(9):363-369. (in Chinese)

[24]
LEE H, LIM S I, SHIN S H, et al. Conjugation of cell-penetrating peptides to antimicrobial peptides enhances antibacterial activity[J]. ACS Omega, 2019, 4(13):15694-15701.

DOI PMID

[25]
DICKSON J M J, LEE W J, SHEPHERD P R, et al. Enzyme activity effects of N-terminal his-tag attached to catalytic sub-unit of phosphoinositide-3-kinase[J]. Bioscience Reports, 2013, 33(6):e00079.

DOI

[26]
ZHANG K, YANG N, TENG D, et al. Expression and characterization of the new antimicrobial peptide AP138L-arg26 anti Staphylococcus aureus[J]. Applied Microbiology and Biotechnology, 2024, 108(1):111.

DOI

[27]
HUO S C, CHEN C, LYU Z, et al. Overcoming planktonic and intracellular Staphylococcus aureus-associated infection with a cell-penetrating peptide-conjugated antimicrobial peptide[J]. ACS Infectious Diseases, 2020, 6(12):3147-3162.

DOI

[28]
WANG Z L, TENG D, MAO R Y, et al. A cleavable chimeric peptide with targeting and killing domains enhances LPS neutralization and antibacterial properties against multi-drug resistant E. coli[J]. Communications Biology, 2023, 6(1):1170.

DOI

Outlines

/