RESEARCH PAPER

Isolation and Identification of Lactic Acid Bacteria from Calves and Their Probiotic Properties in Vitro

  • LI Yuanyuan , 1 ,
  • LI Xin 2 ,
  • HE Zechun 2 ,
  • ZHANG Wenju , 1, *
Expand
  • 1 College of Animal Science and Technology, Shihezi University, Shihezi 832000, China
  • 2 College of Life Sciences, Shihezi University, Shihezi 832000, China
* professor, E-mail:

Received date: 2023-08-11

  Online published: 2024-01-12

Abstract

The purpose of this study was to screen Lactobacillus reuteri and Lactobacillus johnsonii with excellent probiotic properties, and to lay a theoretical basis for the development and utilization of probiotics in the later stage. In this experiment, the rectal feces of weaned Chinese Holstein calves after fecal microbiota transplantation were used as the source of strain isolation. Lactic acid bacteria were isolated and purified by MRS solid medium containing calcium carbonate, and 14 strains of Lactobacillus reuteri and 1 strain of Lactobacillus johnsonii were isolated and identified by physiological and biochemical and 16S rDNA sequencing. The probiotic properties were evaluated by acid production, acid and bile salt resistance, hydrophobicity, antibacterial ability and antibiotic sensitivity tests. The results showed that each strain had good acid production ability. After 24 h of culture, the pH in the bacterial solution was concentrated between 4.0 and 4.5. When pH was 4, the survival rate of each strain was more than 80%. In 0.3% bile salt environment, the survival rate of each strain was more than 75%, and the survival rates of L81 and L29 were higher, which were 88.40% and 86.87%, respectively. In terms of hydrophobicity, the hydrophobic rates of L29, L39, L65, L74, L81, L102, L107, L116 and L120 were all above 55%, showing good hydrophobicity. All the 15 strains showed certain antibacterial effects, among which L10 and L81 had better antibacterial effects on Staphylococcus aureus, Escherichia coli and Salmonella. L29, L35 and L81 showed higher sensitivity to at least three of the five antibiotics than the other strains. In summary, the 14 strains of Lactobacillus reuteri and 1 strain of Lactobacillus johnsonii screened in this experiment have good probiotic properties, especially Lactobacillus reuteri L81 and Lactobacillus johnsonii L29, which can be used as backup strains for subsequent development of bovine lactic acid bacteria probiotics.

Cite this article

LI Yuanyuan , LI Xin , HE Zechun , ZHANG Wenju . Isolation and Identification of Lactic Acid Bacteria from Calves and Their Probiotic Properties in Vitro[J]. Chinese Journal of Animal Nutrition, 2024 , 36(1) : 626 -636 . DOI: 10.12418/CJAN2024.056

近年来,随着抗生素的长期使用和滥用,抗生素药物残留、细菌耐药性增加及食品安全等问题日益突出[1-2]。1986年起,多个欧盟成员国已相继开始禁止在饲料中使用促生长性抗生素,2006年欧盟全面禁止饲料中使用抗生素。2016年,我国发改委在有关文件中明确提出要加强饲用抗生素替代品的研发和使用。2020年7月1日起,我国饲料厂停止生产含促生长类药物(不包括中药)的商业饲料。从此,我国正式迈入饲料“禁抗”时代。
越来越多研究表明,益生菌具有提高动物生长性能、调节肠道微生物群落组成及激活宿主机体免疫力等多项生理功能,目前正在作为抗生素替代品被多国关注[3-4]。随着益生菌研发的不断深入,乳酸菌、酵母菌和芽孢杆菌成为畜禽养殖应用的主要菌种类型。本实验组前期试验研究发现,以新疆牦牛为粪菌移植供体、以中国荷斯坦犊牛为粪菌移植受体进行粪菌移植,低浓度菌液灌服处理可降低受体犊牛断奶腹泻率和腹泻指数;且与对照组相比较,罗伊氏乳杆菌(Lactobacillus reuteri)和约氏乳杆菌(Lactobacillus johnsonii)在低浓度粪菌移植组中较为富集。有研究表明,罗伊氏乳杆菌可以显著降低动物和人类腹泻发生率或减轻腹泻的严重程度,可以通过产生乳酸、罗伊氏素等多种抗菌物质来抑制病原体的入侵,并通过影响细胞因子的生成刺激或抑制先天性免疫,还可以上调肠道紧密连接蛋白的表达来维持肠道上皮屏障功能的完整性[5-7]。约氏乳杆菌在提升机体免疫力,改善肠道屏障功能,促进有益菌的定植方面发挥着重要作用[8-9]
为开发出更有效的可以促进犊牛肠道健康、改善犊牛断奶腹泻及生长性能的益生菌,本研究拟从低浓度粪菌移植后的断奶犊牛粪便中对约氏乳杆菌和罗伊氏乳杆菌进行筛选,通过菌落和菌体形态观测、菌株产酸能力、对低pH和高浓度胆盐的耐受性、对病原菌的拮抑制作用及对抗生素的敏感性等体外益生指标的测定筛选出安全性和有效性较高的菌株,以期为饲用微生态制剂的研发提供参考。

1 材料与方法

1.1 试验材料

1.1.1 样品采集

本试验在新疆天山军垦牧业有限责任公司振兴牛场进行。选取日龄和体重相近的中国荷斯坦犊牛10头,以断奶后新疆牦牛为粪菌移植供体、以中国荷斯坦犊牛为受体,参考Hu等[10]报道的方法,在犊牛断奶前10 d隔天进行粪菌移植;犊牛60日龄断奶,并分别在断奶后第5天、第10天、第15天和第20天采集直肠粪便于无菌冻存管中,快速置于液氮中进行保存,运输到石河子大学动物科技学院实验室,于-80 ℃下进行储存备用。

1.1.2 培养基及主要试剂

MRS琼脂培养基、MRS液体培养基、革兰氏染色试剂盒和牛胆盐均购自北京索莱宝科技有限公司;指示菌金黄色葡萄球菌、沙门氏菌和大肠杆菌由本实验室保藏,定期传代;青霉素、链霉素、庆大霉素、卡那霉素和氧氟沙星均购自上海紫一试剂厂。

1.2 试验方法

1.2.1 牛源乳酸菌的分离纯化

称取1 g左右的犊牛粪便用10 mL灭菌生理盐水稀释,在37 ℃摇床上充分振荡,混合均匀后静置30 min。混合液按照10-2、10-3、10-4、10-5、10-6和10-7梯度稀释,取100 μL各梯度稀释液涂布于MRS琼脂培养基(含有2 g/dL的碳酸钙)上进行分离纯化,在37 ℃的恒温培养箱中培养36 h。选择溶钙圈较大、白色圆形、饱满凸起且边缘光滑的菌落划线培养,直至菌落单一典型。挑取单一菌落进行革兰氏染色镜检,所有形态与乳酸菌相似、革兰氏染色后呈紫色的均被归类为潜在的益生菌菌落。待细菌再次培养纯净后选择接种于MRS液体培养液中进行扩增培养,一部分加入40%甘油冻存,另一部分进行菌株鉴定。

1.2.2 16S rDNA菌种鉴定

将初筛纯化的菌种保存液充分活化后离心,收集菌体,按照细菌DNA提取试剂盒方法提取菌体DNA,以提取DNA为模板,PCR扩增16S rDNA基因片段,扩增产物经1%的琼脂糖凝胶电泳检测,由上海美吉生物医药科技有限公司进行测序和菌株鉴定。PCR引物序列为16S-F,5'-AGAGTTTGATCCTGGCTCAG-3';16S-R,5'-GGTTACCTTGTTACGACTT-3'。PCR扩增反应程序为95 ℃初始变性5 min;95 ℃变性30 s;55 ℃退火30 s;72 ℃延伸90 s;25个循环;72 ℃总延伸10 min。

1.2.3 产酸能力测定

将冻存的经1.2.2中鉴定出的罗伊氏乳杆菌和约氏乳杆菌复苏后,接种于MRS琼脂培养基中。挑取琼脂板表面单个菌落接种于MRS液体培养基中,37 ℃振荡培养36 h后8 000×g离心2 min后收集沉淀,并以1%(体积分数)分别接种在MRS液体培养基中37 ℃恒温培养36 h后,以1%的剂量接种到新的MRS液体培养基中。分别在培养0、4、8、12、16、20和24 h时测量1次pH,每个时间点设置3个重复。以培养时间为横坐标,pH为纵坐标,绘制产酸曲线。

1.2.4 耐酸性能测定

用1 mol/L的盐酸(HCl)将MRS培养基的pH分别调整至2.5、4.0和6.0,参照1.2.3中的方法收集菌体沉淀,将各菌株按1%的接种量分别接种于不同pH的培养基中,以未调节pH的培养基为空白对照,37 ℃下恒温培养4 h。分别在培养1、2、3和4 h时,取样,于600 nm波长下测定各组菌液的吸光度(OD)值,每个处理设置3个重复,计算菌株存活率。

存活率(%)=100×试验组OD600/对照组OD600

1.2.5 耐胆盐性能测定

参照1.2.3中的方法,将1%的细菌培养物分别接种到胆盐终浓度为0.1%、0.2%、0.3%、0.4%和0.5%的已高压灭菌的MRS液体培养基中,以不含胆盐的MRS液体培养基作为空白对照组,每个处理设置3个重复,37 ℃下恒温培养8 h后,于600 nm波长下测定各组菌液的OD值,计算菌株存活率,计算公式同1.2.4。

1.2.6 疏水性能测定

采用二甲苯萃取法测定分离株的疏水性能。将候选菌株过夜培养后,3 000×g离心10 min,弃去上清液,用磷酸盐缓冲液(PBS)洗涤2次。以一定比例将菌液与PBS混合,使混合溶液在600 nm的波长下OD值在0.8左右,记为A0;将约2 mL的细胞悬液与1 mL二甲苯混合,在37 ℃下孵育2 h,去除有机相,在600 nm处测定水相的OD值,记为At。每个试验重复3次,计算菌株疏水率。

疏水率(%)=100×(A0-At)/A0

1.2.7 菌株抑菌性能测定

将候选菌株经MRS液体培养基37 ℃恒温培养48 h后8 000×g离心2 min,弃掉上清液,随后用PBS洗涤沉淀,调节菌液浓度约为1×10⁸ CFU/mL。将指示菌株金黄色葡萄球菌、大肠杆菌和沙门氏菌37 ℃恒温培养24 h后,调节菌液浓度约为1×10⁸ CFU/mL,分别吸取1 mL指示菌液至无菌培养皿中,而后用MRS固体培养基倾注摇匀,待凝固干燥后,应用牛津杯法分别检测各菌株对致病性菌株的抗菌活性强度,具体为将无菌牛津杯从中间以等距离均匀摆放,向杯内分别滴加0.2 mL各菌株菌液,静置放置2 h,37 ℃恒温培养24 h。采用游标卡尺测定抑菌圈直径,以抑菌圈的大小判断菌株抑制病原指示菌的能力。

1.2.8 抗生素敏感性试验

为了评估候选菌株对抗生素的敏感性,本试验采用纸片扩散法对各菌株进行了抗生素敏感性试验。将各待测菌株制备成浓度为1×10⁶ CFU/mL的菌悬液,取50 μL分别涂布于MRS固体培养基上。用镊子分别将青霉素、链霉素、庆大霉素、卡那霉素和氧氟沙星药敏片小心置于MRS琼脂平板上,随后在37 ℃下恒温孵育24 h,测量并记录抑制区直径。

1.3 数据统计分析

试验所得数据在Excel 2016中进行整理后,使用SPSS 26.0进行单因素方差分析(one-way ANOVA)及Duncan氏法多重比较,试验结果以“平均值±标准差”表示,P<0.05为差异显著。

2 结果与分析

2.1 牛源乳酸菌的分离纯化

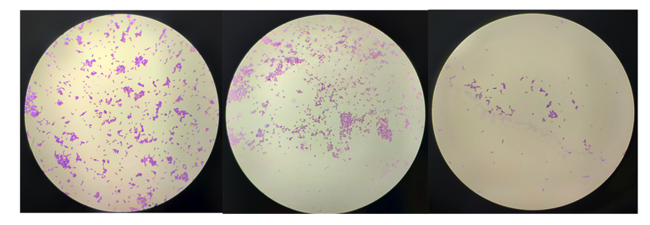
本试验共分离纯化得到24株杆状、革兰氏染色为阳性的单菌落菌株,部分菌株的革兰氏染色结果如图1所示。
图1 部分菌株革兰氏染色结果

Fig.1 Gram staining results of some strains

2.2 16S rDNA测序鉴定

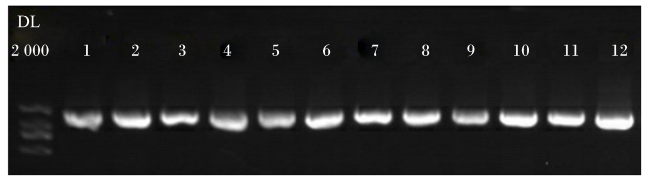
对2.1中24株革兰氏染色为阳性的菌株进行DNA提取,经PCR扩增后得到片段大小均在1 500 bp左右处的一条荧光带,荧光带无明显拖尾,符合测序要求,部分菌株的PCR扩增电泳图如图2所示。对PCR扩增产物进行测序,序列进行质控去除低质量的碱基后进行拼接获得组装序列,与核酸序列(NT)数据库进行BLAST序列对比,根据相似度确定得到14株罗伊氏乳杆菌和1株约氏乳杆菌,结果如表1所示。
图2 部分菌株的DNA电泳图

Fig.2 DNA electrophoresis of some strains

表1 菌株形态学、生化试验分析及物种鉴定结果

Table 1 Strain morphology, biochemical test analysis and species identification results

菌株编号
Strain number
细胞形态
Cell morphology
革兰氏染色
Gram stain
NT数据库比对结果
NT database alignment results
L09 rod + Lactobacillus casei
L10 rod + Lactobacillus reuteri
L15 rod + Lactobacillus reuteri
L23 rod + Lactobacillus reuteri
L29 rod + Lactobacillus johnsonii
L35 rod + Lactobacillus reuteri
L39 rod + Lactobacillus reuteri
L37 rod + Lactobacillus casei
L38 rod + Lactobacillus casei group sp.
L39 rod + Lactobacillus casei group sp.
L57 rod + Lactobacillus reuteri
L65 rod + Lactobacillus reuteri
L74 rod + Lactobacillus reuteri
L81 rod + Lactobacillus reuteri
L101 rod + Lactobacillus reuteri
L102 rod + Lactobacillus reuteri
L107 rod + Lactobacillus reuteri
L109 rod + Lactobacillus casei
L113 rod + Lactobacillus plantarum
L116 rod + Lactobacillus reuteri
L117 rod + Lactobacillus paracasei
L120 rod + Lactobacillus reuteri
L121 rod + Lactobacillus plantarum
L123 rod + Lactobacillus plantarum

rod:杆状;+:阳性 positive;Lacticaseibacillus casei:干酪乳杆菌;Lactobacillus reuteri:罗伊氏乳杆菌;Lactobacillus johnsonii:约氏乳杆菌;Lactobacillus plantarum:植物乳杆菌;Lactobacillus paracasei:副干酪乳杆菌。

2.3 产酸能力测定试验结果

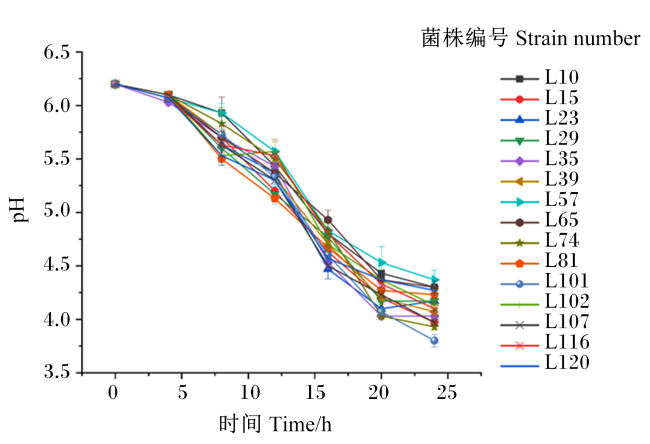
罗伊氏乳杆菌和约氏乳杆菌各菌株产酸能力如图3所示。整体分析,0~4 h时,各菌株产酸能力较弱,代谢缓慢,乳酸菌处于适应期;4~20 h时,各菌株产酸能力增强,产酸较多,代谢加快,pH下降迅速。其中,L29、L81和L120在4~12 h的产酸速度较其他菌株快;培养24 h后,各菌株培养液pH集中在4.0~4.5。
图3 罗伊氏乳杆菌和约氏乳杆菌产酸曲线

Fig.3 Acid production curves of Lactobacillus reuteri and Lactobacillus johnsonii

2.4 耐酸性能测定试验结果

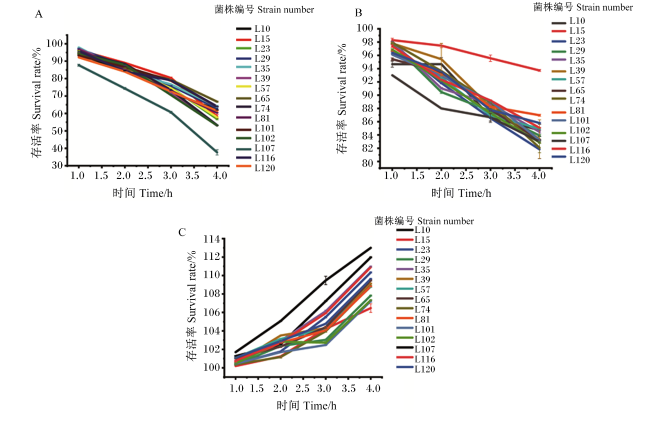
菌株对胃酸的耐受性是评价菌株是否具有益生菌潜力的重要指标。对分离出的罗伊氏乳杆菌和约氏乳杆菌进行耐酸性能测定,结果如图4所示。在pH 2.5的环境中,随着培养时间的延长,菌株存活率呈降低趋势;培养4 h后,L10、L29、L35、L65、L81、L101、L116和L120的存活率在60%左右,高于其他菌株。在pH为4.0时,所有菌株的存活率均超过80%,其中L15的存活率最高。在pH为6.0时,各菌株存活率均达到100%以上,具有较好的胃酸耐受性。
图4 罗伊氏乳杆菌和约氏乳杆菌在不同pH条件下的耐受能力

图A、图B和图C分别为15株菌株在pH 2.5、4.0和6.0中的存活率。

Fig.4 Tolerance of Lactobacillus reuteri and Lactobacillus johnsonii to different pH

Fig.A, Fig.B and Fig.C represented survival rates of 15 strains in pH 2.5, 4.0 and 6.0, respectively.

2.5 耐胆盐性能测定试验结果

罗伊氏乳杆菌和约氏乳杆菌对胆盐的耐受性试验结果如表2所示,随着胆盐浓度的提高,各菌株存活率有所下降。在0.1%的胆盐环境中,各菌株的存活率可达到90%,其中L29、L35、L57、L81和L120的存活率显著高于L10、L15、L39、L74、L101和L116(P<0.05)。在0.2%的胆盐环境中,各菌株的存活率均在80%以上,其中L29和L81的存活率与L65无显著差异(P>0.05),但显著高于其他菌株(P<0.05)。在0.3%的胆盐中,L29、L35、L65、L81和L120的存活率高于其他菌株(P<0.05),存活率均在85%以上。与在0.3%的胆盐中的存活率相比较,L15、L74和L107在0.4%的胆盐中的存活率下降明显。在0.5%的胆盐环境中,L29、L35和L81的菌株存活率在70%左右,优于其他菌株。总体而言,在含有胆盐的MRS液体培养液中,15株菌株均具有一定的活性,L29、L35和L81具有较好的胆盐耐受性。
表2 罗伊氏乳杆菌和约氏乳杆菌在不同浓度胆盐下的存活率

Table 2 Survival rates of Lactobacillus reuteri and Lactobacillus johnsonii under different concentrations of bile salt%

菌株编号
Strain number
胆盐浓度Bile salt concentrations/%
0.1 0.2 0.3 0.4 0.5
L10 90.97±0.15b 87.37±0.38c 81.10±0.35b 63.50±0.20cdef 60.80±0.35be
L15 91.53±1.14b 87.13±0.50cd 82.13±1.43abc 55.97±0.57d 31.90±0.10e
L23 96.57±0.35ab 90.23±0.25bc 83.50±0.70ab 67.27±1.25c 53.77±0.55ce
L29 97.60±0.26a 93.23±0.21a 86.87±0.75a 79.43±0.49abc 72.07±0.91a
L35 97.00±0.10a 90.60±0.10bc 85.90±0.46a 76.33±0.25b 68.80±0.53ab
L39 90.63±0.45b 82.47±0.31de 79.13±0.32b 69.80±0.26c 59.33±0.15bce
L57 95.50±0.26a 89.47±0.38bc 80.97±0.42b 75.83±0.25b 64.03±0.86b
L65 96.30±0.43ab 91.50±0.10ab 85.57±0.38a 78.63±0.42abc 67.03±0.61ab
L74 93.70±0.35b 80.67±0.25e 68.03±0.32c 50.77±0.42e 45.90±0.50de
L81 96.73±0.12a 93.70±0.26a 88.40±0.52a 80.90±0.26a 71.87±0.23abe
L101 92.53±0.45b 88.23±0.21c 81.83±0.12ab 69.77±0.61c 50.33±0.32cde
L102 93.57±0.40b 85.37±0.06cde 80.37±0.38b 71.53±0.12c 66.83±0.49abe
L107 96.70±0.44ab 89.37±0.12bc 75.43±0.06b 38.93±1.07f 27.90±2.17e
L116 89.33±0.06b 82.37±0.38de 79.13±0.21b 69.63±0.47cd 59.83±0.55be
L120 96.93±0.15a 91.37±0.21b 85.97±0.23a 78.90±0.44abc 66.83±0.15abe

同列数据肩标不同字母表示差异显著(P<0.05)。下表同。

Values in the same column with different letter superscripts indicated significant difference (P<0.05). The same as below.

2.6 疏水性能测定结果

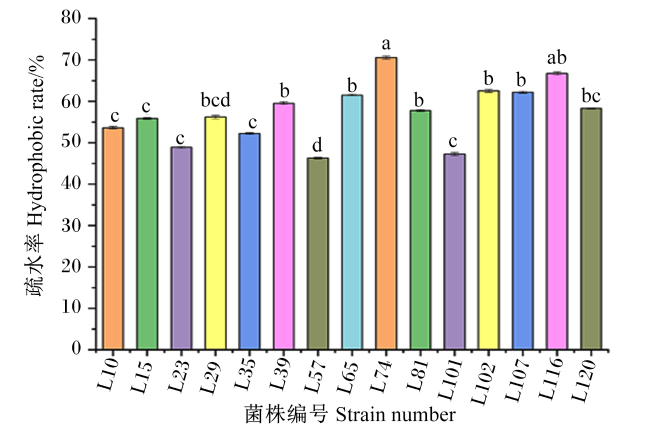
15株罗伊氏乳杆菌和约氏乳杆菌的疏水性能如图5所示。各菌株的疏水性能不同,但疏水率均超过45%,其中L74的疏水率最高,与L116无显著差异(P>0.05),但显著高于其他菌株(P<0.05)。其次疏水性较好的菌株为L29、L39、L65、L81、L102、L107和L120,疏水率均在55%以上。
图5 罗伊氏乳杆菌和约氏乳杆菌的疏水性能

数据柱形标注不同字母表示差异显著(P<0.05)。

Fig.5 Hydrophobicity of Lactobacillus reuteri and Lactobacillus johnsonii

Value columns with different letter superscripts indicated significant difference (P<0.05).

2.7 菌株抑菌性能测定试验结果

对分离出的15株菌株对3种常见指示性病原菌的抑制作用进行评价,结果如表3所示。罗伊氏乳杆菌和约氏乳杆菌对指示菌金黄色葡萄球菌、沙门氏菌和大肠杆菌均表现出了抑制作用。其中,L107对金黄色葡萄球菌抑制作用最强,显著高于其他菌株(P<0.05);其次为L10、L23、L35、L39、L81、L101和L116。L81对大肠杆菌的抑制作用显著强于其他菌株(P<0.05),其次为L65和L74。L57对沙门氏菌表现出较好的抑制作用,而L101对沙门氏菌的抑制效果低于其他菌株。
表3 罗伊氏乳杆菌和约氏乳杆菌对致病菌的抑菌圈直径

Table 3 Inhibition zone diameters of Lactobacillus reuteri and Lactobacillus johnsonii against pathogenic bacteriamm

菌株编号
Strain number
金黄色葡萄球菌
Staphylococcus aureus
大肠杆菌
Escherichia coli
沙门氏菌
Salmonella
L10 18.80±0.12bcd 16.10±0.17c 21.77±0.23a
L15 16.23±0.06d 13.43±0.12d 15.27±0.29b
L23 20.20±0.00b 10.50±0.00dfg 14.40±0.00b
L29 16.50±0.35cde 15.00±0.35cdefg 11.23±0.29bc
L35 17.07±0.06b 10.60±0.00dfg 17.70±0.00ab
L39 19.63±0.12b 9.17±0.06g 10.17±0.06bc
L57 15.67±0.40de 9.57±0.23fg 22.97±0.58a
L65 14.03±0.29de 16.90±0.35bcdfg 13.13±0.29b
L74 13.00±0.17e 17.60±0.17b 14.60±0.17b
L81 19.70±0.17bc 19.53±0.12a 13.03±0.12b
L101 18.40±0.29bcd 15.17±0.23cde 8.70±0.17c
L102 15.60±0.00de 10.83±0.06e 15.83±0.12ab
L107 22.23±0.12a 13.37±0.06d 19.53±0.12ab
L116 17.93±0.12bc 9.97±0.06f 11.97±0.06b
L120 15.13±0.29de 12.27±0.23defg 15.73±0.29b

2.8 抗生素敏感性试验结果

益生菌对抗生素敏感与否关系到人类健康,本试验分离出的罗伊氏乳杆菌和约氏乳杆菌对抗生素的敏感性试验结果如表4所示。分离菌株对链霉素、卡那霉素、庆大霉素、氧氟沙星和青霉素这5种抗生素均表现出一定的敏感性。其中,L29和L74对链霉素较为敏感,其次为L35、L65、L81和L102。L23、L35和L39对卡那霉素的敏感性较高,且三者无显著差异(P>0.05),其次敏感性较高的菌株为L29、L57和L102。L10、L35、L57、L65、L81、L101、L102和L120对庆大霉素的敏感性较高,以上各菌株间差异不显著(P>0.05)。L29对氧氟沙星的敏感性显著高于其他菌株(P<0.05)。L29、L39、L74、L81和L101对青霉素的敏感性显著高于除L15和L116外的其他菌株(P<0.05)。
表4 罗伊氏乳杆菌和约氏乳杆菌对抗生素敏感性直径

Table 4 Antibiotic sensitivity diameters of Lactobacillus reuteri and Lactobacillus johnsoniimm

菌株编号
Strain number
链霉素
Streptomycin
卡那霉素
Kanamycin
庆大霉素
Gentamicin
氧氟沙星
Ofloxacin
青霉素
Penicillin
L10 15.23±0.12c 13.70±0.20ef 15.70±0.17abc 10.80±0.00cd 13.27±0.06bc
L15 13.03±0.45cde 11.07±0.06g 10.13±0.06e 6.00±0.00f 18.60±0.26abce
L23 14.47±0.06d 21.00±0.17ab 11.60±0.10d 10.33±0.06cd 17.57±0.23b
L29 19.00±0.17ab 17.60±0.00bcd 11.80±0.10d 12.80±0.17a 22.00±0.17a
L35 18.30±0.17b 20.60±0.26abcd 15.70±0.10ab 7.00±0.00df 12.67±0.15cde
L39 11.23±0.12d 21.40±0.20a 13.33±0.06c 12.67±0.12c 21.57±0.06a
L57 12.03±0.12d 18.57±0.21bcd 15.87±0.15ab 12.70±0.20b 13.07±0.12c
L65 16.77±0.23bc 16.83±0.06c 16.30±0.20abc 9.83±0.12d 10.83±0.06de
L74 20.00±0.10a 15.80±0.17de 13.77±0.25bcde 12.70±0.17bc 18.77±0.25a
L81 18.97±0.12b 15.40±0.17de 14.10±0.17abcd 11.70±0.10c 24.63±0.21a
L101 15.20±0.17c 13.17±0.12f 16.30±0.10ab 6.77±0.06ef 18.83±0.21a
L102 18.87±0.06b 19.63±0.15b 14.47±0.06ab 10.40±0.10cd 10.20±0.10e
L107 9.67±0.32de 16.23±0.06d 11.57±0.06d 7.67±0.15de 12.60±0.00cde
L116 9.53±0.32de 13.33±0.15ef 12.93±0.06c 10.77±0.06c 17.90±0.17abce
L120 10.87±0.06d 14.30±0.01e 13.90±0.00abc 9.00±0.10d 17.10±0.26b

3 讨论

我国农业农村部第318号公告《饲料添加剂品种目录》中公布了15种可直接在动物饲料中添加的微生物种类,乳酸菌为其中之一。罗伊氏乳杆菌和约氏乳杆菌是我国卫生健康委员会等相关部门批准的可食用乳酸菌菌种,它们在维持肠道屏障的完整性等方面起着积极作用[11]。有研究指出,益生菌的作用具有菌株特异性[12],此外,不同动物消化道环境不同,同源性微生物制剂对宿主作用效果较优。因此,益生菌菌种资源的分离、筛选、安全性评价以及功能研究等仍是一项长期的战略性工作。本研究以接受粪菌移植后的荷斯坦犊牛直肠粪便为菌株分离源进行具有潜在益生特性的菌株的分离和筛选,获得15株目标菌株,并对其安全性和有效性进行了评价。

3.1 分离菌株产酸能力分析

有机酸是乳酸菌代谢主要产物,如乳酸、乙酸等,它们不仅可以降低胃肠道pH,还可以为有益菌菌群提供良好的生长环境,有效抑制某些病原菌在肠道中的定植,降低畜禽腹泻发生率和死亡率。有机酸产生能力是评价菌株是否具有益生菌潜在用途的重要指标[13]。在本研究中,随着菌株培养时间的延长,各菌株数量增多,代谢加快,其中L29、L81和L120菌株在4~12 h产酸速度较快,培养液中有机酸浓度升高。培养24 h后,各菌株所在培养液整体pH集中在4.0~4.5,表明各菌株产酸能力相当。

3.2 分离菌株耐酸性能分析

益生菌进入胃肠道后面临低pH的挑战,菌株能否顺利通过胃肠道特殊环境到达益生部位并保持活性是影响益生菌制剂能否发挥作用的一个关键因素。研究指出,不同来源的菌株对动物消化道适应性和耐受性不同[14]。在pH 3以下的环境中保持存活率通常被认为是益生菌菌株在体内保持活力所需的最低限度[15]。研究报道,猪源罗伊氏乳杆菌在pH 3~7时保持较好的存活率,在pH 2的环境中活力显著下降[16]。Aiba等[17]报道了1株以人胃液为分离源分离出的新菌株约氏乳杆菌No.1088,该菌株在pH 1.0的环境中培养2 h后,仍保持大于10%的存活率。本试验发现,罗伊氏乳杆菌和约氏乳杆菌在不同pH环境中均表现出有效的存活率,其中L10、L29、L35、L65、L81、L101、L116和L120菌株在pH 2.5的环境下存活率达60%,与前人报道具有相似性;在pH 4.0的环境下存活率均超过80%;在pH 6.0的环境下存活率均超过100%。1~2月龄犊牛小肠pH在5.0~8.2,此外,牛奶和可代谢糖的存在可为益生菌在胃肠道中的存活提供一定的保护[18],因此,推测以上菌株具有作为益生菌的潜力。

3.3 分离菌株胆盐耐受性分析

胆盐可随肝胆汁排到小肠,益生菌在动物机体中发挥作用除了耐受胃的酸性环境外,还需要耐受肠道中胆盐形成的高渗环境。对胆汁盐的耐受性对于乳酸菌在胃肠道运输过程中的生长、存活和功能至关重要,乳酸菌最常见的胆汁盐耐受机制是胆汁盐的主动流出和水解以及细胞膜和细胞壁组成的改变[19-21]。动物体内胆盐浓度通常在0.03%~0.30%波动,在生理浓度较低的情况下,它们对乳酸菌几乎没有致命性,然而所有暴露于生理相关胆汁酸浓度的乳酸菌菌株的生长速度都会适度减慢,这与本试验研究结果一致。多项研究指出,具有益生菌潜力的乳酸菌的胆盐耐受性平均浓度为0.3%[22-23]。在本试验中,分离出的乳酸菌菌株在孵育8 h后均能耐受0.3%的胆盐,相对于其他13株菌株,L29和L81胆盐耐受性更高,存活率分别为86.87%和88.40%,表明这两者具有良好的耐胆盐特性,适合在肠道中生长发酵。

3.4 分离菌株疏水性能分析

疏水性能是菌株作为益生菌候选菌筛选时的重要指标之一。细菌对于疏水性能的划分标准为:疏水率在20%以下为非疏水,在20%~50%为中度疏水,在50%以上为高度疏水[24]。益生菌的疏水性能直接反映了它们对肠上皮细胞细胞系的黏附能力[23]。研究表明,乳酸菌菌株的高疏水性与肠黏膜和上皮细胞之间高黏附能力呈正相关性[25]。当益生菌与上皮细胞黏附时才能较好的发挥益生作用。Zhang等[26]从荷斯坦牛生乳中分离出了疏水率在36%和70%以上的中等和较好疏水性能的乳酸菌。本研究结果显示,筛选出的15株菌株疏水率在45.0%~71.0%,均表现出良好的疏水性能,推测以上菌株对肠道黏膜具有较好的黏附能力。

3.5 分离菌株抑菌性能分析

前期研究表明,罗伊氏乳杆菌是一种典型的益生菌,对肠黏膜具有很强的黏附能力,可改善肠道菌群分布,拮抗有害菌在肠道中的定植,避免肠道疾病的发生[27-28]。乳酸菌可通过分泌不同的抗菌物质来维持其益生作用。罗伊氏菌素(reuterin)是罗伊氏乳杆菌的主要代谢产物之一,可以抑制有害菌如大肠杆菌、沙门氏菌等病原菌的生长,保护肠道的微生态平衡[29]。本试验结果表明,14株罗伊氏乳杆菌对金黄色葡萄球菌、大肠杆菌和肠炎沙门氏菌均表现出抑制作用,但因菌株不同,对病原体的抑制作用也不同。L81对大肠杆菌的抑制作用显著,对金黄色葡萄球菌和大肠杆菌表现出较好的抑菌特性。L107对金黄色葡萄球菌和沙门氏菌具有较好的抑菌特性,表明这此菌株有作为饲料益生菌添加剂抑制病原菌的潜在可能。约氏乳杆菌可以通过不同的作用机制发挥益生作用,如可以产生细菌素——乳酸菌素(lactacin)F,通过调节T细胞反应和内质网应激,改善沙门氏菌引起的肠道炎症[30]。本研究发现,约氏乳杆菌L29同样具有较好的抑菌作用,可以作为益生菌候选菌株进行研究。

3.6 分离菌株抗生素敏感性分析

抗生素耐药性给人类和动物健康以及食品安全带来潜在危害。抗生素敏感性是菌株能否作为饲料添加剂在生产中安全使用关键因素之一,菌株对抗生素的敏感性检测是目前和未来益生菌体外安全评估的一个重要环节[31]。有研究提出,益生菌菌株不能作为抗生素耐药基因库,因为这种耐药性有可能会转移给肠道病原菌[32]。本试验评价了分离出的15株乳酸菌对常见5种抗生素的敏感性,结果表明,菌株对大部分抗生素敏感,其中L29、L35和L81对5种抗生素中的至少3种表现出的敏感性要高于其他菌株,避免了菌株对抗生素耐药性的转移和持留[33],表明其对动物和环境较为安全。其中,L29和L81对青霉素较为敏感,因此,在生产应用过程中应避免与青霉素联合使用。
Yi等[34]从断奶仔猪粪便中分离出的罗伊氏乳杆菌LR1可以增加产肠毒素大肠杆菌K88感染的IPEC-1细胞中紧密连接蛋白的表达。蔡熙姮等[35]从蓝狐的肠道内容物中分离到1株约氏乳杆菌。研究指出,与异源益生菌相比较,同源益生菌不仅可以降低因来源不同可能产生的免疫风险,还具有定植能力强、快速适应动物肠道内环境和较好发挥益生作用等优势[36]。本研究从粪菌移植后犊牛断奶腹泻率较低且罗伊氏乳杆菌和约氏乳杆菌较为富集的犊牛直肠粪便中筛选出了具有潜在益生作用的14株罗伊氏乳杆菌和1株约氏乳杆菌,并对菌株各项体外益生特性指标进行了综合分析,这对针对犊牛断奶这一特殊时期肠道健康调控及牛养殖生产中益生菌的研发提供了理论基础。

4 结论

本试验从接受低浓度粪菌移植后的荷斯坦断奶犊牛直肠粪便中筛选出的14株罗伊氏乳杆菌和1株约氏乳杆菌具有较好的体外益生特性,尤其是罗伊氏乳杆菌L81和约氏乳杆菌L29菌株体外益生特性较为突出,具有较好的产酸能力以及耐酸和胆盐适应性,具有良好的疏水性,对大肠杆菌和金黄色葡萄球菌有着较好的体外抑制作用,对常见抗生素如青霉素、链霉素和氧氟沙星敏感性较好,具备开发为犊牛健康养殖中饲用微生态制剂的潜能。
[1]
BRAND P, GOBELI S, PERRETEN V. Pathotyping and antibiotic resistance of porcine enterovirulent Escherichia coli strains from Switzerland (2014-2015)[J]. Schweizer Archiv für Tierheilkunde, 2017, 159(7):373-380.

DOI

[2]
RADFORD R J. Antibiotic resistance-the need for global solutions[J]. British Dental Journal, 2014, 216(3):133.

[3]
KELSEY A J, COLPOYS J D. Effects of dietary probiotics on beef cattle performance and stress[J]. Journal of Veterinary Behavior, 2018, 27:8-14.

DOI

[4]
ZAMOJSKA D, NOWAK A, NOWAK I, et al. Probiotics and postbiotics as substitutes of antibiotics in farm animals:a review[J]. Animals, 2021, 11(12):3431.

DOI

[5]
YANG F J, WANG A N, ZENG X F, et al. Lactobacillus reuteri I5007 modulates tight junction protein expression in IPEC-J2 cells with LPS stimulation and in newborn piglets under normal conditions[J]. BMC Microbiology, 2015, 15:32.

DOI

[6]
张如春, 司华哲, 陈双双, 等. 罗伊氏乳杆菌在畜禽生产中应用的研究进展[J]. 动物营养学报, 2019, 31(3):1031-1036.

ZHANG R C, SI H Z, CHEN S S, et al. Research progress on application of Lactobacillus reuteri in livestock husbandry[J]. Chinese Journal of Animal Nutrition, 2019, 31(3):1031-1036. (in Chinese)

[7]
吴胜男, 胡胜兰, 蒋宗勇, 等. 罗伊氏乳杆菌调节肠黏膜屏障功能的作用及机制[J]. 动物营养学报, 2021, 33(9):4861-4869.

DOI

WU S N, HU S L, JIANG Z Y, et al. Role and mechanism of Lactobacillus reuteri in regulating intestinal mucosal barrier function[J]. Chinese Journal of Animal Nutrition, 2021, 33(9):4861-4869. (in Chinese)

[8]
张依, 王攀, 曹珺, 等. 约氏乳杆菌菌粉对断奶仔猪生产性能、免疫机能、肠道pH值及有机酸含量的影响[J]. 中国畜牧杂志, 2016, 52(23):64-68.

ZHANG Y, WANG P, CAO J, et al. Effects of Lactobacillus johnsonii on growth performance,immune function,intestinal pH and organic acid concentration in weaned pigs[J]. Chinese Journal of Animal Science, 2016, 52(23):64-68. (in Chinese)

[9]
ZHENG D Z, WANG Z R, SUI L, et al. Lactobacillus johnsonii activates porcine monocyte derived dendritic cells maturation to modulate Th cellular immune response[J]. Cytokine, 2021, 144:155581.

DOI

[10]
HU J, MA L B, NIE Y F, et al. A microbiota-derived bacteriocin targets the host to confer diarrhea resistance in early-weaned piglets[J]. Cell Host & Microbe, 2018, 24(6):817-832.e8.

[11]
LIU H Y, ROOS S, JONSSON H, et al. Effects of Lactobacillus johnsonii and Lactobacillus reuteri on gut barrier function and heat shock proteins in intestinal porcine epithelial cells[J]. Physiological Reports, 2015, 3(4):e12355.

DOI

[12]
JANKIEWICZ M, ŁUKASIK J, KOTOWSKA M, et al. Strain-specificity of probiotics in pediatrics:a rapid review of the clinical evidence[J]. Journal of Pediatric Gastroenterology and Nutrition, 2023, 76(2):227-231.

DOI

[13]
MARCHWIŃSKA K, GWIAZDOWSKA D. Isolation and probiotic potential of lactic acid bacteria from swine feces for feed additive composition[J]. Archives of Microbiology, 2021, 204(1):61.

DOI PMID

[14]
BAZIREH H, SHARIATI P, AZIMZADEH JAMALKANDI S, et al. Isolation of novel probiotic Lactobacillus and enterococcus strains from human salivary and fecal sources[J]. Frontiers in Microbiology, 2020, 11:597946.

DOI

[15]
KAILASAPATHY K, CHIN J. Survival and therapeutic potential of probiotic organisms with reference to Lactobacillus acidophilus and Bifidobacterium spp.[J]. Immunology & Cell Biology, 2000, 78(1):80-88.

[16]
DELL’ANNO M, CALLEGARI M L, REGGI S, et al. Lactobacillus plantarum and Lactobacillus reuteri as functional feed additives to prevent diarrhoea in weaned piglets[J]. Animals, 2021, 11(6):1766.

DOI

[17]
AIBA Y J, NAKANO Y, KOGA Y, et al. A highly acid-resistant novel strain of Lactobacillus johnsonii No. 1088 has antibacterial activity,including that against Helicobacter pylori,and inhibits gastrin-mediated acid production in mice[J]. MicrobiologyOpen, 2015, 4(3):465-474.

DOI

[18]
DAVOREN M J, LIU J, CASTELLANOS J, et al. A novel probiotic,Lactobacillus johnsonii 456,resists acid and can persist in the human gut beyond the initial ingestion period[J]. Gut Microbes, 2019, 10(4):458-480.

DOI

[19]
ALI M S, LEE E B, LIM S K, et al. Isolation and identification of Limosilactobacillus reuteri PSC102 and evaluation of its potential probiotic,antioxidant,and antibacterial properties[J]. Antioxidants, 2023, 12(2):238.

DOI

[20]
BAO Y, ZHANG Y C, ZHANG Y, et al. Screening of potential probiotic properties of Lactobacillus fermentum isolated from traditional dairy products[J]. Food Control, 2010, 21(5):695-701.

DOI

[21]
RUIZ L, MARGOLLES A, SÁNCHEZ B. Bile resistance mechanisms in Lactobacillus and Bifidobacterium[J]. Frontiers in Microbiology, 2013, 4:396.

[22]
GARCÍA-HERNÁNDEZ Y, PÉREZ-SÁNCHEZ T, BOUCOURT R, et al. Isolation,characterization and evaluation of probiotic lactic acid bacteria for potential use in animal production[J]. Research in Veterinary Science, 2016, 108:125-132.

DOI

[23]
REUBEN R C, ROY P C, SARKAR S L, et al. Isolation,characterization,and assessment of lactic acid bacteria toward their selection as poultry probiotics[J]. BMC Microbiology, 2019, 19(1):253.

DOI

[24]
吴雨晗, 吴婷, 涂健, 等. 一株安庆六白猪源乳酸菌的分离鉴定及生物特性研究[J]. 动物营养学报, 2022, 34(8):5415-5425.

DOI

WU Y H, WU T, TU J, et al. Isolation,identification and biological characteristics of a lactic acid bacteria from Anqing Liubai pigs[J]. Chinese Journal of Animal Nutrition, 2022, 34(8):5415-5425. (in Chinese)

[25]
TAHERI H R, MORAVEJ H, TABANDEH F, et al. Screening of lactic acid bacteria toward their selection as a source of chicken probiotic[J]. Poultry Science, 2009, 88(8):1586-1593.

DOI PMID

[26]
ZHANG L X, YANG Z, YANG M X, et al. Copper-induced oxidative stress,transcriptome changes,intestinal microbiota,and histopathology of common carp (Cyprinus carpio)[J]. Ecotoxicology and Environmental Safety, 2022, 246:114136.

DOI

[27]
QIN W Y, REN Z S, XU C, et al. Chromatin accessibility and transcriptional landscape during inhibition of Salmonella enterica by Lactobacillus reuteri in IPEC-J2 cells[J]. Cells, 2023, 12(6):968.

DOI

[28]
WU J M, LIN Z S, WANG X, et al. Limosilactobacillus reuteri SLZX19-12 protects the colon from infection by enhancing stability of the gut microbiota and barrier integrity and reducing inflammation[J]. Microbiology Spectrum, 2022, 10(3):e0212421.

DOI

[29]
SCHAEFER L, AUCHTUNG T A, HERMANS K E, et al. The antimicrobial compound reuterin (3-hydroxypropionaldehyde) induces oxidative stress via interaction with thiol groups[J]. Microbiology, 2010, 156(6):1589-1599.

DOI

[30]
YANG G Y, XIA B, SU J H, et al. Anti-inflammatory effects of Lactobacillus johnsonii L531 in a pig model of Salmonella Infantis infection involves modulation of CCR6+ T cell responses and ER stress[J]. Veterinary Research, 2020, 51(1):26.

DOI

[31]
GUEIMONDE M, ARBOLEYA S. Resistance of bifidobacteria toward antibiotics[J]. Methods in Molecular Biology, 2021, 2278:195-208.

DOI PMID

[32]
NALLALA V, SADISHKUMAR V, JEEVARATNAM K. Molecular characterization of antimicrobial Lactobacillus isolates and evaluation of their probiotic characteristics in vitro for use in poultry[J]. Food Biotechnology, 2017, 31(1):20-41.

DOI

[33]
CASTRO-GONZÁLEZ J M, CASTRO P, SANDOVAL H, et al. Probiotic lactobacilli precautions[J]. Frontiers in Microbiology, 2019, 10:375.

DOI

[34]
YI H B, WANG L, XIONG Y X, et al. Lactobacillus reuteri LR1 improved expression of genes of tight junction proteins via the MLCK pathway in IPEC-1 cells during infection with enterotoxigenic Escherichia coli K88[J]. Mediators of Inflammation, 2018, 2018:6434910.

[35]
蔡熙姮, 刘晗璐, 张如春, 等. 蓝狐源约氏乳杆菌菌株ZJBF004分离鉴定与体外益生潜能的评价[J]. 动物营养学报, 2020, 32(7):3313-3323.

DOI

CAI X H, LIU H L, ZHANG R C, et al. Isolation and identification of Lactobacillus johnsonii strain ZJBF004 from Alopex lagopus and its probiotic potential evaluation in vitro[J]. Chinese Journal of Animal Nutrition, 2020, 32(7):3313-3323. (in Chinese)

[36]
张如春, 崔焕忠, 蔡熙姮, 等. 狐源罗伊氏乳杆菌ZJF036益生特性研究[J]. 动物营养学报, 2020, 32(8):3819-3829.

DOI

ZHANG R C, CUI H Z, CAI X H, et al. Probiotic characteristics of Lactobacillus reuteri ZJF036 isolated from fox[J]. Chinese Journal of Animal Nutrition, 2020, 32(8):3819-3829. (in Chinese)

Outlines

/