RESEARCH PAPER

Isolation, Identification of Limosilactobacillus reuteri from Shrimp and Its Characterization

  • GU Yanli , 1 ,
  • LIN Yang 1 ,
  • LIU Yan 1, 2 ,
  • GUO Xiaohui 1 ,
  • CAO Yanzi 1 ,
  • JIANG Guotuo , 1, 2
Expand
  • 1 Dalian Sanyi Pharmaceutical Co., Ltd., Dalian 116036, China
  • 2 Jiangsu Sanyi Institute of Life Sciences, Pizhou 221300, China
*professor, E-mail:

Received date: 2023-10-27

  Online published: 2024-04-15

Abstract

The purpose of this experiment was to screen a strain of lactic acid bacteria from shrimp with a strong ability to control aquatic pathogens and to study its properties of inhibiting aquatic pathogenic bacteria. Microflora in different intestinal segments of healthy Penaeus vannamei were used as the source of strain isolation. Lactic acid bacteria were isolated and purified using CaCO3-MRS solid medium. Subsequently, a safe strain was obtained through the bacteriostatic ability test of common aquatic pathogens and the hemolysis test, and identified by 16S rRNA sequencing. Their growth characteristics, tolerance, antibiotic sensitivity, and the bacteriostatic ability of the fermentation supernatant with different treatments were evaluated. The results showed that Limosilactobacillus reuteri SAMMRS-1G was identified as the safe strain with the strongest bacteriostatic ability against common aquatic pathogens. In terms of growth characteristics, the optimum culture pH for Limosilactobacillus reuteri SAMMRS-1G was 5.0, and the optimum culture temperature was 39 ℃, with the logarithmic growth period occurring between 4 to 14 h. From the perspective of tolerance, Limosilactobacillus reuteri SAMMRS-1G exhibited a certain tolerance to artificial gastrointestinal fluids and osmotic pressure. The survival rate was 90.7% under pH 3.0 incubation for 4 h, 85.3% under 3.0 g/L bile salt concentration for 4 h, and 98.7% under 60‰ high salinity incubation for 4 h. Regarding the influence of different treatments on the bacteriostatic ability of the Limosilactobacillus reuteri SAMMRS-1G fermentation supernatant, the bacteriostatic ability of the fermentation supernatant to pathogenic bacteria followed the order of Vibrio vulnificus>Staphylococcus aureus>Vibrio parahaemolyticus>Shewanella putrefaciens>Salmonella typhimurium>Aeromonas hydrophila>Escherichia coli>Pseudoalteromonas sp.>Vibrio alginolyticus>Vibrio cholerae>Vibrio harveyi. The fermentation supernatant of Limosilactobacillus reuteri SAMMRS-1G exhibited good thermal stability, retaining 82% bacteriostatic activity after gastrointestinal protease treatment. It demonstrated stronger stability. In addition, the safety tests in mice showed that the Limosilactobacillus reuteri SAMMRS-1G had no negative effects on the growth performance and organ indexes. In conclusion, Limosilactobacillus reuteri SAMMRS-1G from shrimp, screened in this experiment, is a safe lactic acid bacterium with good tolerance, a strong ability to control aquatic pathogenic bacteria, stable activity of metabolites, and probiotic potential. It can provide reference strains for the development of anti-bacterial products in aquaculture.

Cite this article

GU Yanli , LIN Yang , LIU Yan , GUO Xiaohui , CAO Yanzi , JIANG Guotuo . Isolation, Identification of Limosilactobacillus reuteri from Shrimp and Its Characterization[J]. Chinese Journal of Animal Nutrition, 2024 , 36(4) : 2660 -2673 . DOI: 10.12418/CJAN2024.229

我国是世界第一大水产养殖国,养殖产量约占世界水产养殖总产量的70%,但随着我国水产养殖规模的逐步扩大及集约化程度的不断提高,养殖过程饵料残留、排泄物累积等造成水产养殖水质不断恶化[1],水产养殖行业病害加剧。水产动物的主要病原体包括细菌、病毒和寄生虫等,其中细菌性疾病是导致水产养殖经济损失的最严重因素。水产养殖中细菌性疾病常见病原菌主要有气单胞菌属、弧菌属、希瓦氏菌等,这些病原菌常常造成水产养殖动物相关病害的大规模暴发[2-3],给蓬勃发展的水产养殖业带来巨大损失,极大地限制了我国水产养殖健康可持续发展。
为有效防治水产动物易患疾病、促进机体快速增长,养殖户普遍存在滥用抗生素的现象[4],诱导了大量抗性菌株及抗性基因的产生,对食品安全和公众健康构成极大威胁。针对抗生素抗性问题,目前主要有免疫防治[5]、中草药养殖[6]和微生态养殖[7]3种应对策略。相比于另外2种,微生态养殖的适用性更强,微生态制剂黏附和定植在动物肠道内补充乳酸菌等肠道优势菌群,通过生物夺氧和自身代谢产生的有机酸及细菌素等生物活性成分,可有效抑制病原菌的生理活性,有利于提高机体对疾病的防御能力,增强肠道微生态系统的抵抗力和稳定性。乳酸菌作为益生菌,被广泛应用于食品加工、畜禽养殖和水产养殖中[8],其代谢产物具有免疫调剂功能,可产生多种抑菌物质[9]
不同来源的益生菌对环境的适应性差异较大,而来自特定宿主的益生菌能更好地适应该宿主体内的肠道内环境并发挥作用。因此,本试验以健康南美白对虾的不同肠段菌群为菌株分离来源,采用常规细菌分离筛选和鉴定技术,结合16S rRNA基因测序技术,并增加水产致病菌的抑制能力测试,分离筛选一株对水产致病菌具有稳定抑菌能力的优良乳酸菌菌株,并对其体外功能特性和体内安全性进行评价,旨在为水产动物微生态制剂的研发提供候选菌株。

1 材料与方法

1.1 试验材料

南美白对虾从大连市某水产市场购买。
指示菌来自大连三仪动物药品有限公司菌种保藏中心,主要有创伤弧菌(Vibrio vulnificus)BNCC336860、副溶血弧菌(Vibrio parahaemolyticus)ATCC17802、哈维氏弧菌(Vibrio harveyi)ATCC BAA-1117、溶藻弧菌(Vibrio alginolyticus)ATCC33787、霍乱弧菌(Vibrio cholerae)BNCC232030、腐败希瓦氏菌(Shewanella putrefaciens)ATCC BAA-1097、假交替单胞菌(Pseudoalteromonas sp.)BNCC336860、嗜水气单胞菌(Aeromonas hydrophila)BNCC336453、金黄色葡萄球菌(Staphylococcus aureus)CICC10384、沙门氏菌(Salmonella typhimurium)CICC21513、大肠杆菌(Escherichia coli)O78。
MRS琼脂购自北京奥博星生物技术有限公司,生理生化试剂盒、脱纤维羊血购自青岛海博生物技术有限公司,细菌基因组DNA纯化试剂盒购自北京天根生化科技有限公司,
MRS液体培养基配制:胰蛋白胨4.0 g,牛肉膏10.0 g,酵母粉8.0 g,葡萄糖10.0 g,L-半胱氨酸盐酸0.5 g,乙酸钠5.0 g,柠檬酸钠2.0 g,Tween-80 1.0 g,K2HPO4 2.0 g,MgSO4 0.2 g,MnSO4 0.05 g,CaCO3 3.0 g,纯净水1.0 L,pH为7.0~7.2。
MRS固体培养基配制:胰蛋白胨4.0 g,牛肉膏10.0 g,酵母粉8.0 g,葡萄糖10.0 g,L-半胱氨酸盐酸0.5 g,乙酸钠5.0 g,柠檬酸钠2.0 g,Tween-80 1.0 g,K2HPO4 2.0 g,MgSO4 0.2 g,MnSO4 0.05 g,CaCO3 10.0 g,琼脂粉18.0 g,纯净水1.0 L,pH为7.0~7.2。

1.2 试验方法

1.2.1 乳酸菌的分离

在无菌操作下取3~5尾健康无病原体的南美白对虾进行表体消毒,取虾肠道均质化,与适量的MRS液体培养基稀释制成原液,将原液用无菌生理盐水进行10倍梯度稀释,取原液、各梯度稀释液100 μL,分别涂布于MRS固体培养基(含有1% CaCO3),30 ℃厌氧培养2 d,至长出单个菌落,观察并记录菌落形态及特征,挑取MRS固体培养基中有钙溶解圈的菌落,对挑取的单菌落进行划线纯培养,直至长出形态大小均一的单菌落后用甘油进行菌种保存,置于-80 ℃冰箱,以备后用。

1.2.2 乳酸菌的筛选

经MRS液体培养基培养分离的乳酸菌,以水产常见病原菌嗜水气单胞菌、哈维氏弧菌、副溶血弧菌作为指示菌,采用牛津杯法[10]筛选抑菌能力强的菌株:在保温45~50 ℃灭菌的营养琼脂培养基中加入指示菌悬液,配成终浓度为0.2×10⁸ CFU/mL的菌悬液,吸取5 mL含菌营养琼脂于凝固备用的营养琼脂平板上做成菌层,使平板含菌量为1×10⁸ CFU/板;凝固后在平板上等距放置4个牛津杯,往其中3个牛津杯中分别加入200 μL不同分离乳酸菌菌株发酵液,另1个牛津杯中加入同等体积的抗生素溶液作为对照,静置30 min后,将上述营养琼脂平板放在恒温培养箱内,于30 ℃厌氧培养24 h,用游标卡尺测量并记录抑菌圈直径,计算待测菌株抑菌圈直径与抗生素抑菌圈直径的比值,筛选出抑菌能力强的菌株,用脱脂乳冻干保存。

1.2.3 筛选出的乳酸菌的溶血性

将筛选得到的抑菌能力强的乳酸菌菌株的冻干菌粉在MRS固体培养基上复苏、活化,挑取单菌落通过划线接种到含有5%(v/v)商业无菌绵羊血的血基琼脂平板上进行溶血试验。接种的血基琼脂板在30 ℃培养箱中厌氧培养2 d,观察是否有溶血圈,判断其安全性[11]

1.2.4 筛选出的乳酸菌的形态学特征观察

将分离活化的菌株在30 ℃厌氧培养48 h,观察菌落形态,接种环挑取单菌落进行革兰氏染色,显微镜检查菌体形态。

1.2.5 筛选出的乳酸菌的生理生化鉴定

将分离活化的菌株接种于MRS液体培养基,厌氧条件下30 ℃培养24 h,参照《常见细菌系统鉴定手册》方法和《伯杰氏细菌鉴定手册》鉴定该乳酸菌的生理生化特性。

1.2.6 筛选出的乳酸菌的16S rRNA分子生物学鉴定

提取筛选出的乳酸菌的基因组DNA,选用细菌16S rRNA通用引物序列27F(5'-AGAGTTTGATCMTGGCTCAG-3')和1492R(5'-GGTTACCTTGTTACGACTT-3')进行PCR扩增,扩增体系为25 μL,包括上游引物(10 μmol/L)1 μL,下游引物(10 μmol/L)1 μL,DNA模板(稀释20倍)1 μL,ddH2O 22 μL。PCR反应程序为:95 ℃预变性5 min;94 ℃变性30 s,57 ℃退火30 s,72 ℃复性90 s,30个循环;72 ℃延伸10 min。PCR扩增出16S rRNA后,交给生工生物工程(上海)进行测序。与NCBI的GenBank数据库进行核苷酸同源性比对,应用MEGA 6.0软件包构建系统发育树。

1.2.7 罗伊氏黏液乳杆菌SAMMRS-1G的培养特性研究

(1)最适培养pH的确定
用盐酸或氢氧化钠溶液将MRS液体培养基的初始pH分别调至4.0、4.5、5.0、5.5、6.0和7.0,按3%的接种量接种活化的罗伊氏黏液乳杆菌SAMMRS-1G,在39 ℃条件下静置培养24 h后测定活菌数,确定菌株的最适pH。
(2)最适培养温度的确定
将活化的罗伊氏黏液乳杆菌SAMMRS-1G按3%接种量接种到初始pH为5.0的MRS液体培养基中,分别在6个不同温度(25、28、31、35、39、42 ℃)下静置培养24 h后测定活菌数,确定菌株的最适培养温度。
(3)菌株生长曲线的测定
按3%的接种量将活化的罗伊氏黏液乳杆菌SAMMRS-1接种到初始pH为5.0的MRS液体培养基中,39 ℃静置培养,每隔2 h取样测定活菌数,绘制菌株的生长曲线。

1.2.8 罗伊氏黏液乳杆菌SAMMRS-1G的益生特性研究

(1)对酸的耐受性试验
用盐酸或氢氧化钠溶液分别调节MRS液体培养基,使其pH分别为7.0、6.0、5.0、4.0、3.0、2.0。分别取10 mL不同pH的MRS液体培养基,按3%的接种量将种子液接种到上述培养基中,39 ℃厌氧培养0、2、4 h,测定罗伊氏黏液乳杆菌SAMMRS-1G的活菌数,按照如下公式计算存活率:
存活率(%)=Nt/N0×100。
式中:N0为测试菌株0 h的活菌数(CFU/mL);Nt为测试菌株处理2或4 h的活菌数(CFU/mL)。
(2)对人工胃液和人工肠液的耐受性试验
人工胃液的制备:在pH为2.5的无菌生理盐水中加入3.0 g/L胃蛋白酶,充分溶解。人工肠液的制备:在pH为8.0的无菌生理盐水中加入1.0 g/L胆盐,充分溶解。人工胃液和人工肠液均以0.22 μm无菌微孔滤膜过滤除菌,备用。将活化的菌液按10%的接种量分别接入上述人工胃液和人工肠液中,39 ℃厌氧培养0、1.5和3.0 h,测定罗伊氏黏液乳杆菌SAMMRS-1G的活菌数,参照上式计算存活率。
(3)对胆盐的耐受性试验
在MRS液体培养基中添加胆盐,使其浓度分别为0、1.0、2.0、3.0、6.0 g/L。按3%的接种量将种子液接种到上述培养基中,39 ℃厌氧培养0、2、4 h,测定罗伊氏乳杆菌SAMMRS-1G的活菌数,参照上式计算存活率。
(4)对渗透压的耐受性试验
在MRS液体培养基中添加氯化钠,配成盐度分别为0‰、10‰、20‰、30‰、40‰和60‰的培养基,调pH为5.0,121 ℃下高温高压灭菌。按3%的接种量将种子液接种到上述培养基中,39 ℃厌氧培养0、2、4 h,测定罗伊氏黏液乳杆菌SAMMRS-1G的活菌数,参照上式计算存活率。
(5)对抗生素的敏感性试验
采用药敏纸片琼脂扩散法测定菌株的抗生素敏感性。取活化培养24 h后的罗伊氏黏液乳杆菌SAMMRS-1G菌液,用生理盐水稀释成1×10⁸ CFU/mL,取100 μL均匀涂布在MRS固体培养基上,将药敏片贴在培养基上,39 ℃厌氧培养24 h,用游标卡尺测定药敏圈直径,与CLSI标准做比较判断菌株药物敏感性[12]

1.2.9 罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液对水产病原菌的抑菌能力评价

水产病原菌菌悬液的制备:将创伤弧菌、副溶血弧菌、哈维氏弧菌、溶藻弧菌、霍乱弧菌、腐败希瓦氏菌、假交替单胞菌、嗜水气单胞菌、金黄色葡萄球菌、沙门氏菌和大肠杆菌分别从冻干管中取出至相应最适培养基平板上复苏,活化;挑取单菌落接种在相应液体培养基中,37 ℃摇床振荡培养至对数生长期,采用平板计数法进行细菌计数。菌悬液4 ℃冰箱保存备用,临用前用生理盐水稀释为1×10⁸ CFU/mL。
发酵上清液抑菌能力测定:抑菌试验方法同1.2.2中的牛津杯法,37 ℃厌氧培养18~24 h,用游标卡尺测量并记录抑菌圈直径。
(1)温度对罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液抑菌能力的影响
将罗伊氏黏液乳杆菌SAMMRS-1G发酵液离心取上清,分别在室温以及60、80、121 ℃(灭菌锅湿热)下恒温处理30 min,室温水浴快速冷却至常温后,以上述水产病原菌为指示菌,用游标卡尺测量并记录抑菌圈直径,分别计算室温以及60、80、121 ℃处理后发酵上清液与室温发酵上清液的抑菌圈直径比值。
(2)有机酸(pH)对罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液抑菌能力的影响
罗伊氏黏液乳杆菌SAMMRS-1G代谢的有机酸主要为乳酸、琥珀酸、甲酸、乙酸和丁酸,为排除酸性物质的干扰,以氢氧化钠溶液调节pH为6.0,以上述水产病原菌为指示菌,用游标卡尺测量并记录抑菌圈直径,计算与室温发酵上清液的抑菌圈直径比值。
(3)罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液对蛋白酶的敏感性
取罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液,分别以猪胃蛋白酶(终浓度2.0 mg/mL)、牛胰蛋白酶(终浓度2.0 mg/mL)37 ℃作用1 h,作用时pH分别为2.5、8.0,作用后以氢氧化钠和盐酸溶液将pH调回至5.0。以上述水产病原菌为指示菌,用游标卡尺测量并记录抑菌圈直径,计算与室温发酵上清液的抑菌圈直径比值。
(4)过氧化氢对罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液抑菌能力的影响
为排除过氧化氢的干扰,在罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液中加入1.5 mg/mL过氧化氢酶,以上述水产病原菌为指示菌,用游标卡尺测量并记录抑菌圈直径,计算与室温发酵上清
液的抑菌圈直径比值。

1.2.10 罗伊氏黏液乳杆菌SAMMRS-1G的动物安全性试验

参考GB 15193.3—2014和文献[13]设计试验。取30只昆明种小鼠,雌雄各占1/2,基础饲粮预饲1周后随机分为5组,其中1组为对照组,其余4组为试验组。根据人每天大约需要5.0×108 CFU活菌,设定试验组小鼠每天灌胃活菌数为人每天需要量的1/5倍、1倍、5倍和10倍罗伊氏黏液乳杆菌SAMMRS-1G菌悬液0.2 mL,连续7 d定时灌胃,每天记录小鼠状态,灌胃结束后继续饲养至14 d。试验区封闭,保持清洁,试验结束时每组小鼠逐只称重,小鼠脱颈椎处死后进行解剖检查,取出肝脏、脾脏、肾脏和胸腺称重,计算肝脏指数、脾脏指数、肾脏指数和胸腺指数。根据小鼠的精神状态、生长和脏器变化情况判定药物的安全性。

1.3 数据统计分析

数据采用Excel 2010进行整理,采用SPSS 20.0软件进行统计分析,结果以“平均值±标准差”表示,其中P>0.05表示差异不显著,P<0.05表示差异显著,P<0.01表示差异极显著。

2 结果与分析

2.1 乳酸菌的分离和筛选

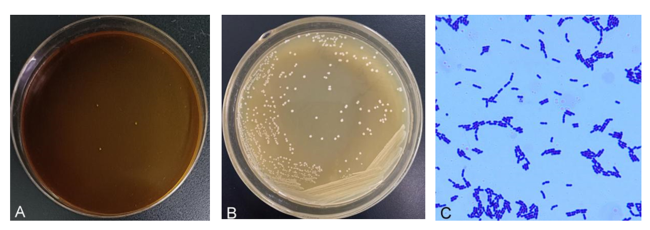
从南美白对虾的肠道中共分离出13株在MRS固体培养基中有钙溶解圈的不同菌落。在这13株菌中,通过体外抑菌试验筛选到3株对嗜水气单胞菌、哈维氏弧菌、副溶血弧菌的抑菌圈直径均在15.0 mm以上的兼性厌氧乳酸菌,并对这3株乳酸菌进行含有5%(v/v)商业无菌绵羊血的血基琼脂平板厌氧培养,得到1株没有溶血性的乳酸菌(图1-A),标记为SAMMRS-1G。菌株SAMMRS-1G在MRS固体培养基平板上的单菌落直径在1~3 mm,菌落颜色呈白色,表面光滑无光泽,中间微凸,不透明,边缘整齐(图1-B)。对菌株SAMMRS-1G进行革兰氏染色,显微镜下菌体形态呈两端钝圆的短粗杆状,单个或成对排列,无芽孢,为革兰氏阳性菌(图1-C)。
图1 菌株SAMMRS-1G溶血试验结果(A)、菌落形态(B)及菌体形态(C)

Fig.1 Hemolysis test result (A), colony morphology (B) and mycelial morphology (C) of strain SAMMRS-1G

2.2 生理生化鉴定结果

菌株SAMMRS-1G的生理生化特征如表1所示,初步判定其可能为罗伊氏黏液乳杆菌(曾用名:罗伊氏乳杆菌 )。
表1 菌株SAMMRS-1G生理生化鉴定结果

Table 1 Physiological and identification results of strain SAMMRS-1G

项目 Items 结果 Results 项目 Items 结果 Results
葡萄糖 Glucose + 山梨醇 Sorbitol -
蔗糖 Sucrose + H2O2试验 H2O2 test -
乳糖 Lactose + 硝酸盐还原试验 Nitrate reduction test -
半乳糖 Galcatose + 甲基红试验 Methylred test +
七叶苷 Esculin + V-P试验 V-P test -
纤维二糖 Cellobiose - 吲哚试验 Indole test -
木糖 Xylose - 硫化氢试验 Hydrogen sulfide test -
甘露糖 Mannose - 明胶液化试验 Gelatin liqiegaction test -
甘露醇Mannitol + 接触酶 Catalaset -

“+”表示阳性,“-”表示阴性。

“+” means positive, and “-” means negative.

2.3 16S rRNA序列分析结果

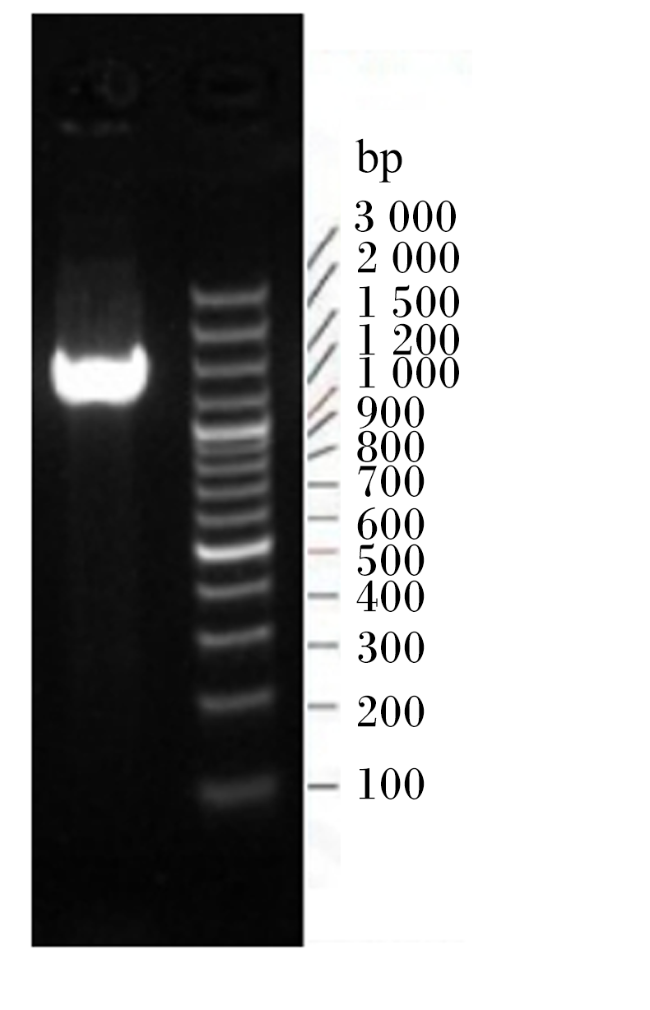
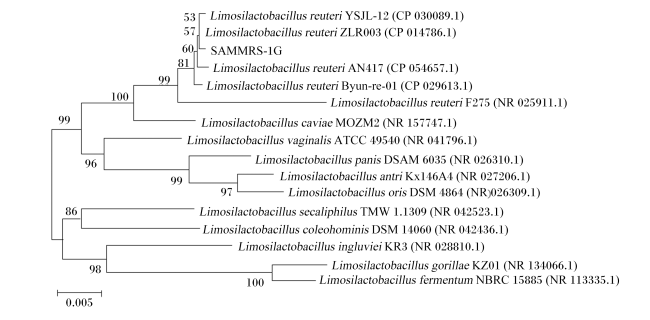
将菌株SAMMRS-1G的基因组DNA通过细菌16SrRNA通用引物序列进行PCR扩增后,得到1条长约1 500 bp的特异性条带,如图2所示。PCR产物送至上海生工公司测序,将16S rRNA的测序结果在NCBI数据库中寻找相似序列(登录号:CP065330.1、MZ707548.1、CP006603.1、MT823192.1、CP054657.1、CP051129.1、MN055933.1、CP065318.1、CP047416.1、CP084583.1),使用MEGE6.0软件进行同源性比较并构建系统发育树,结果见图3。根据比对结果构建的系统发育树,并结合形态学观察,确定菌株SAMMRS-1G为罗伊氏黏液乳杆菌,命名该菌株为罗伊氏黏液乳杆菌SAMMRS-1G,该菌株的16S rRNA序列已提交GenBank数据库,登录号为OM149729。
图2 菌株SAMMRS-1G 16S rDNA扩增产物

Fig.2 16S rDNA amplification products of strain SAMMRS-1G

图3 基于16S rDNA基因序列的系统进化树

Limosilactobacillus reuteri:罗伊氏黏液乳杆菌;Limosilactobacillus caviae:豚鼠黏液乳杆菌;Limosilactobacillus vaginalis:阴道黏液乳杆菌;Limosilactobacillus panis:面包黏液乳杆菌;Limosilactobacillus antri:胃窦黏液乳杆菌;Limosilactobacillus oris:口黏液乳杆菌;Limosilactobacillus secaliphilus:嗜黑麦黏液乳杆菌;Limosilactobacillus coleohominis:人阴道黏液乳杆菌;Limosilactobacillus ingluviei:嗉囊黏液乳杆菌;Limosilactobacillus gorillae:猩黏液乳杆菌;Limosilactobacillus fermentum:发酵黏液乳杆菌。

Fig.3 Phylogenetic tree based on 16S rDNA gene sequence

2.4 罗伊氏黏液乳杆菌SAMMRS-1G的培养特性

2.4.1 最适培养pH
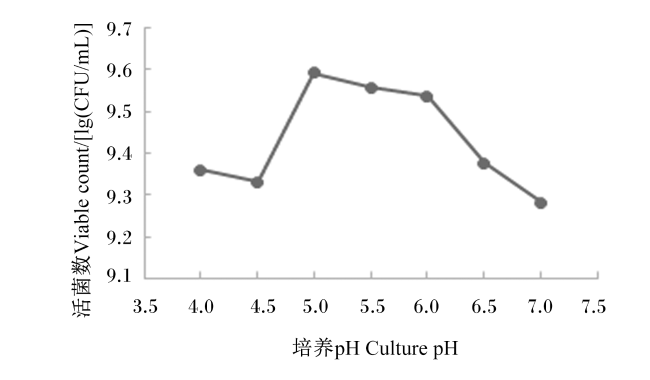
培养pH对乳酸菌菌株的生长速度有很大影响。如图4所示,罗伊氏黏液乳杆菌SAMMRS-1G的活菌数在pH 4.5~7.0范围内呈现先升高后降低的趋势,在pH 5.0时活菌数达最大值,为3.91×10⁹ CFU/mL,当pH超过6.0后活菌数明显下降且影响较大,因此确定罗伊氏黏液乳杆菌SAMMRS-1G最适培养pH为5.0。
图4 不同培养pH对罗伊氏黏液乳杆菌SAMMRS-1G活菌数的影响

Fig.4 Effects of different culture pH on viable count of Limosilactobacillus reuteri SAMMRS-1G

2.4.2 最适培养温度

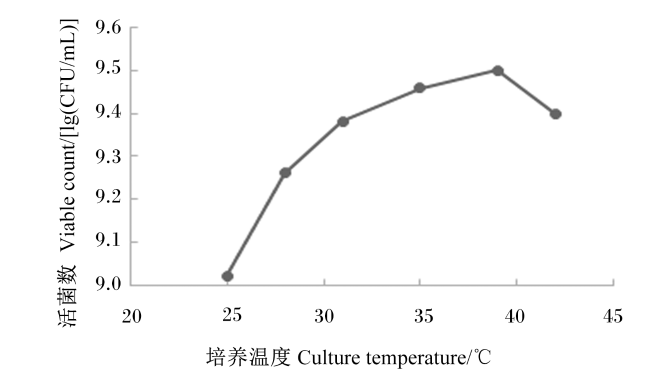
培养温度是影响乳酸菌生长速度的很重要因素,在适宜的温度下菌株能够快速进入对数生长期。由图5可知,罗伊氏黏液乳杆菌SAMMRS-1G在培养温度为25、28、31、35、39、42 ℃时均能生长,其中以培养温度为39 ℃时活菌数最高,为3.16×10⁹ CFU/mL,因此确定罗伊氏黏液乳杆菌SAMMRS-1G最适培养温度为39 ℃。
图5 不同培养温度对罗伊氏黏液乳杆菌SAMMRS-1G活菌数的影响

Fig.5 Effects of different culture temperature on viable count of Limosilactobacillus reuteri SAMMRS-1G

2.4.3 生长曲线

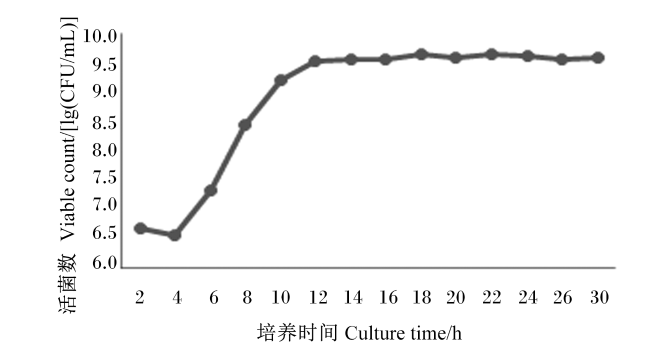
罗伊氏黏液乳杆菌SAMMRS-1G的生长曲线如图6所示,在30 h内菌株经历迟缓期、对数生长期和稳定期,未进入衰亡期。菌株在接种后经过2 h的迟缓期后,在4 h后进入对数生长期,菌株迅速生长,14 h后进入稳定期,最大活菌数达到3.36×10⁹ CFU/mL。
图6 罗伊氏黏液乳杆菌SAMMRS-1G的生长曲线

Fig.6 Growth curve of Limosilactobacillus reuteri SAMMRS-1G

2.5 罗伊氏黏液乳杆菌SAMMRS-1G的益生特性

2.5.1 对酸的耐受性
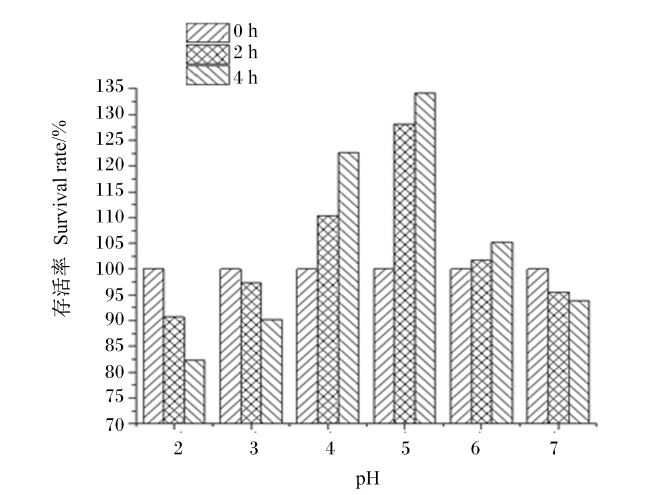
益生菌发挥作用的前提是可定植于宿主肠道内,一般情况下,鱼和虾等水产动物的胃环境为弱酸性。罗伊氏黏液乳杆菌SAMMRS-1G在pH分别为7.0、6.0、5.0、4.0、3.0、2.0的MRS液体培养基中进行耐受试验,结果如图7所示。罗伊氏黏液乳杆菌SAMMRS-1G在pH 2.0条件下静置培养4 h之后,其存活率仍为72.9%,在pH 3.0条件下存活率为90.7%,pH 5.0静置培养4 h后存活率为134.1%,这也验证了该菌株培养pH试验得出的5.0是其最适培养pH这一结果。在pH 7.0条件下静置培养4 h之后,其存活率为99.8%,环境pH的增大对菌株影响很小,由此可见罗伊氏黏液乳杆菌SAMMRS-1G具有较好的酸耐受性。
图7 罗伊氏黏液乳杆菌SAMMRS-1G酸耐受性试验结果

Fig.7 Results of acid tolerance test of Limosilactobacillus reuteri SAMMRS-1G

2.5.2 对人工胃液和人工肠液的耐受性

表2可知,罗伊氏黏液乳杆菌SAMMRS-1G在pH 2.5的人工胃液中静置培养1.5和3.0 h后,存活率分别为94.24%和90.79%;在pH 8.0的人工肠液中静置培养1.5和3.0 h后,存活率分别为99.04%和94.37%。由此可见,罗伊氏黏液乳杆菌SAMMRS-1G在人工胃肠液中培养3 h存活率均在90%以上,对人工胃肠液有较好的耐受性,这可为其在宿主胃肠道中存活并发挥抑菌等益生能力提供保障。
表2 罗伊氏黏液乳杆菌SAMMRS-1G对人工胃液和人工肠液的耐受性

Table 2 Tolerance of Limosilactobacillus reuteri SAMMRS-1G in artificial gastric juice and artificial intestinal juice

项目
Items
活菌数 Viable count/[lg(CFU/mL)] 存活率 Survival rate/%
0 h 1.5 h 3.0 h 0 h 1.5 h 3.0 h
人工胃液 Artificial gastric juice 8.02±0.11 7.99±0.05 7.98±0.07 100.00 94.24 90.79
人工肠液 Artificial intestinal juice 8.02±0.11 8.01±0.09 7.99±0.13 100.00 99.04 94.37

2.5.3 对胆盐的耐受性

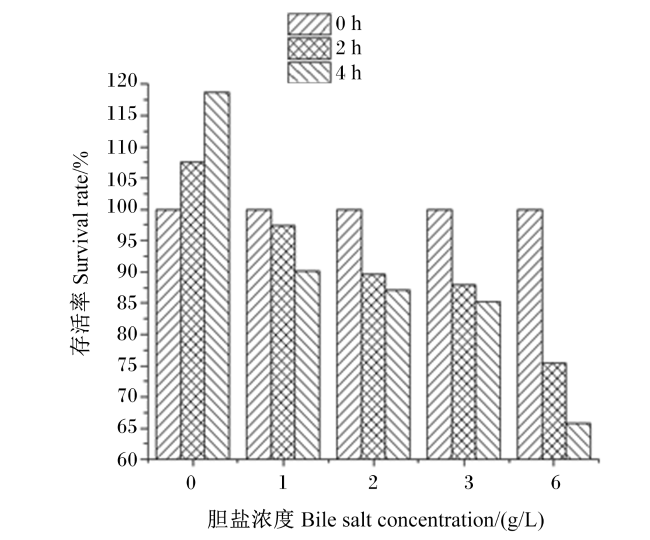
益生菌进入肠道之后必须能够耐受肠道内的高胆盐环境,才能够真正发挥作用。罗伊氏黏液乳杆菌SAMMRS-1G对胆盐的耐受性如图8所示,在3.0 g/L的胆盐浓度下罗伊氏黏液乳杆菌SAMMRS-1G具有相对稳定的生长,耐受4 h的存活率为85.3%,说明其对3.0 g/L的胆盐具有较好的耐受性,但随着时间的增加,存活率有所降低,但存活率总体仍保持较高的水平;当菌株在6.0 g/L的高胆盐浓度下耐受4 h后,其有效活菌数降低至原来的61.5%。
图8 罗伊氏黏液乳杆菌SAMMRS-1G1G胆盐耐受性试验结果

Fig.8 Results of bile salt tolerance test of Limosilactobacillus reuteri SAMMRS-1G

2.5.4 对渗透压的耐受性

将罗伊氏黏液乳杆菌SAMMRS-1G分别接种在不同盐度的MRS液体培养基中培养,结果如表3所示,低盐度(0~20‰)对菌株的生长有一定的促进作用,而高盐度(60‰)条件下处理4 h后存活率有所降低,但仍在98.7%以上。海水盐度一般为35‰,罗伊氏黏液乳杆菌SAMMRS-1G在60‰的高盐度条件下处理4 h仍表现出很好的活性,说明罗伊氏黏液乳杆菌SAMMRS-1G对高渗环境有一定的耐受性,可用于海水养殖中。
表3 罗伊氏黏液乳杆菌SAMMRS-1G对渗透压的耐受性

Table 3 Osmotic pressure tolerance of Limosilactobacillus reuteri SAMMRS-1G

盐度
Salinity/‰
活菌数 Viable count/[lg(CFU/mL)] 存活率 Survival rate/%
0 h 2 h 4 h 0 h 2 h 4 h
0 8.02±0.06 8.04±0.05 8.08±0.06 100.00 104.31 113.64
10 8.02±0.06 8.07±0.11 8.11±0.08 100.00 111.30 120.79
20 8.02±0.06 8.10±0.16 8.11±0.06 100.00 120.92 124.72
30 8.02±0.06 8.08±0.05 8.07±0.15 100.00 112.13 109.33
40 8.02±0.06 8.01±0.09 7.92±0.17 100.00 97.12 90.05
60 8.02±0.06 7.99±0.10 7.93±0.18 100.00 90.76 80.50

2.5.5 对抗生素的敏感性

菌株对抗生素敏感性测试是评估其安全性的一项重要指标。由表4可知,罗伊氏黏液乳杆菌SAMMRS-1G对不同的抗生素表现出不同的敏感程度,对氯霉素和头孢噻肟敏感,对庆大霉素中度敏感,对青霉素、环丙沙星、万古霉素、红霉素、四环素和磺胺甲噁唑不敏感。由此可见,罗伊氏黏液乳杆菌SAMMRS-1G对部分抗生素具有一定的耐药性。
表4 罗伊氏黏液乳杆菌SAMMRS-1G的抗生素敏感性试验结果

Table 4 Antibiotic sensitivity test results of Limosilactobacillus reuteri SAMMRS-1G

抗生素种类
Types of antibiotics
抗生素
Antibiotics
判定标准 Criterion 抑菌圈直径
Diameter of
inhibition
zone/mm
敏感性
Sensitivity
R I S
青霉素类 Penicillins 青霉素 Penicillin ≤14 14~15 ≥15 12.38±0.46 R
氨基酸糖苷类Aminoglycisides 庆大霉素 Gentamicin ≤12 13~14 ≥15 13.42±0.26 I
氯霉素类 Phenicols 氯霉素 Chloramphenicol ≤12 13~17 ≥18 23.14±0.38 S
头孢菌素类Cephalosporin 头孢噻肟 Cefotaxime ≤22 23~25 ≥26 30.25±0.52 S
喹诺酮类 Quinolone 环丙沙星 Ciprofloxacin ≤15 16~20 ≥21 14.24±0.35 R
糖肽类 Glycopeptide 万古霉素 Vancomycin ≤14 15~16 ≥17 无抑菌圈 R
大环内酯类 Macrolides 红霉素 Erythromycin ≤14 15~18 ≥19 11.24±0.40 R
四环素类 Tetracyclines 四环素Tetracycline ≤11 12~14 ≥15 9.86±0.36 R
叶酸代谢途径抑制剂
Folic acid metabolic pathway inhibitor
磺胺甲噁唑
Sulfamethoxazole
≤12 13~16 ≥17 8.25±0.52 R

R:表示菌株对抗生素耐药;I:表示菌株对抗生素中度敏感;S:表示菌株对抗生素敏感。

R: indicates that strain is resistant to antibiotics; I: indicates that strain is moderately sensitive to antibiotics; S: indicates that strain is sensitive to antibiotics.

2.6 罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液对水产病原菌的抑菌能力评价

罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液对11种常见水产病原菌的抑菌能力如表5所示,其中罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液对致病菌的抑菌能力为创伤弧菌>金黄色葡萄球菌>副溶血弧菌>腐败希瓦氏菌>沙门氏菌>嗜水气单胞>大肠杆菌>假交替单胞菌>溶藻弧菌>霍乱弧菌>哈维弧菌;罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液经过不同温度处理30 min后,在60~80 ℃抑菌活性变化不大,当温度达到121 ℃处理发酵上清液对大肠杆菌和沙门氏菌的抑菌能力是原来的86%以上,对常见水产致病菌的抑菌能力是原来的90%以上。罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液以氢氧化钠溶液调节pH为6.0,其抑菌能力均有不同程度的降低,其中对金黄色葡萄球菌的抑菌能力下降最多,为原来抑菌能力的86.30%;罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液以猪胃蛋白酶和牛胰蛋白酶作用1 h后,对腐败希瓦氏菌和副溶血弧菌的抑菌能力下降最多,仅保留了82%左右。
表5 不同处理罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液对水产病原菌的抑菌能力

Table 5 Ability of Limosilactobacillus reuteri SAMMRS-1G fermentation supernatant with different treatments against aquatic pathogenic bacteria

项目
Items
平均抑菌圈直径(mm)或比直径(%)
Average inhibition zone diameter (mm) or specific diameter (%)
大肠杆菌
Escherichia
coli
沙门氏菌
Salmonella
typhimurium
金黄色葡
萄球菌
Staphylo-
coccus
aureus
嗜水气单胞
Aeromonas
hydrophila
腐败希
瓦氏菌
Shewanella
putrefaciens
哈维弧菌
Vibrio
harveyi
溶藻弧菌
Vibrio
alginolyticus
副溶血弧菌
Vibrio.
parahae-
molyticus
霍乱弧菌
Vibrio
cholerae
创伤弧菌
Vibrio
vulnificus
假交替
单胞菌
Pseudoalt-
eromonas sp.
平均抑菌圈直径 Average inhibition zone diameter/mm
发酵上清液
Fermentation supernatant
17.86±0.33 19.78±0.35 26.45±0.60 18.44±0.45 20.02±0.24 15.50±0.26 17.4±0.24 22.07±0.28 16.70±0.34 30.90±0.46 17.54±0.73
温度对发酵上清液抑菌能力的影响(比直径/%) Effects of temperature on bacteriostatic ability of fermentation supernatant (specific diameter/%)
60 ℃处理样
Sample treated by 60 ℃
102.75 115.12 112.59 102.58 94.22 122.76 139.78 95.96 94.61 102.86 98.06
80 ℃处理样
Sample treated by 80 ℃
93.58 95.93 96.30 96.77 98.27 96.55 96.77 98.48 92.81 96.43 96.92
121 ℃处理样
Sample treated by 121 ℃
86.24 88.95 91.85 93.55 95.38 93.79 94.62 95.45 91.02 110.00 92.36
有机酸对发酵上清液抑菌能力的影响 Effects of organic acid on bacteriostatic ability of fermentation supernatant (specific diameter/%)
碱中和处理样
Alkali neutralization sample
86.33 90.00 86.30 91.29 88.27 90.69 96.77 95.96 97.01 97.86 98.63
发酵上清液对蛋白酶的敏感性(比直径/%)Sensitivity of fermentation supernatant to protease (specific diameter/%)
猪胃蛋白酶处理样
Sample treated by
porcine pepsin
90.83 91.28 86.67 96.77 90.17 91.03 91.40 84.34 89.82 95.00 94.07
牛胰蛋白酶处理样
Sample treated by
bovine trypsin
87.16 94.19 106.67 91.61 82.08 89.66 88.17 82.83 85.03 92.86 91.22
过氧化氢对发酵上清液抑菌能力的影响(比直径/%) Effects of H2O2 on bacteriostatic ability of fermentation supernatant (specific diameter/%)
过氧化氢处理样
Sample treated by H2O2
96.33 97.67 94.07 90.32 92.49 95.17 102.15 91.41 94.91 94.29 93.50

2.7 罗伊氏黏液乳杆菌SAMMRS-1G动物安全性试验

试验结束后,试验组小鼠均未死亡,与对照组相比并未表现出明显毒性反应外观,行为活动和精神状态各组间无明显差异,增重也无显著差异(P>0.05,表6);对各组小鼠脏器指数进行分析发现,肝脏指数、脾脏指数、肾脏指数和胸腺指数均无显著差异(P>0.05,表6)。上述结果说明罗伊氏黏液乳杆菌SAMMRS-1G对小鼠的生长和脏器发育并未有明显影响,未造成小鼠死亡且未见明显的毒副作用,具有较高的安全性。
表6 罗伊氏黏液乳杆菌SAMMRS-1G对小鼠生长性能和脏器指数的影响

Table 6 Effects of Limosilactobacillus reuteri SAMMRS-1G on growth performance and organ indexes of mice

项目
Items
生长性能 Growth performance 脏器指数 Organ indexes/%
存活率
Survival
rate/%
增重
Gain
weight/g
肝脏指数
Liver
index
脾脏指数
Spleen
index
肾脏指数
Kidney
index
胸腺指数
Thymus
index
对照组 Control group 100 13.07±2.11 5.31±0.09 0.40±0.08 0.70±0.09 0.24±0.04
试验组1 Test group 1 100 14.45±1.46 5.32±0.08 0.42±0.06 0.71±0.06 0.23±0.06
试验组2 Test group 2 100 15.47±1.66 5.29±0.12 0.43±0.05 0.72±0.08 0.25±0.05
试验组3 Test group 3 100 16.29±2.21 5.31±0.12 0.45±0.04 0.73±0.05 0.26±0.11
试验组4 Test group 4 100 16.74±1.49 5.31±0.04 0.43±0.02 0.73±0.02 0.26±0.02
PP-value 0.015 0.991 0.575 0.930 0.967

3 讨论

将乳酸菌添加到饲料中饲喂水产动物主要有3个方面的作用:一是通过调节宿主动物体内肠道微生物菌群平衡,提高动物存活率和饲料利用率等生长性能[14-15];二是抑制宿主动物体内的致病微生物的生长繁殖,提高其特异性和非特异性免疫能力,增强抗病能力[16-17];三是抑制饲料中有害微生物的生长繁殖。
革兰氏阳性益生菌所分泌的生物活性物质,如细菌素等抗菌肽,能够有效抑制水产动物肠道中革兰氏阴性菌,降低潜在致病性产生的不利影响,通过占位或者溶解革兰氏阴性病原菌的细胞膜,从而防止疾病病原体在胃肠道中的附着和定植。在集约化和超精细养殖系统中作为控制水产养殖疾病暴发的预防工具[18],乳酸菌因其细胞黏附优势,是健康水产动物黏膜系统内天然共生的一类益生菌,可维持或调节宿主肠道微生物平衡,改善宿主健康和生长性能[19]。本研究从健康南美白对虾的肠道内分离获得抗菌能力能高的乳酸菌,经鉴定为罗伊氏黏液乳杆菌。研究显示,罗伊氏黏液乳杆菌具有调节肠道微生物群、消除感染和减轻肠道结肠炎等作用,是一种安全的、耐受良好且有效的益生菌[20-21],是美国食品监督管理局批准的一种安全的食品添加剂,我国早在2001年就已批准该菌作为益生菌应用于保健食品中[22]。目前虽然国内将罗伊氏黏液乳杆菌应用于水产养殖中作为防治水产致病菌的抗生素替代物的报道很少,但国内早已有研究,Li等[23]研究发现,饲料中添加罗伊氏黏液乳杆菌不仅能够提高尼罗罗非鱼的生长性能和饲料利用率,同时能够增加肠道的绒毛高度、消化酶活性和紧密连接蛋白表达,改善肠道微生物群的多样性和组成;国外也有相关研究,Giri等[24]研究发现,在水产养殖中,饲料中补充罗伊氏黏液乳杆菌P16可显著提高铅污染鲤鱼的饲料利用率、生长性能和存活率。国内关于罗伊氏黏液乳杆菌的研究多集中在防治幽门螺杆菌[25]、婴幼儿食品[26]和畜禽养殖[27-28]上。
菌株的培养特性研究有助于进一步为发酵工艺优化提供理论基础。微生物生长曲线能够反应菌株的生长特性,选取能够快速进入对数生长期的益生菌,更有利于益生菌进入肠道后快速繁殖成为优势菌群。本试验中,罗伊氏黏液乳杆菌SAMMRS-1G在pH为5.0的MRS液体培养基中,39 ℃厌氧培养4 h后进入对数生长期,14 h后进入稳定期,最大活菌数达到3.36×10⁹ CFU/mL。后续将进一步研究罗伊氏黏液乳杆菌SAMMRS-1G的发酵工艺,以期获得单位体积最大活菌数和最小生产成本。罗伊氏黏液乳杆菌SAMMRS-1G在25 ℃环境中仍可旺盛生长,因此该菌株可在淡水或海水养殖中应用。此外,在饲料加工或放置过程中会遇到高温情况,本研究分离的罗伊氏黏液乳杆菌SAMMRS-1G在42 ℃条件下仍可正常生长,具有更广泛的应用潜质。
菌株的益生特性是评价其是否具有应用价值的重要指标之一,乳酸菌能否顺利进入宿主动物的消化道中并有效定植,与菌株对pH、高浓度胆盐、人工胃肠环境和渗透压等环境因素的耐受能力密切相关。已有研究报道,鲫鱼等无胃鱼类消化道的pH接近中性[29],而罗非鱼等有胃鱼类消化道的pH最低为2.0[30]。本研究分离的罗伊氏黏液乳杆菌SAMMRS-1G在pH 2.0~7.0环境下耐受4 h仍具有良好活性,在人工胃肠液中培养3 h存活率均在90%以上,表明其能够有效穿过胃肠液到达肠道。罗伊氏黏液乳杆菌SAMMRS-1G在3.0 g/L的胆盐浓度下具有相对稳定的生长性能,耐受4 h后的存活率为85.3%,具有较好的耐受性并能发挥其益生作用。海水的盐度一般为35‰,罗伊氏黏液乳杆菌SAMMRS-1G在高盐度(60‰)条件下处理4 h仍表现出很好的抑菌能力。罗伊氏黏液乳杆菌SAMMRS-1G对部分抗生素具有一定的耐药性,对抗生素的敏感程度与前人的研究结果[13,31-32]不完全相同,这可能是由于不同菌株的质粒携带抗性基因不同而产生的差异。同时,安全性也是水产养殖替抗产品较为重视的性能,罗伊氏黏液乳杆菌SAMMRS-1G未造成小鼠脏器损伤和死亡,具有较高的安全性。这些特性使得罗伊氏黏液乳杆菌SAMMRS-1G具有成为抗逆性强、能被有效利用的水产动物饲料益生菌饲料添加剂的潜力。
水产养殖中细菌性疾病常见病原菌主要有气单胞菌属、弧菌属、希瓦氏菌等,细菌性疾病频发极大地限制了我国水产养殖业健康可持续发展。罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液对上述水产致病菌的抑菌圈直径均大于15.0 cm,说明其对这些水产致病菌都具有显著的抑制能力;此外,该菌株对创伤弧菌的抑菌能力最强,抑菌圈直径为30.90 cm,对哈维弧菌的抑菌能力最弱,抑菌圈直径为15.50 cm,均能够快速起到治疗效果。大多数乳酸菌所产生的细菌素或类细菌素只有很窄的抗菌谱,只能抑制与产生菌种属相近的一些细菌。而罗伊氏黏液乳杆菌通过产生罗伊氏素、有机酸、细菌素等代谢物和其他拮抗物质来抑制有害细菌的生长繁殖,预防抗生素引起的腹泻,在宿主消化道中发挥重要作用[33]。同时,罗伊氏黏液乳杆菌通过调节微生物群和分泌具有抗病毒成分的代谢物来改善病毒感染[34]。Wang等[35]研究表明,罗伊氏黏液乳杆菌LR1具有良好的耐酸性、耐胆汁、抑制病原菌以及对猪肠细胞的黏附能力,还能抑制产肠毒素性大肠杆菌(ETEC)与IPEC-1细胞的黏附,调节免疫应答,增强上皮屏障功能。本研究筛选的罗伊氏黏液乳杆菌SAMMRS-1G代谢的抗菌肽素是一种广谱有效的抗菌物质,能抑制常见水产致病菌的生长,且抑菌效果稳定。罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液对水产致病菌和其他养殖动物常见致病菌的抑制作用不受温度影响,不同温度(60、80、121 ℃)处理的发酵上清液的抑菌能力大部分在室温发酵上清液抑菌能力的90%以上,具有良好的热稳定性,其中失去抑菌作用的物质可能是因温度过高而造成蛋白质类物质失去活性引起的。此外,罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液的抑菌活力不受有机酸和过氧化氢酶的破坏而失效。中和有机酸后的发酵上清液的抑菌能力略受影响,说明罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液中的有机酸成分也参与了对致病菌的抑菌作用,但不是主要物质。大多数细菌素为多肽或蛋白质类物质,它们的抗菌特性通常受到蛋白酶的破坏,而罗伊氏黏液乳杆菌SAMMRS-1G发酵上清液受动物胃及肠道的蛋白酶影响很小,进入动物体内可快速发挥作用而不被胃肠环境破坏,代谢的抑菌物质具有更强的稳定性。

4 结论

本研究从健康南美白对虾肠道内分离得到的罗伊氏黏液乳杆菌SAMMRS-1G对常见的水产致病菌有良好的抑制能力,且发酵代谢产物具有较强的稳定性以及良好的胃肠环境耐受性和渗透压耐受性,是一株防治水产致病菌能力强、代谢产物活性稳定、具有益生菌潜力的安全乳酸菌,可为水产养殖替抗产品的开发提供参考菌种。
[1]
刘真, 王海凤. 水产养殖废水污染危害及处理技术研究[J]. 农业与技术, 2022, 42(5):119-121.

LIU Z, WANG H F. Study on pollution harm and treatment technology of aquaculture wastewater[J]. Agriculture & Technology, 2022, 42(5):119-121. (in Chinese)

[2]
梁璟. 水产养殖病害防治关键技术获突破[N]. 中国渔业报, 2023-07-17(01).

LIANG J. Breakthrough in key technologies of aquaculture disease prevention and control[N]. China Fishery News, 2023-07-17(01). (in Chinese)

[3]
蔺凌云, 潘晓艺, 袁雪梅, 等. 淡水鱼虾细菌病诊断与防控技术研究进展[J]. 中国动物检疫, 2018, 35(6):83-88.

LIN L Y, PAN X Y, YUAN X M, et al. Research progress on diagnosis,prevention and control technologies of bacterial diseases in freshwater fishes and shrimps[J]. China Animal Health Inspection, 2018, 35(6):83-88. (in Chinese)

[4]
肖倩. 水产养殖中抗生素滥用问题研究[J]. 养殖与饲料, 2020, 19(10):46-48.

XIAO Q. Study on the abuse of antibiotics in aquaculture[J]. Animals Breeding and Feed, 2020, 19(10):46-48. (in Chinese)

[5]
刘波, 周群兰, 缪凌鸿, 等. 水产动物营养与免疫研究进展[J]. 水产学报, 2022, 46(10):1761-1775.

LIU B, ZHOU Q L, MIAO L H, et al. Research progress in nutrition and immunity of aquatic animals[J]. Journal of Fisheries of China, 2022, 46(10):1761-1775. (in Chinese)

[6]
蔡艳, 陈婷, 刘红. 中草药在水产养殖中的应用及研究[J]. 现代畜牧科技, 2023(3):48-50.

CAI Y, CHEN T, LIU H. Application and research of Chinese herbal medicine in aquaculture[J]. 媒体外文缺失, 2023(3):48-50. (in Chinese)

[7]
陈文, 邱磊, 曹树威, 等. 微生态制剂在水产养殖中的应用[J]. 水产养殖, 2022, 43(7):13-16.

CHEN W, QIU L, CAO S W, et al. A brief introduction of probiotics application in aquaculture[J]. Journal of Aquaculture, 2022, 43(7):13-16. (in Chinese)

[8]
ANAS A, SUKUMARAN V, NAMPULLIPURACKAL DEVARAJAN D, et al. Probiotics inspired from natural ecosystem to inhibit the growth of Vibrio spp. causing white gut syndrome in Litopenaeus vannamei[J]. 3 Biotech, 2021, 11(2):66.

DOI

[9]
TKHRUNI F N, AGHAJANYAN A E, BALABEKYAN T R, et al. Characteristic of bacteriocins of Lactobacillus rhamnosus BTK 20-12 potential probiotic strain[J]. Probiotics and Antimicrobial Proteins, 2020, 12(2):716-724.

DOI

[10]
顾艳丽, 单春乔, 吴磊, 等. 防治家禽腹泻的复方中药筛选及其提取工艺研究[J]. 中国家禽, 2020, 42(4):46-51.

GU Y L, SHAN C Q, WU L, et al. Screening of compound traditional Chinese medicine for prevention and treatment of poultry diarrhea and its extraction process[J]. China Poultry, 2020, 42(4):46-51. (in Chinese)

[11]
刘爱瑜, 田军, 赵心念, 等. 育肥绵羊胃肠道乳酸菌的分离鉴定及部分体外益生特性评价[J]. 动物营养学报, 2022, 34(12):8149-8160.

DOI

LIU A Y, TIAN J, ZHAO X N, et al. Isolation,identification and partial in vitro probiotic characteristics evaluation of lactic acid bacteria in gastrointestinal tract of fattening sheep[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):8149-8160. (in Chinese)

[12]
马筱玲. 抗菌药物敏感性试验执行标准解读[J]. 临床检验杂志, 2012, 30(10):776-778.

ZHANG R C, CUI H Z, CAI J H, et al. Interpretation of execution criteria for antimicrobial susceptibility tests[J]. Chinese Journal of Clinical Laboratory Science, 2012, 30(10):776-778. (in Chinese)

[13]
张如春, 崔焕忠, 蔡熙姮, 等. 狐源罗伊氏乳杆菌ZJF036益生特性研究[J]. 动物营养学报, 2020, 32(8):3819-3829.

DOI

ZHANG R C, CUI H Z, CAI J H, et al. Probiotic characteristics of Lactobacillus reuteri ZJF036 isolated from fox[J]. Chinese Journal of Animal Nutrition, 2020, 32(8):3819-3829. (in Chinese)

[14]
MIKULSKI D, JANKOWSKI J, MIKULSKA M, et al. Effects of dietary probiotic (Pediococcus acidilactici) supplementation on productive performance,egg quality,and body composition in laying hens fed diets varying in energy density[J]. Poultry Science, 2020, 99(4):2275-2285.

DOI

[15]
MALEKI KAKELAR H, BARZEGARI A, HANIFIAN S, et al. Isolation and molecular identification of Lactobacillus with probiotic potential from abomasums driven rennet[J]. Food Chemistry, 2019, 272:709-714.

DOI

[16]
DE MELO PEREIRA G V, DE OLIVEIRA COELHO B, MAGALHÃES JÚNIOR A I, et al. How to select a probiotic?A review and update of methods and criteria[J]. Biotechnology Advances, 2018, 36(8):2060-2076.

DOI

[17]
刘颖, 王洋, 冯小芸, 等. 抗水产病原菌乳酸菌的筛选及其发酵饲料的制备[J]. 中国饲料, 2022(3):112-117.

LIU Y, WANG Y, FENG X Y, et al. Screening of anti-aquatic pathogenic lactic acid bacteria and preparation of fermented feed[J]. China Feed, 2022(3):112-117. (in Chinese)

[18]
RINGØ E, VAN DOAN H, LEE S H, et al. Probiotics,lactic acid bacteria and bacilli:interesting supplementation for aquaculture[J]. Journal of Applied Microbiology, 2020, 129(1):116-136.

DOI

[19]
SHA Y J, WANG L, LIU M, et al. Effects of lactic acid bacteria and the corresponding supernatant on the survival,growth performance,immune response and disease resistance of Litopenaeus vannamei[J]. Aquaculture, 2016, 452:28-36.

DOI

[20]
DIEZ-ECHAVE P, MARTÍN-CABREJAS I, GARRIDO-MESA J, et al. Probiotic and functional properties of Limosilactobacillus reuteri INIA P572[J]. Nutrients, 2021, 13(6):1860.

DOI

[21]
SAVIANO A, BRIGIDA M, MIGNECO A, et al. Lactobacillus reuteri DSM 17938 (Limosilactobacillus reuteri) in diarrhea and constipation:two sides of the same coin?[J]. Medicina, 2021, 57(7):643.

DOI

[22]
肖珊, 李轩伊, 王志贤, 等. 乳酸菌产细菌素生物学特性的研究及培养条件的优化[J]. 食品安全质量检测学报, 2020, 11(16):5620-5626.

XIAO S, LI X Y, WANG Z X, et al. Study on the biological characteristics of bacteriocin production by mixed fermentation and optimization of culture conditions[J]. Journal of Food Safety & Quality, 2020, 11(16):5620-5626. (in Chinese)

[23]
LI W, HUANG X Z, LU X Z, et al. Effects of dietary Lactobacillus reuteri on growth performance,nutrient retention,gut health and microbiota of the Nile tilapia (Oreochromis niloticus)[J]. Aquaculture Reports, 2022, 26:101275.

DOI

[24]
GIRI S S, YUN S, JUN J W, et al. Therapeutic effect of intestinal autochthonous Lactobacillus reuteri P16 against waterborne lead toxicity in Cyprinus carpio[J]. Frontiers in Immunology, 2018, 9:1824.

DOI

[25]
杨成海. 灭活罗伊氏乳杆菌抗幽门螺杆菌的疗效及其作用机制研究[D].博士学位论文. 广州: 南方医科大学, 2021.

YANG C H. Efficacy and mechanism of inactivated Lactobacillus reuteri against Helicobacter pylori[D].Ph.D.Thesis. Guangzhou: Southern Medical University, 2021. (in Chinese)

[26]
王刚祚, 姚宝珍. 罗伊氏乳杆菌对小儿轮状病毒感染肠炎的疗效及其对患儿肠道菌群与胃肠激素的影响[J]. 川北医学院学报, 2022, 37(1):47-50.

WANG G Z, YAO B Z. Effects of Lactobacillus reuteri in the treatment of rotavirus infection enteritis in children and its influence on intestinal flora and gastrointestinal hormones[J]. Journal of North Sichuan Medical College, 2022, 37(1):47-50. (in Chinese)

[27]
陈晓宇, 朱连勤, 陈甫, 等. 罗伊氏乳杆菌肽聚糖对蛋雏鸡生长性能、免疫功能和抗氧化能力的影响[J]. 动物营养学报, 2022, 34(9):5741-5750.

DOI

CHEN X Y, ZHU L Q, CHEN F, et al. Effects of Lactobacillus reuteri peptidoglycan on growth performance,immune function and antioxidant capacity of egg chicks[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5741-5750. (in Chinese)

[28]
刘春艳, 孙焱杰, 王倩, 等. 猪源罗伊氏乳杆菌LR1对断奶后42d仔猪生长性能和肠道上皮屏障功能的影响[J]. 动物营养学报, 2023, 35(6):3583-3593.

DOI

LIU C Y, SUN Y J, WANG Q, et al. Effects of porcine Lactobacillus reuteri LR1 on growth performance and intestinal epithelial barrier function of piglets at 42 days after weaning[J]. Chinese Journal of Animal Nutrition, 2023, 35(6):3583-3593. (in Chinese)

[29]
杨媛媛, 王楠楠, 曹青, 等. 鲫肠道乳酸菌的分离及益生特性[J]. 水产学报, 2018, 42(10):1596-1605.

YANG Y Y, WANG N N, CAO Q, et al. Isolation and probiotic properties of lactic acid bacteria from the gut of crucian carp (Carassius auratus)[J]. Journal of Fisheries of China, 2018, 42(10):1596-1605. (in Chinese)

[30]
郭凤茹. 罗非鱼肠道乳酸菌的益生特性研究[D].硕士学位论文. 上海: 上海海洋大学, 2019.

GUO F R. Study on the probiotic properties of intestinal lactic acid bacteria in tilapia[D].Master’s Thesis. Shanghai: Shanghai Ocean University, 2019. (in Chinese)

[31]
李一娟, 邵开生, 张娜, 等. 产Reuterin罗伊氏乳杆菌的定向筛选及其生物学特性[J]. 食品科学, 2021, 42(14):32-38.

LI Y J, SHAO K S, ZHANG N, et al. Directional screening for Reuterin-producing Lactobacillus reuteri and its biological characteristics[J]. Food Science, 2021, 42(14):32-38. (in Chinese)

DOI

[32]
贾丹, 王雅, 李禤, 等. 罗伊氏乳杆菌ZL2a株体外益生潜能的评价[J]. 中国兽医科学, 2019, 49(11):1450-1456.

JIA D, WANG Y, LI X, et al. In vitro evaluation of probiotic potential of Lactobacillus reuteri ZL2a[J]. Chinese Veterinary Science, 2019, 49(11):1450-1456. (in Chinese)

[33]
MU Q H, TAVELLA V J, LUO X M. Role of Lactobacillus reuteri in human health and diseases[J]. Frontiers in Microbiology, 2018, 9:757.

DOI

[34]
ANG L Y E, TOO H K I, TAN E L, et al. Antiviral activity of Lactobacillus reuteri Protectis against coxsackievirus A and enterovirus 71 infection in human skeletal muscle and colon cell lines[J]. Virology Journal, 2016, 13:111.

DOI

[35]
WANG Z L, WANG L, CHEN Z, et al. In vitro evaluation of swine-derived Lactobacillus reuteri:probiotic properties and effects on intestinal porcine epithelial cells challenged with enterotoxigenic Escherichia coli K88[J]. Journal of Microbiology and Biotechnology, 2016, 26(6):1018-1025.

DOI

Outlines

/