RESEARCH PAPER

Effects of Wilting and Additive Treatment on Quality and Protein Fractions of Avena sativa Silage

  • JIA Tingting ,
  • XU Zimeng ,
  • WANG Tiemei , *
Expand
  • School of Grassland Science, Beijing Forestry University, Beijing 100083, China
* associate professor, E-mail:

Received date: 2024-05-10

  Online published: 2024-11-09

Abstract

This study aimed to explore the effects of wilting and additives (citric acid, L-malic acid and Lactobacillus plantarum) on the quality and protein fractions of Avena sativa silage. Distilled water (Con), Lactobacillus plantarum (LP), citric acid (CA), L-malic acid (MA), Lactobacillus plantarum and citric acid mixture (LP+CA), and Lactobacillus plantarum and malic acid mixture (LP+MA) were added to unwilted and wilted Avena sativa raw materials and fermented for 45 days. The results showed that all the additives significantly decreased the pH of Avena sativa silage (P<0.05). The addition of CA and MA alone significantly decreased the lactic acid contents (P<0.05). The compound additive composed of CA, MA and LP significantly decreased the pH, ammonia nitrogen and amine nitrogen contents of Avena sativa silage (P<0.05). Among all treatments, water soluble carbohydrate content in the CA and MA was higher than other treatments. The additives had no significant effects on neutral detergent fiber, acid detergent fiber, hemicellulose and crude protein contents of Avena sativa silage (P>0.05). The biogenic amines in Avena sativa silage were mainly putrescine, cadaverine and tyramine, accounting for about 90% of the total biogenic amines measured. The contents of phenethylamine, putrescine, cadaverine, histamine, tyramine and total biogenic amines in the additive treatment group were significantly lower than that in the Con (P<0.05). The contents of putrescine, cadaverine, tyramine and total biogenic amines decreased significantly in the LP+CA and LP+MA. Compared with unwilted oat silage, the free amino acid nitrogen content of wilted oat silage was significantly decreased (P<0.05), but the ammonia nitrogen content was significantly increased (P<0.05). Therefore, LP+CA and LP+MA can improve the fermentation quality of Avena sativa silage, effectively inhibit protein degradation, and play an important role in improving the quality and safety of Avena sativa silage.

Cite this article

JIA Tingting , XU Zimeng , WANG Tiemei . Effects of Wilting and Additive Treatment on Quality and Protein Fractions of Avena sativa Silage[J]. Chinese Journal of Animal Nutrition, 2024 , 36(11) : 7371 -7382 . DOI: 10.12418/CJAN2024.627

燕麦(Avena sativa L.)是禾本科燕麦属的一年生草本植物,其耐贫瘠、产量高、品质好、富含蛋白质,是一种重要的粗饲料,在畜牧业稳定发展中发挥重要作用[1]。在干草制作过程中,容易受不良天气的影响出现发霉、腐烂,造成营养物质的损失。通过青贮的方式保存燕麦草,可以有效保持燕麦草原料的干物质(DM)、粗蛋白质(CP)、可溶性碳水化合物(WSC)等营养成分,降低酸性洗涤纤维(ADF)含量,改善饲用燕麦的利用率,能有效解决冬春季节粗饲料供给相对不足的问题[2]。胡张涛等[3]研究表明,在饲粮中添加燕麦青贮能提高肉牛免疫性能,改善肉品质。但燕麦原料上附着的乳酸菌数量较少,收获时含水量较高[4],在不使用添加剂的情况下自然发酵容易引起青贮饲料的DM损失及CP水解,影响青贮质量[5-6]。在青贮过程中使用添加剂是控制发酵进程的有效措施,因此如何通过各种添加剂提高燕麦青贮品质和改善营养成为主要研究内容。Liu等[7]在燕麦青贮中添加纤维素酶和木聚糖酶,可降低中性洗涤纤维(NDF)和ADF含量,增加乳酸菌的相对丰度,改善有氧稳定性。丙酸钙主要通过丙酸的产生减少燕麦青贮中的丁酸含量,抑制酵母菌和霉菌数量,降低淀粉和WSC等能量物质的消耗[6]。添加甲酸能有效抑制燕麦青贮中的酵母菌等不良微生物,减少营养物质的损失[8]。甲酸、丙酸、苯甲酸等有机酸添加剂的使用能快速降低青贮pH,抑制植物酶的活性和有害微生物的生长,减少蛋白质等营养物质的损失[9]。但目前丙酸、甲酸、苯甲酸有机酸添加剂也存在腐蚀性强、操作不便等问题,寻找腐蚀性小、安全高效的有机酸添加剂成为近年来的研究热点。
柠檬酸(CA)和L-苹果酸(MA)是生产中应用较多的有机酸添加剂,因其安全性和具有益生功能,被广泛应用于动物饲料中[10-13]。Ke等[14]指出,在青贮饲料中添加0.5%的CA或MA可以明显改善苜蓿青贮饲料的发酵和营养品质,减少苜蓿青贮过程中的蛋白质降解。燕麦作为优质的高蛋白质禾本科饲料作物,抑制其青贮过程中的蛋白质降解将有利于改善青贮饲料营养价值和提高反刍动物对氮的利用率。在燕麦中添加CA和MA,对其青贮品质和蛋白质组分的影响尚不明确。因此,本研究以高蛋白质禾本科饲料作物燕麦为研究对象,分析CA或MA处理后的饲用燕麦发酵效果和营养品质,探讨CA或MA对燕麦青贮品质和蛋白质组分的影响,以期为燕麦青贮高效安全有机酸添加剂的开发提供理论基础。

1 材料与方法

1.1 试验材料

青贮燕麦原料取自内蒙古自治区阿鲁科尔沁旗绍根镇(43̊21'43″~45̊24'20″N,119̊02'15″~121̊01'E),品种为燕王,于2021年10月初抽穗期收获,留茬高度5 cm。收获的燕麦原料分为2部分,一部分直接用于新鲜燕麦青贮饲料的调制,另外的一部分置于聚乙烯板上萎蔫约12 h后用于萎蔫燕麦青贮饲料的调制。乳酸菌筛选自饲草表面,经16S rDNA测序鉴定为植物乳杆菌(LP)[15],LP的接种量为1.0×10⁶ CFU/g鲜重(FW)。MA和CA纯度均>99%。

1.2 试验设计

采用双因素完全随机设计开展试验,对新鲜燕麦原料和萎蔫燕麦原料分别用蒸馏水(Con)、LP、CA、MA、LP和CA混合物(LP+CA)、LP和MA混合物(LP+MA)进行处理,每个处理3个重复。其中LP添加量为1×10⁶ CFU/g FW,CA和MA添加量为鲜重的0.5%。
燕麦原料均匀切割为1~2 cm的小段并混合均匀,将植物乳杆菌制剂加入10 mL蒸馏水中室温活化30 min后均匀喷洒至原料中。分别称取2.5 g CA和MA溶于10 mL蒸馏水中。每个处理3个重复,每个重复0.5 kg的燕麦原料,分别均匀喷洒10 mL活化的LP菌悬液、CA浑浊液和MA浑浊液,Con处理添加等量10 mL蒸馏水,装入青贮袋(25 cm×35 cm)中抽真空密封。所有青贮袋置于室温(25±2) ℃条件下避光储存45 d后,开封测定发酵品质、营养品质、氮组分和生物胺组分。

1.3 测定指标及方法

1.3.1 发酵品质的测定

开封后均匀混合燕麦青贮,取20 g青贮样品,加入180 mL蒸馏水,用组织捣碎机搅碎1 min,接着分别用4层纱布和定性滤纸过滤,得到的滤液保存于-20 ℃冰箱,用于pH、有机酸和氨态氮(NH3-N)含量的测定。pH采用玻璃电极pH计测定。参照许庆方等[16]的方法用SHIMADZE-10A型高效液相色谱仪测定燕麦青贮中乳酸(LA)、乙酸(AA)、丙酸(PA)和丁酸(BA)的含量;色谱柱:Shodex Rspak KC-811 S-DVB gel Column 30×8 mm(日本岛津公司),检测器为SPD-M10AVP,柱温50 ℃,流动相为3 mmol/L HClO4,进样体积为5 μL,检测波长210 nm,检测运行时间20 min。NH3-N含量采用苯酚-次氯酸比色法[17]测定。

1.3.2 营养品质的测定

燕麦原料和青贮饲料的DM含量采用GB/T 6435—2006[18]中的干燥法进行测定。烘干后的样品粉碎过40目筛装入自封袋用于CP、WSC、NDF和ADF含量的检测。燕麦原料和青贮饲料样品的CP含量采用凯氏定氮法[19]测定,采用蒽酮-硫酸比色法测定WSC含量[20],采用范式洗涤纤维法测定NDF和ADF含量[21]。半纤维素(HC)含量通过以下公式计算:
HC(%)=NDF(%)-ADF(%)。

1.3.3 非蛋白氮(NPN)和游离氨基酸氮(AA-N)含量的测定

称取0.5 g干燥样品,加入50 mL蒸馏水后混合均匀并静置30 min,然后加入10 mL 10%(w/v)三氯乙酸(TCA)后静置30 min,用定性滤纸过滤后弃去滤液,将滤纸连同样品共同转移到凯氏瓶中,采用凯氏定氮仪测定NPN含量[22]。取1.3.1燕麦青贮样品榨汁后的滤液40 mL与10 mL 25%(w/v)TCA混合并在4 ℃条件下静置过夜,之后将此溶液于18 000×g、4 ℃条件下离心15 min,取上清液用于AA-N含量的测定[17]

1.3.4 生物胺组分的测定

参照Nishino等[23]的方法测定青贮样品中生物胺的含量,称取2.5 g冷冻干燥的燕麦青贮样品于50 mL螺口离心管中,加入25 mL 5%(w/v)TCA,摇床振荡提取,转速为250 r/min,振荡60 min。提取液在1 800×g离心10 min,取上清液定容至25 mL容量瓶中。取提取液1 mL加入200 μL的2 mol/L NaOH溶液使之呈碱性,然后加入300 μL饱和碳酸氢钠进行缓冲,再加入1 mL的丹磺酰氯溶液,混合均匀后40 ℃避光反应45 min,取出后加入100 μL浓氨水去除残余的丹磺酰氯。室温静置30 min后,用乙腈调整至5 mL,在10 000×g离心5 min,上清液用0.22 μm的有机系滤器过滤,滤液用高效液相色谱检测生物胺含量。胺氮(BA-N)为样品总生物胺含量占总氮的比值(%TN)。液相条件:色谱柱为COSMOSIL 5C18-PAQ (4.6 mm×250 mm),柱温30 ℃,流动相A液为0.1 mol/L乙酸铵,B液为乙腈,流速0.8 mL/min,进样量20 μL,检测波长254 nm。梯度洗脱及流动相体积比例如表1所示。
表1 梯度洗脱及流动相体积比例

Table 1 Gradient elution and mobile phase volume ratio %

时间
Time/min
乙酸铵(A液)
Ammonium acetate (solution A)
乙腈(B液)
Acetonitrile (solution B)
0 50 50
25 10 90
35 10 90
45 50 50

1.4 统计分析

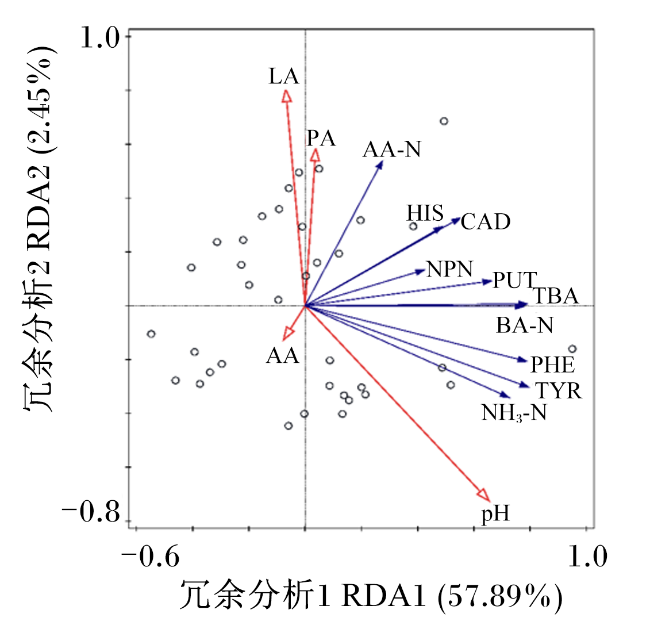
数据采用Excel 2016进行整理,采用SPSS 20.0统计软件中的一般线性模型对萎蔫(W)、添加剂(A)以及萎蔫和添加剂的交互效应(W×A)进行方差分析。采用Duncan氏多重比较法对不同添加剂之间的差异性进行比较分析,以P<0.05为差异显著,P<0.01为差异极显著。各个处理以平均值±标准差表示。采用Canoco5软件对燕麦青贮的发酵品质和氮组分、生物胺组分进行冗余分析(RDA)。

2 结 果

2.1 燕麦原料的营养成分

青贮前未萎蔫燕麦原料DM含量为19.12%,萎蔫燕麦原料DM含量为26.92%。未萎蔫燕麦原料的WSC、CP、NDF、ADF和HC含量分别为8.32%DM、12.36%DM、58.02%DM、33.46%DM和24.56%DM,萎蔫燕麦原料的WSC、CP、NDF、ADF和HC含量分别为9.15%DM、12.93%DM、58.27%DM、33.50%DM和24.76%DM(表2)。
表2 燕麦原料的营养成分

Table 2 Nutrient composition of Avena sativa raw material

项目Items 未萎蔫Unwilted 萎蔫Wilted
干物质Dry matter/% FW 19.12±0.11 26.92±0.25
可溶性碳水化合物Water-soluble carbohydrate/% DM 8.32±0.32 9.15±0.08
粗蛋白质Crude protein/% DM 12.36±0.09 12.93±0.15
中性洗涤纤维Neutral detergent fiber/% DM 58.02±0.66 58.27±0.81
酸性洗涤纤维Acid detergent fiber/% DM 33.46±0.70 33.50±0.73
半纤维素Hemicellulose/% DM 24.56±0.06 24.76±0.10

FW:鲜重fresh weight; DM:干物质dry matter。

2.2 不同添加剂对燕麦青贮发酵品质的影响

表3可知,加入了添加剂的燕麦青贮pH显著低于Con(P<0.05)。添加剂显著影响燕麦青贮乳酸和乙酸含量(P<0.05),萎蔫燕麦青贮饲料中CA和MA的乳酸和乙酸含量显著低于其他处理(P<0.05);添加剂对丙酸含量没有显著的影响(P>0.05),所有处理均没有检测到丁酸。萎蔫显著影响燕麦青贮的pH、乳酸和丙酸含量(P<0.05),萎蔫后燕麦青贮饲料的pH显著增加(P<0.05),乳酸和丙酸含量显著降低(P<0.05),萎蔫对乙酸含量没有显著影响(P>0.05)。萎蔫和添加剂的交互作用显著影响燕麦青贮的pH和丙酸含量(P<0.05)。
表3 不同添加剂对燕麦青贮发酵品质的影响

Table 3 Effects of different additives on fermentation quality of Avena sativa silage

项目
Items
pH 乳酸
Lactic acid/
% DM
乙酸
Acetic acid/
% DM
丙酸
Propionic acid/
% DM
丁酸
Butyric acid/
% DM
未萎蔫Unwilted
Con 4.19±0.02a 5.93±0.41a 0.86±0.06ab 1.18±0.33 ND
LP 4.09±0.02b 6.00±0.17a 1.03±0.28a 0.88±0.04 ND
CA 3.97±0.03c 4.43±0.22b 0.03±0.03b 1.01±0.11 ND
MA 3.86±0.02d 4.80±0.36ab 0.06±0.05b 0.80±0.12 ND
LP+CA 3.86±0.02d 5.30±0.46ab 0.50±0.48ab 0.74±0.04 ND
LP+MA 3.86±0.01d 5.60±0.68ab 0.71±0.39ab 0.81±0.13 ND
萎蔫Wilted
Con 5.14±0.10a 2.95±0.26a 0.54±0.22ab 0.68±0.16 ND
LP 4.65±0.07c 3.63±0.67a 0.97±0.16ab 0.31±0.16 ND
CA 4.94±0.01b 1.42±0.10b 0.01±0.01c 0.63±0.07 ND
MA 4.79±0.04bc 1.67±0.21b NDc 0.65±0.08 ND
LP+CA 4.23±0.02d 3.92±0.32a 1.46±0.27a 1.02±0.14 ND
LP+MA 4.17±0.02d 3.88±0.53a 1.01±0.17ab 0.93±0.14 ND
萎蔫效应Effect of wilting
未萎蔫Unwilted 3.97±0.03b 5.34±0.20a 0.53±0.13 0.90±0.07a
萎蔫Wilted 4.65±0.09a 2.91±0.28b 0.66±0.14 0.70±0.07b
主效应Main effect
W <0.001 <0.001 0.333 0.027
A <0.001 <0.001 <0.001 0.263
W×A <0.001 0.186 0.126 0.046

DM:干物质; ND:未检出。Con:对照; LP:植物乳杆菌; CA:柠檬酸; MA:L-苹果酸; LP+CA:乳酸菌和柠檬酸混合物; LP+MA:乳酸菌和L-苹果酸混合物。表4表5表6同。W:萎蔫效应; A:添加剂效应; W×A:W和A的交互效应。同一处理同列数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

DM: dry matter; ND: not detected。Con: control; LP: Lactobacillus plantarum; CA: citric acid; MA: L-malic acid; LP+CA: mixture of LP and CA; LP+MA: mixture of LP and MA。The same as Table 4, Table 5 and Table 6. W: effect of wilting; A: effect of additive; W×A: interaction effect of W and A. Values in the same column with different small letter superscripts mean significant differences (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same below。

2.3 不同添加剂对燕麦青贮营养品质的影响

表4可知,添加剂显著影响燕麦青贮的DM和WSC含量(P<0.05)。对于未萎蔫燕麦青贮,添加剂处理的DM含量显著高于Con(P<0.05)。所有处理中以CA和MA的WSC含量较高。添加剂对NDF、ADF、HC和CP含量没有显著的影响(P>0.05)。萎蔫后燕麦青贮的DM、NDF、HC和WSC含量显著增加(P<0.05),萎蔫对CP和ADF含量没有显著影响(P>0.05)。萎蔫和添加剂的交互作用显著影响燕麦青贮的WSC含量(P<0.05)。
表4 不同添加剂对燕麦青贮营养品质的影响

Table 4 Effects of different additives on nutritional quality of Avena sativa silage

项目
Items
干物质
DM/%
粗蛋白质
CP/% DM
中性洗涤纤维
NDF/% DM
酸性洗涤纤维
ADF/% DM
半纤维素
HC/% DM
可溶性碳
水化合物
WSC/% DM
未萎蔫Unwilted
Con 19.99±0.13d 12.78±0.61 54.34±0.72 32.33±0.83 22.00±0.29 0.93±0.04b
LP 20.40±0.05c 12.86±0.46 55.80±0.63 33.40±0.59 22.40±0.28 1.22±0.14b
CA 21.13±0.04ab 12.52±0.64 52.33±0.80 30.98±0.84 21.35±0.37 1.48±0.27ab
MA 20.91±0.13b 12.81±0.45 53.00±2.15 31.15±2.23 21.86±0.59 1.90±0.30a
LP+CA 21.30±0.15a 13.13±0.55 52.87±0.41 31.36±0.26 21.51±0.63 1.05±0.14b
LP+MA 21.20±0.08ab 13.39±0.41 52.28±2.10 31.06±1.73 21.23±0.84 1.20±0.11b
萎蔫Wilted
Con 28.87±0.09 12.66±0.57 56.59±1.33 32.64±0.19 23.95±1.58 1.47±0.29b
LP 29.38±0.37 12.67±0.32 55.43±3.08 32.33±2.67 23.10±1.11 0.69±0.15b
CA 29.79±0.62 12.62±0.29 56.20±1.67 32.10±1.07 24.10±1.98 2.53±0.18a
MA 28.76±0.18 12.90±0.43 55.71±0.69 32.15±3.03 23.56±2.37 2.81±0.49a
LP+CA 29.44±0.34 13.07±0.21 55.38±1.15 32.63±1.15 22.75±1.20 0.84±0.08b
LP+MA 29.18±0.52 13.34±0.52 55.65±0.35 32.68±2.73 22.97±2.65 1.17±0.12b
萎蔫效应Effect of wilting
未萎蔫Unwilted 20.82±0.12b 12.92±0.19 53.44±0.55b 31.71±0.42 21.73±0.18b 1.30±0.10b
萎蔫Wilted 29.24±0.16a 12.88±0.15 55.83±0.57a 32.42±0.59 23.41±0.55a 1.59±0.22a
主效应Main effect
W <0.001 0.883 0.011 0.395 0.018 0.038
A 0.016 0.590 0.800 0.929 0.959 <0.001
W×A 0.268 0.999 0.781 0.943 0.967 0.009

2.4 不同添加剂对燕麦青贮氮组分的影响

表5可知,未萎蔫燕麦青贮中Con的NPN、NH3-N、AA-N和BA-N含量分别为69.23%TN、9.54%TN、14.85%TN和12.61%TN,萎蔫后NPN、NH3-N、AA-N和BA-N含量分别为62.99%TN、11.52%TN、11.70%TN和11.03%TN。添加剂的使用显著降低了燕麦青贮的NPN、NH3-N、AA-N和BA-N含量(P<0.05)。其中,以LP+CA和LP+MA的NH3-N、AA-N和BA-N含量在所有处理中最低。萎蔫后燕麦青贮的NH3-N含量显著增加(P<0.05),而AA-N含量显著降低(P<0.05),萎蔫对NPN和BA-N含量没有显著影响(P>0.05)。萎蔫和添加剂的交互作用显著影响燕麦青贮的NPN、NH3-N和BA-N含量(P<0.05)。
表5 不同添加剂对燕麦青贮氮组分的影响

Table 5 Effects of different additives on nitrogen fractions of Avena sativa silage % TN

项目
Items
非蛋白氮
NPN
氨态氮
NH3-N
游离氨基酸态氮
AA-N
胺氮
BA-N
未萎蔫Unwilted
Con 69.23±1.86a 9.54±0.38a 14.85±0.59a 12.61±0.46a
LP 63.90±2.86ab 5.63±0.81b 14.43±1.17ab 5.02±0.46b
CA 55.47±0.81bc 6.88±0.29b 13.84±0.83ab 4.51±0.30b
MA 55.38±1.67bc 3.64±0.68c 12.44±0.29bc 3.01±0.32c
LP+CA 47.49±7.13c 1.59±0.03d 10.51±0.18c 1.09±0.23d
LP+MA 51.96±3.38c 1.74±0.17d 11.33±0.69c 0.59±0.15d
萎蔫Wilted
Con 62.99±1.04a 11.52±0.46a 11.70±0.03 11.03±0.78a
LP 51.19±2.10bc 10.76±0.22a 10.38±1.72 6.58±0.13b
CA 55.89±1.31ab 8.31±0.38b 11.38±0.20 5.21±0.25c
MA 59.59±2.29ab 5.89±0.94c 10.54±0.50 4.13±0.14d
LP+CA 49.74±1.62c 3.54±0.11d 8.88±0.23 0.88±0.04e
LP+MA 58.82±4.95abc 3.75±0.37d 9.90±0.92 0.91±0.05e
萎蔫效应Effect of wilting
未萎蔫Unwilted 57.24±2.15 4.84±0.71b 12.90±0.46a 4.47±0.97
萎蔫Wilted 56.37±1.44 7.30±0.78a 10.46±0.36b 4.79±0.85
主效应Main effect
W 0.635 <0.001 <0.001 0.121
A <0.001 <0.001 <0.001 <0.001
W×A 0.043 0.012 0.527 0.002

2.5 不同添加剂对燕麦青贮生物胺组分的影响

表6可知,燕麦青贮中的生物胺以苯乙胺、腐胺、尸胺和酪胺为主,约占所测生物胺总量的90%,组胺含量相对较低,未检测到色胺、亚精胺和精胺。添加剂处理中苯乙胺、腐胺、尸胺、组胺、酪胺和总生物胺含量显著低于Con(P<0.05)。未萎蔫燕麦青贮中,Con苯乙胺和组胺含量分别为183.3和4.7 mg/kg DM,添加剂处理未检测到苯乙胺和组胺含量;萎蔫燕麦青贮中,Con的组胺含量为1.3 mg/kg DM,添加剂处理未检测到组胺。LP+CA和LP+MA的腐胺、尸胺、酪胺和总生物胺含量在所有处理中最低。萎蔫后燕麦青贮的苯乙胺、酪胺和总生物胺含量显著增加(P<0.05),腐胺和尸胺含量显著降低(P<0.05)。萎蔫和添加剂的交互作用显著影响燕麦青贮的单个生物胺含量(P<0.05)。
表6 不同添加剂对燕麦青贮生物胺组分的影响

Table 6 Effects of different additives on biogenic amine composition of Avena sativa silage mg/kg DM

项目
Items
苯乙胺
PHE
腐胺
PUT
尸胺
CAD
组胺
HIS
酪胺
TYR
总生物胺
TBA
未萎蔫Unwilted
Con 183.3±11.4a 449.1±14.9a 1 185.8±2.7a 4.7±0.4a 748.2±47.3a 2 571.1±76.6a
LP NDb 293.5±17.4b 236.6±36.4c NDb 497.8±57.1b 1 027.9±84.3b
CA NDb 46.0±2.1c 558.4±78.3b NDb 293.5±51.1c 897.8±29.3b
MA NDb 33.3±1.6c 526.2±53.0b NDb 52.6±7.5d 612.2±53.5c
LP+CA NDb 24.0±0.0c 204.3±59.0cd NDb NDd 228.3±59.0d
LP+MA NDb 24.0±0.7c 100.5±37.1d NDb NDd 124.5±36.4d
萎蔫Wilted
Con 408.8±64.5a 290.9±37.5a 750.7±34.6a 1.3±0.8a 768.0±9.5a 2 219.7±95.9a
LP 56.6±12.9ab 288.5±19.4a 364.5±22.7b NDb 623.7±8.1b 1 333.4±43.2b
CA 91.0±3.0b 48.6±6.0b 260.9±10.4c NDb 650.1±42.8b 1 050.6±42.5c
MA 44.0±7.5ab 42.3±2.5b 240.0±26.3c NDb 527.0±37.3c 853.3±68.4d
LP+CA NDb 40.7±0.4b 54.3±11.4d NDb 89.6±3.2d 184.6±11.4e
LP+MA NDb 32.3±2.2b 63.3±10.2d NDb 98.0±10.4d 193.7±14.9e
萎蔫效应Effect of wilting
未萎蔫Unwilted 30.6±16.6b 145.0±40.4a 468.6±88.8a 0.8±0.4a 265.3±69.0b 910.3±197.3b
萎蔫Wilted 100.1±35.2a 123.9±28.9b 288.9±57.0b 0.2±0.2b 459.4±65.3a 972.5±170.3a
主效应Main effect
W <0.001 0.004 <0.001 <0.001 <0.001 0.030
A <0.001 <0.001 <0.001 <0.001 <0.001 <0.001
W×A <0.001 <0.001 <0.001 <0.001 <0.001 <0.001

2.6 燕麦青贮发酵品质和蛋白质降解产物关联分析

冗余分析分析结果显示,RDA1和RDA2解释率分别为57.89%和2.45%,2轴能解释60.34%的差异信息。燕麦青贮丙酸和AA-N、尸胺、组胺、NPN、腐胺和总生物胺含量呈正相关,pH和苯乙胺、酪胺和NH3-N含量呈正相关,乙酸和AA-N含量呈负相关(图1)。
图1 燕麦青贮发酵品质与蛋白质降解产物的冗余分析

LA:乳酸 lactic acid; AA:乙酸 acetic acid;PA:丙酸 propionic acid;NPN:非蛋白氮 non-protein nitrogen;NH3-N:氨态氮 ammonia nitrogen;AA-N:游离氨基酸态氮 free amino acid nitrogen;BA-N:胺氮 amine nitrogen;PHE:苯乙胺 phenethylamine;PUT:腐胺 putrescine;CAD:尸胺cadaverine;HIS:组胺 histamine;TYR:酪胺 tyramine;TBA:总生物胺total biogenic amine。

Fig.1 Redundancy analysis of fermentation quality and protein degradation products of Avena sativa silage

3 讨论

3.1 不同添加剂对燕麦青贮发酵品质的影响

pH是指示微生物活性和青贮发酵状态的关键指标,乳酸菌接种剂和有机酸通常应用于青贮饲料以促进pH下降并改善青贮饲料的发酵质量。本研究中添加剂显著降低了燕麦青贮的pH,比Con降低2.3%~19.0%,说明添加剂处理后燕麦青贮饲料保存良好。燕麦青贮饲料的主要有机酸是乳酸,平均约占有机酸总量的73.44%,乳酸具有较高的酸度(pKa=3.86),能够快速的降低pH[24]。本研究结果显示,接种LP的燕麦青贮乳酸产量很高,pH显著低于Con,因LP是同型发酵乳酸菌,在青贮过程中主要产生乳酸。CA和MA单独使用降低了燕麦青贮的乳酸含量,表明2种有机酸单独添加可能抑制青贮饲料乳酸菌的生长[14],但pH显著低于Con,这可能是由于2种有机酸抑制了蛋白酶的活性,降低了NPN、NH3-N、AA-N和BA-N等碱性物质的生成,这也通过氮组分的测定得到证实。将CA、MA与LP混合添加时,乳酸含量增加,说明CA或MA与LP混合添加能有效促进燕麦青贮饲料发酵进程[25-26]。丙酸和乙酸在燕麦青贮饲料中以少量水平存在,分别平均占有机酸总量的9.35%和1.10%,其中CA和MA单独添加时显著抑制燕麦青贮乙酸的生成。丁酸是比乳酸弱的酸,在青贮饲料中主要由梭菌分解己糖或乳酸生成,丁酸的大量生成将增加pH[27]。本研究中所有处理均没有检测出丁酸,表明燕麦青贮发酵过程中梭菌等不良微生物的生长被抑制。

3.2 不同添加剂对燕麦青贮营养品质的影响

添加剂显著影响燕麦青贮的DM和WSC。在青贮过程中,固体营养成分被转化成可溶性物质和气体,添加剂处理的DM含量高于Con,这可能是因为添加剂减少了DM损失,如Guo等[28]研究表明,由于抑制了梭菌属、肠杆菌属和酵母菌属等微生物,添加剂使青贮饲料的DM损失降低5.0%~7.8%。WSC是青贮饲料发酵过程中的重要因素,原料中约5%DM的WSC对于保障青贮饲料发酵质量至关重要[24]。本研究中,未萎蔫和萎蔫燕麦原料WSC含量分别为8.32%DM和9.15%DM,青贮过程中WSC被有效分解生成有机酸,以降低青贮饲料的pH并有效保存饲草[28]。青贮后,CA和MA单独添加的WSC含量最高,表明WSC的消耗较少,2种有机酸的添加直接降低了燕麦青贮饲料的pH并抑制了微生物的生长,从而降低了WSC的分解[14,29]。萎蔫降低了青贮过程中微生物对可溶性糖的利用程度,从而减少了青贮饲料中乳酸等有机酸的含量,这与前人研究结果[30-33]一致。燕麦青贮中CA和MA单独添加或与LP复合添加使NDF和ADF含量略有降低,可能是因为青贮过程中酸水解效应造成纤维素降解。

3.3 不同添加剂对燕麦青贮饲料氮组分的影响

青贮过程中,蛋白质被广泛降解为寡肽和游离氨基酸,后者进一步被降解为NH3-N和其他形式的NPN。减少青贮过程中蛋白质的降解是保存高质量青贮饲料的重要目标,蛋白质降解产生的NPN不仅降低青贮饲料质量[34],还会影响反刍动物对氮的吸收利用[35]。pH是影响青贮饲料蛋白质降解的重要因素,降低青贮饲料pH会抑制蛋白质降解,因为植物蛋白酶的活性会随着pH的降低而失活[36]。本研究发现,使用以CA、MA和LP组成的复合添加剂比单独使用2种有机酸添加剂或LP更能减少NH3-N、AA-N和BA-N的含量,原因可能是复合添加剂能快速酸化青贮饲料,从而降低蛋白酶的活性,抑制蛋白质水解。优质青贮饲料的NH3-N含量低于5%TN[37],本研究中未使用添加剂的燕麦青贮NH3-N含量在10%TN左右,这可能是由于脱氨作用增强而导致NH3-N含量升高,并可能降低燕麦青贮饲料的DM采食量[37]。与未萎蔫燕麦青贮相比,萎蔫燕麦青贮的AA-N含量显著减少,而NH3-N含量显著增加,这可能是因为青贮饲料蛋白质降解产物中AA-N主要受植物蛋白酶的影响,萎蔫燕麦青贮饲料较高的DM含量使渗透压增加,从而抑制了植物蛋白酶的水解活性减少AA-N的生成[33,38 -39];而NH3-N主要是微生物活动的终产物[27],萎蔫后燕麦青贮饲料的pH平均值为4.65,肠细菌等不良微生物的活动没有被抑制从而导致NH3-N含量增加。

3.4 不同添加剂对燕麦青贮饲料生物胺组分的影响

生物胺作为一种低分子质量含氮化合物在青贮过程中氨基酸脱羧反应形成,在玉米、苜蓿、燕麦、红三叶和黑麦草等青贮饲料中广泛存在[23,40 -43],可能会造成动物急性或亚急性中毒[44-45]。本研究中,燕麦青贮饲料的生物胺主要以苯乙胺、腐胺、尸胺和酪胺为主,约占总生物胺含量的90%。Con青贮饲料中总生物胺的含量高达2 571.1 mg/kg DM,且生物胺占总氮的比例为12.61%TN,与NH3-N占总氮的比例相近,说明生物胺能够在禾谷类青贮饲料中大量生成。目前有关青贮饲料中可能会对动物产生不利影响的最低生物胺含量尚没有限量标准,过高的生物胺含量可能会对动物产生不良影响。Fusi等[46]研究表明,在萨能奶山羊的饲粮中添加1.4 g混合生物胺影响其DM采食量。生物胺由氨基酸脱羧而生成,pH是影响氨基酸脱羧酶(EC 4.1.1.28)活性的重要因素[47]。CA、MA与LP复合添加能显著抑制燕麦青贮的苯乙胺、腐胺、尸胺和酪胺的形成,总胺含量与Con相比下降约85%以上,这可能与CA+LP和MA+LP较低的pH抑制氨基酸脱羧酶的活性有关。萎蔫后随燕麦青贮DM含量增加,生物胺组分中腐胺和尸胺含量降低,而苯乙胺和酪胺含量增加,并没有呈现一致的变化趋势,这可能是因为生物胺的生成受微生物活动、植物酶活性、pH等多种因素的影响[48]。虽然青贮饲料中NH3-N和生物胺分别通过脱氨反应和脱羧反应而单独生成,在本研究中,NH3-N与生物胺含量呈正相关,这与Nishino等[23]的研究结果相似,说明青贮饲料脱氨和脱羧代谢活动可能同时在氨基酸降解过程中发挥作用。

4 结论

与Con青贮饲料相比,LP、CA、MA、LP+CA以及LP+MA均能不同程度地改善燕麦青贮品质,其中以CA、MA与LP组成的复合添加剂有效降低了燕麦青贮的pH、NH3-N、AA-N和BA-N含量。与未萎蔫燕麦青贮相比,萎蔫燕麦青贮饲料的DM、NDF和WSC含量显著增加,而AA-N、腐胺和尸胺含量显著降低。综上所述,CA、MA与LP复合添加对蛋白质降解的抑制效果和燕麦青贮品质的提升优于单独添加LP。
[1]
任长忠, 胡跃高. 中国燕麦学[M]. 北京: 中国农业出版社, 2013.

REN C Z, HU Y G. Chinese oats studies[M]. Beijing: China Agriculture Press, 2013 (in Chinese)

[2]
JIA T T, WANG B, YU Z, et al. The effects of stage of maturity and lactic acid bacteria inoculants on the ensiling characteristics,aerobic stability and in vitro digestibility of whole-crop oat silages[J]. Grassland Science, 2021, 67(1):55-62.

[3]
胡张涛, 陈书礼, 倪洁, 等. 青贮燕麦和发酵杂交构树对肉牛生长性能、血清生化指标、肉品质以及肌肉组织学特性的影响[J]. 动物营养学报, 2022, 34(7):4474-4486.

DOI

HU Z T, CHEN S L, NI J, et al. Effects of oat silage and fermented hybrid Broussonetia papyrifera on growth performance,serum biochemical indices,meat quality and muscle histological characteristics of cattle[J]. Chinese Journal of Animal Nutrition, 2022, 34(7):4474-4486. (in Chinese)

[4]
李海萍, 关皓, 贾志锋, 等. 添加麦麸和乳酸菌对川西北高寒地区燕麦裹包青贮品质和有氧稳定性的影响[J]. 草地学报, 2023, 31(1):302-310.

DOI

LI H P, GUAN H, JIA Z F, et al. Effects of wheat bran and lactic acid bacteria on baled oat silage quality and aerobic stability in the alpine region of northwest Sichuan[J]. Acta Agrestia Sinica, 2023, 31(1):302-310. (in Chinese)

[5]
琚泽亮, 赵桂琴, 柴继宽, 等. 不同燕麦品种在甘肃中部的营养价值及青贮发酵品质综合评价[J]. 草业学报, 2019, 28(9):77-86.

DOI

JU Z L, ZHAO G Q, CHAI J K, et al. Comprehensive evaluation of nutritional value and silage fermentation quality of different oat varieties in central Gansu province[J]. Acta Prataculturae Sinica, 2019, 28(9):77-86. (in Chinese)

[6]
田吉鹏, 刘蓓一, 顾洪如, 等. 乳酸菌及丙酸钙对全株玉米和燕麦青贮饲料发酵品质和霉菌毒素含量的影响[J]. 草业学报, 2022, 31(8):157-166.

DOI

TIAN J P, LIU B Y, GU H R, et al. Effects of lactic acid bacteria and calcium propionate on fermentation quality and mycotoxin contents of whole plant maize and oat silages[J]. Acta Prataculturae Sinica, 2022, 31(8):157-166. (in Chinese)

[7]
LIU W, SI Q, SUN L, et al. Effects of cellulase and xylanase addition on fermentation quality,aerobic stability,and bacteria composition of low water-soluble carbohydrates oat silage[J]. Fermentation, 2023, 9(7):638.

[8]
陆永祥, 赵嫚, 陈良寅, 等. 布氏乳杆菌和甲酸对青藏高原不同物候期燕麦青贮饲料发酵品质和细菌群落的影响[J]. 草地学报, 2020, 28(6):1736-1743.

DOI

LU Y X, ZHAO M, CHEN L Y, et al. Effects of Lactobacillus buchneri and formic acid addition on fermentation quality and bacterial community of oat silage of different harvest stages in the Tibetan plateau[J]. Acta Agrestia Sinica, 2020, 28(6):1736-1743. (in Chinese)

[9]
YITBAREK M B, TAMIR B. Silage additives:review[J]. Open Journal of Applied Sciences, 2014, 4(5):258-274.

[10]
鲍文梅, 黄飞, 闯绍闯, 等. L-苹果酸对肉鸡生长性能、肉品质及抗氧化能力的影响[J]. 动物营养学报, 2023, 35(3):1572-1584.

DOI

BAO W M, HUANG F, CHUANG S H, et al. Effects of L-malic acid on growth performance,meat quality and antioxidant capacity of broilers[J]. Chinese Journal of Animal Nutrition, 2023, 35(3): 1572-1584. (in Chinese)

[11]
CHEN Y J, LUO L, ZHANG G Z, et al. Effect of dietary L-malic acid supplementation on growth,feed utilization and digestive function of juvenile GIFT tilapia Oreochromis niloticus (Linnaeus,1758)[J]. Journal of Applied Ichthyology, 2016, 32(6):1118-1123.

[12]
党文庆, 何敏, 上官明军, 等. 饲粮中复合添加马齿苋、柠檬酸和葡萄糖氧化酶对肉兔生长性能、屠宰性能以及免疫和抗氧化功能的影响[J]. 动物营养学报, 2024, 36(3):1857-1866.

DOI

DANG W Q, HE M, SHANGGUAN M J, et al. Effects of compound supplementation of purslane,citric acid and glucose oxidase on growth performance,slaughter performance,immune and antioxidant functions of meat rabbits[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1857-1866. (in Chinese)

[13]
刘杨, 康宇, 丁悦, 等. 基于柠檬酸处理的枸杞枝条发酵饲料对山羊生长、肉质的影响及其微生物群落[J]. 应用与环境生物学报, 2023, 29(1):70-78.

LIU Y, KANG Y, DING Y, et al. The effects of citric acid treatment on the growth,meat quality,and microbial community of Goji berry branches fermented feed in goats[J]. Chinese Journal of Applied & Environmental Biology, 2023, 29(1):70-78. (in Chinese)

[14]
KE W C, DING W R, XU D M, et al. Effects of addition of malic or citric acids on fermentation quality and chemical characteristics of alfalfa silage[J]. Journal of Dairy Science, 2017, 100(11):8958-8966.

DOI PMID

[15]
JIA T T, SUN Z Q, GAO R, et al. Lactic acid bacterial inoculant effects on the vitamin content of alfalfa and Chinese leymus silage[J]. Asian-Australas Journal of Animal Science, 2019, 32(12):1873-1881.

[16]
许庆方, 玉柱, 韩建国, 等. 高效液相色谱法测定紫花苜蓿青贮中的有机酸[J]. 草原与草坪, 2007(2):63-65,67.

XU Q F, YU Z, HAN J G, et al. Determining organic acid in alfalfa silage by HPLC[J]. Grassland and Turf, 2007(2):63-65,67. (in Chinese)

[17]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

[18]
中华人民共和国国家质量监督检验检疫总局, 中国国家标准化管理委员会. 饲料中水分和其他挥发性物质含量的测定:GB/T 6435—2006[S]. 北京: 中国标准出版社, 2007.

General Administration of Quality Supervision,Inspection and Quarantine of the People’s Republic of China, Standardization Administration of the People’s Republic of China. Determination of moisture and other volatile mater content in feeds:GB/T 6435—2006[S]. Beijing: Standards Press of China, 2007. (in Chinese)

[19]
国家市场监督管理总局, 中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation, Standardization Administration of the People’s Republic of China. Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[20]
MCDONALD P M, HENDERSON A R. Determination of water-soluble carbohydrates in grass[J]. Journal of the Science of Food and Agriculture, 1964, 15(6):395-398.

[21]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[22]
KAVANAGH F. Official methods of analysis of the AOAC international[M]. 13th ed. Arlington: William Horwitz,1980.

[23]
NISHINO N, HATTORI H, WADA H, et al. Biogenic amine production in grass,maize and total mixed ration silages inoculated with Lactobacillus casei or Lactobacillus buchneri[J]. Journal of Applied Microbiology, 2007, 103(2):325-332.

[24]
NI K K, WANG F F, ZHU B G, et al. Effects of lactic acid bacteria and molasses additives on the microbial community and fermentation quality of soybean silage[J]. Bioresource Technology, 2017,238:706-715.

[25]
PASSOS F V, FLEMING H P, HASSAN H M, et al. Effect of malic acid on the growth kinetics of Lactobacillus plantarum[J]. Applied Microbiology and Biotechnology, 2003, 63(2):207-211.

[26]
SEO S H, RHEE C H, PARK H D. Degradation of malic acid by Issatchenkia orientalis KMBL 5774,an acidophilic yeast strain isolated from Korean grape wine pomace[J]. Journal of Microbiology, 2007, 45(6):521-527.

[27]
ROOKE J A, HATFIELD R D. Biochemistry of ensiling[M]//BUXTON D R,MUCK R E,HARRISON J H. Silage science and technology. Madison,Wisconsin:American Society of Agronomy, 2003.

[28]
GUO J B, CUI X, SUN H, et al. Effect of glucose and cellulase addition on wet-storage of excessively wilted maize stover and biogas production[J]. Bioresource Technology, 2018,259:198-206.

[29]
JIANG F G, CHENG H J, LIU D, et al. Treatment of whole-plant corn silage with lactic acid bacteria and organic acid enhances quality by elevating acid content,reducing pH,and inhibiting undesirable microorganisms[J]. Frontiers in Microbiology, 2020,11:593088.

[30]
GORDON F J, PATTERSON D C, PORTER M G, et al. The effect of degree of grass wilting prior to ensiling on performance and energy utilisation by lactating dairy cattle[J]. Livestock Production Science, 2000, 64(2/3):291-294.

[31]
PURWIN C, PYSERA B, TOKARCZYK M, et al. Production results of dairy cows fed grass and alfalfa silage with a different degree of wilting[J]. Veterinarija ir Zootechnika, 2009, 46(68):60-66.

[32]
JOHANSEN M, HELLWING A L F, LUND P, et al. Metabolisable protein supply to lactating dairy cows increased with increasing dry matter concentration in grass-clover silage[J]. Animal Feed Science and Technology, 2017,227:95-106.

[33]
RUPP C, WESTREICHER-KRISTEN E, SUSENBETH A. Effect of wilting and lactic acid bacteria inoculant on in situ and in vitro determined protein value of grass silages[J]. Animal Feed Science and Technology, 2021,282:115115.

[34]
WANG J, WANG J Q, ZHOU H, et al. Effects of addition of previously fermented juice prepared from alfalfa on fermentation quality and protein degradation of alfalfa silage[J]. Animal Feed Science and Technology, 2009, 151(3/4):280-290.

[35]
GIVENS D I, RULQUIN H. Utilisation by ruminants of nitrogen compounds in silage-based diets[J]. Animal Feed Science and Technology, 2004, 114(1/4):1-18.

[36]
KUNG J L, BEDROSIAN M D. How well do we really understand silage fermentation?[C]// In Proceedings of the 2010 Cornell Nutrition Conference for Feed Manufacturers. Ithaca: Cornell University,2010:87-93.

[37]
HUHTANEN P, KHALILI H, NOUSIAINEN J I, et al. Prediction of relative intake potential of grass silage by dairy cows[J]. Livestock Production Science, 2002, 73(2/3):111-130.

[38]
WEBSTER J. The biochemistry of silage[M]. 2nd ed. Heron: Chalcombe Publications,1991.

[39]
SLOTTNER D, BERTILSSON J. Effect of ensiling technology on protein degradation during ensilage[J]. Animal Feed Science and Technology, 2006, 127(1/2):101-111.

[40]
JIA T T, YUN Y, YU Z. Propionic acid and sodium benzoate affected biogenic amine formation,microbial community,and quality of oat silage[J]. Frontiers in Microbiology, 2021,12:750920.

[41]
LI R R, ZHENG M L, ZHENG M H, et al. Metagenomic analysis reveals the linkages between bacteria and the functional enzymes responsible for potential ammonia and biogenic amine production in alfalfa silage[J]. Journal of Applied Microbiology, 2022, 132(4):2594-2604.

[42]
VAIČIULIENĖ G, BAKUTIS B, JOVAIŠIENĖ J, et al. Effects of ethanol extracts of origanum vulgare and thymus vulgaris on the mycotoxin concentrations and the hygienic quality of maize (Zea mays L.) silage[J]. Toxins, 2022, 14(5):298.

[43]
SCHERER R, GERLACH K, TAUBERT J, et al. Effect of forage species and ensiling conditions on silage composition and quality and the feed choice behaviour of goats[J]. Grass and Forage Science, 2019, 74(2):297-313.

[44]
HOEDTKE S, GABEL M, ZEYNER A. Der proteinabbau im futter während der silierung und veränderungen der zusammensetzung der rohproteinfraktion[J]. Übers.Tierernährg, 2010,38:157-179.

[45]
TIL H P, FALKE H E, PRINSEN M K, et al. Acute and subacute toxicity of tyramine,spermidine,spermine,putrescine and cadaverine in rats[J]. Food and Chemical Toxicology, 1997, 35(3/4):337-348.

[46]
FUSI E, ROSSI L, REBUCCI R, et al. Administration of biogenic amines to Saanen kids:effects on growth performance,meat quality and gut histology[J]. Small Ruminant Research, 2004, 53(1/2):1-7.

[47]
TEODOROVIC V, BUNCIC S, SMILJANIC D. A study of factors influencing histamine production in meat[J]. Fleischwirtschaft, 1994,74:181-183.

[48]
SCHERER R, GERLACH K, SÜDEKUM K H. Biogenic amines and gamma-amino butyric acid in silages:formation,occurrence and influence on dry matter intake and ruminant production[J]. Animal Feed Science and Technology, 2015,210:1-16.

Outlines

/