RESEARCH PAPER

Research on Biological Characteristics of Co-Fermentation Products of Swine-Derived Lactobacillus plantarum and Eucommia ulmoides Leaf Polysaccharides

  • WANG Jingxuan , 1 ,
  • XUE Jiajie 1, * ,
  • YANG Haifeng 1 ,
  • WANG Sirong 1 ,
  • XIE Xiaoyuting 1 ,
  • XU Xiaogang 2 ,
  • YU Wenqing 1 ,
  • CAO Zhaoli , 1, ** ,
  • CHEN Xiaolan , 1, **
Expand
  • 1 Jiangsu Agri-Animal Husbandry Vocational College, Taizhou 225300, China
  • 2 Wuhan Institute of Technology, Wuhan 430205, China
** CAO Zhaoli, teaching assistant, E-mail: ;
CHEN Xiaolan, associate professor, E-mail:

* Contributed equally

Received date: 2024-04-22

  Online published: 2024-11-09

Abstract

The aim of this experiment was to study the biological characteristics of the co-fermentation products of a strain of swine-derived Lactobacillus plantarum (S.L. plantarum) and Eucommia ulmoides leaf polysaccharides (ELP), and to explore the possibility of using it as a feed additive. Firstly, three strains of probiotics were isolated and identified from fresh feces of healthy pigs, and the probiotic with the best antibacterial activity and growth activity was selected for co-fermentation with ELP. Then, the optimal fermentation time was determined based on the strength of antibacterial effects. At the same time, the effects of temperature, pH and pepsin treatment on the antibacterial activity and the effects of artificial gastrointestinal fluid treatment on the viable bacteria count of the co-fermentation products were measured. Finally, the acute oral toxicity experiment of the co-fermentation liquid was carried out. The results showed as follows: 1) among the three probiotics, S.L. plantarum had the highest viable bacteria number and the strongest antibacterial activity, and co-fermentation with ELP significantly increased its viable bacteria number (P<0.05), while significantly improved its antibacterial activity (P<0.05). Based on this, the optimal co-fermentation time of S.L. plantarum and ELP was confirmed to be 12 to 24 h. 2) Temperature had no significant effect on the antibacterial activity of the co-fermentation products (P>0.05), but high pH (pH>4) and high concentration of pepsin inhibited the antibacterial activity of the products, suggesting that the possible material basis of the antibacterial activity was organic acids and small molecule polypeptides. 3) The gastrointestinal tolerance of S.L. plantarum was significantly improved by co-fermentation of S.L. plantarum and ELP, and the co-fermentation solution had no acute toxicity to mice. In conclusion, the co-fermentation of S.L. plantarum and ELP can significantly improve its antibacterial activity and gastrointestinal tolerance, which is suitable for oral administration, and has the possibility of developing into a new antibacterial feed additive.

Cite this article

WANG Jingxuan , XUE Jiajie , YANG Haifeng , WANG Sirong , XIE Xiaoyuting , XU Xiaogang , YU Wenqing , CAO Zhaoli , CHEN Xiaolan . Research on Biological Characteristics of Co-Fermentation Products of Swine-Derived Lactobacillus plantarum and Eucommia ulmoides Leaf Polysaccharides[J]. Chinese Journal of Animal Nutrition, 2024 , 36(11) : 7422 -7434 . DOI: 10.12418/CJAN2024.631

研究发现,许多抗菌药物不但具有预防和治疗疾病的作用,还可通过多种途径促进动物机体对营养物质的吸收,起到促生长的作用[1]。然而,饲粮中长期、多品种复合添加抗菌药导致了严重的细菌耐药性问题[2-5]。我国农业农村部宣布自2020年7月1日起,停止生产含有促生长类药物饲料添加剂(中药类除外)的商品饲料。“十三五”以来,农业农村部狠抓兽用抗菌药综合治理,着重提升监管治理效能,全面实施兽用抗菌药使用减量化行动,重点开展抗生素替代产品的研发与应用。
微生态制剂是一类绿色安全、无毒无害、无残留以及环境友好的生物添加剂,益生菌是其最重要的一种[6]。在肠道定植后,益生菌具有抑制肠道致病微生物、促进肠道健康以及预防腹泻等功能[7-8]。中药作为中华医学的瑰宝,在养殖业中同样功效突出,其提取物具有促生长、增强免疫和减轻应激等特性[9-10];同时,中药提取物含有的多种生物活性成分可在动物体内通过多靶点发挥药效,减少耐药性的产生。然而,益生菌和中药二者在实际生产应用中也存在缺陷,如益生菌胃肠耐受性差、活性低,而中药提取物价格高、单独使用作用不显著等[11-13]
鉴于中药提取物与益生菌在动物养殖中的优劣特点,若将二者共发酵,则中药提取物中的多种营养成分可能会为益生菌提供更为充足的营养,促进其增殖;而益生菌在发酵过程中产生的多种酶又能促进中药提取物的代谢,有利于中药成分在肠道的吸收,从而大幅提升抗菌作用和免疫调节能力。目前,以微生态制剂和中药提取物为主要成分的抗菌促生长类饲料添加剂已成为畜禽养殖业研究的热点[14-18]
杜仲(Eucommia ulmoides)也称胶木,为杜仲科、杜仲属植物,其树皮、树叶是我国传统中药材。研究表明,杜仲叶具有广泛的药理作用,其不但可以促生长,提高家禽产蛋率,还能够提升小鼠免疫能力,具有免疫增强的功效[19-22]。鉴于此,本研究拟从健康猪新鲜粪便中分离鉴定益生菌,通过生长曲线和活菌数测定,并结合几种益生菌体外对3种畜禽常见病原菌大肠埃希氏菌(Escherichia coli,E. coli)、金黄色葡萄球菌(Staphylococcus aureus,S. aureus)和豕链球菌(Streptococcus porcinus,S. porcinus)的抑菌效果,综合筛选获得最佳益生菌菌株;再用杜仲叶多糖(Eucommia ulmoides leaf polysaccharides,ELP)与益生菌共发酵,根据抑菌作用强度大小确定最佳发酵时间;比较不同发酵温度、pH和胃蛋白酶对共发酵液抗菌性能的影响,判定其可能的抗菌物质基础;考察共发酵液对人工胃肠液的耐受性,为将ELP和猪源益生菌共发酵液开发为新型动物饲料添加剂奠定基础。

1 材料与方法

1.1 试验材料和试验仪器

1.1.1 试验材料

E. coli CMCC(B)44102和S. aureus CMCC(B)26003均购自中国食品药品检定研究院,S. porcinus ATCC43138购自广东省微生物菌种保藏中心;猪源植物乳植杆菌(swine-derived Lactobacillus plantarum,S.L. plantarum)从健康家猪中分离,经中国农业微生物菌种保藏管理中心鉴定。杜仲叶购自亳州市六顺堂药业有限公司,经检测符合药典质量要求。
ELP的制备:取杜仲叶洗净后,分别加20倍水,煎煮2次,第1次2 h,第2次1 h,4层纱布过滤,合并滤液,60 ℃干燥浓缩后,加入95%乙醇醇沉,使乙醇终浓度为70%;沉淀干燥后制得ELP。
人工胃液配制[13]:参考2020版《中国药典》配制,取16.4 mL稀盐酸,加800 mL水与10 g胃蛋白酶(购自Sigma公司,活性≥2 500 U/mg prot),混匀后,加水稀释至1 000 mL,即得;使用前经0.22 μm无菌过滤器过滤。
人工小肠液配制[14]:取6.8 g磷酸二氢钾,加500 mL水溶解,用0.1 mol/L氢氧化钠溶液调节pH至6.8,取10 g胰蛋白酶(购自Sigma公司,活性为1 400 FIP-U/g),加适量水使其溶解,将上述2种液体混合,加水稀释至1 000 mL即得;使用前经0.22 μm无菌过滤器过滤。
胰酪大豆胨液体培养基(TSB)和胰酪大豆胨琼脂培养基(TSA)购于北京三药科技有限公司;MRS肉汤和MRS琼脂培养基购于北京陆桥技术股份有限公司;脱纤维无菌羊血购于石药集团巨石生物制药有限公司;胃蛋白酶购于北京索莱宝科技有限公司;其余生化试剂均购于国药集团化学试剂有限公司。

1.1.2 试验仪器

超净工作台(SW-CJ-2FD),苏州净化设备有限公司;恒温恒湿培养箱(LC-HSP-7OBE),上海力辰邦西仪器科技有限公司;pH计(PHSJ-3F),深圳市力达信仪器有限公司;立式压力蒸汽灭菌器(GR60SA),致微(厦门)仪器有限公司;电子天平(HZK-FA110S),福州华志科学仪器有限公司;高速台式离心机(Fresco17),赛默飞世尔科技(中国)有限公司;数显恒温水浴锅(HH-501),金坛市医疗仪器厂。

1.2 试验方法

1.2.1 益生菌的分离与鉴定

采集10 g健康猪群的新鲜粪便,置于盛有90 mL 0.9%无菌氯化钠溶液并加适量玻璃珠的三角瓶中,充分振荡混匀;然后取1 mL粪便溶液用9 mL 0.9%无菌氯化钠溶液进行10倍梯度稀释至10-10,取稀释梯度10-10~10-3的粪便溶液各100 μL,涂布于新制的MRS固体培养基上,置于37 ℃厌氧环境中恒温培养24~48 h;将分离出的菌株划线接种在MRS固体培养基上做纯种培养,观察其菌落形态并进行革兰氏染色,然后进行分类,依据分类结果将获得的纯种培养菌株寄送通用生物(安徽)股份有限公司进行16S rDNA测序,测序结果上传NCBI进行BLAST序列比对,选取同源性最高的10株菌;采用MEGA 7.0软件,以邻接法(NJ法)构建系统进化树,进化树各分枝的置信度自举检测(bootstrap test)1 000次,确定送检菌种种属;根据鉴定结果,构建猪源肠道益生菌菌群库,并对确定的猪源益生菌进行编号。

1.2.2 益生菌的抑菌活性筛选

1.2.2.1 不同益生菌生长曲线比较

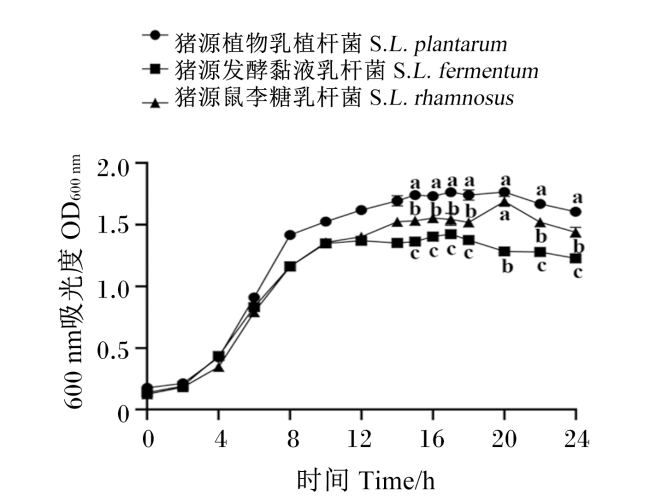
取分离的3株猪肠道益生菌,分别接种于10 mL的MRS液体培养基,置于37 ℃恒温箱培养18~24 h,复苏;取复苏后的菌种0.1 mL,接种于10 mL MRS液体培养基中,37 ℃恒温培养,分别在0、2、4、6、8、10、12、14、15、16、17、18、20、22和24 h时,测定培养液在600 nm下的吸光度(OD600 nm)值。以时间(h)为横坐标,OD600 nm值为纵坐标,绘制生长曲线,比较3株益生菌的生长情况。

1.2.2.2 不同益生菌活菌数比较

取3株益生菌,使其生长至平台期时取0.1 mL菌液,加入到0.9 mL的0.9%无菌氯化钠溶液中,10倍稀释至10-8,取稀释梯度10-8~10-6的菌悬液0.1 mL置于平皿中,用MRS琼脂培养基浇注平皿,37 ℃厌氧培养至平台期,计数菌落总数,比较3株益生菌在平台期的活菌数差异。

1.2.2.3 不同益生菌抑菌作用比较

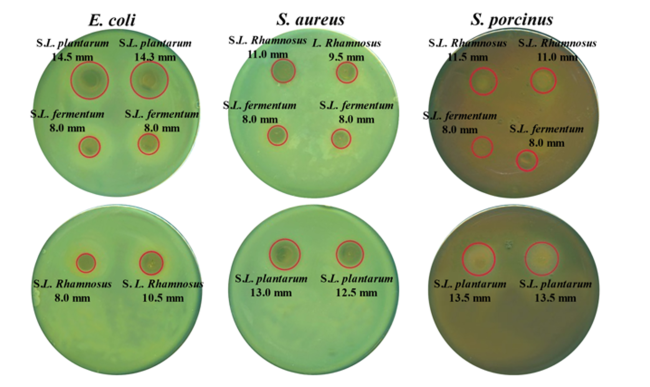
分别取E. coliS. aureus新鲜培养液,稀释10倍后,取0.6 mL加入到TSA平皿中;取S. porcinus新鲜培养液,稀释10倍后,取0.6 mL加入血琼脂平皿中。用无菌棉签将上述菌液涂抹均匀,在生物安全柜中吹干,备用;取生长至平台期的新鲜益生菌菌液,5 000×g离心5 min,用0.22 μm的无菌滤器过滤上清后即制得原液,备用;在涂满菌液的平皿上均匀放置牛津杯,向每个牛津杯中分别加入200 μL益生菌原液,每种益生菌做4个平行,盖上陶瓦盖,置于37 ℃培养箱中培养18~24 h后,测量抑菌圈直径,比较不同益生菌的抑菌活性。

1.2.3 ELP对最佳益生菌抑菌活性和活菌数的影响

结合1.2.2中益生菌筛选的结果,获得具有最强抑菌作用的益生菌。

1.2.3.1 ELP与最佳益生菌共发酵产物的制备

通过向筛选获得的最佳益生菌培养液MRS肉汤培养基中加入适量ELP,使ELP终浓度为10 mg/mL,再按照1%的比例接种该益生菌,37 ℃培养18 h,取上清滤菌后制得共发酵产物。

1.2.3.2 最佳发酵时间的确定

共发酵时间分别设为3、6、12、18、24和48 h,在相应的时间点按1.2.3.1的方法制备共发酵产物,并按1.2.2.3方法进行抑菌试验,同时设立未进行共发酵的对照。根据抑菌作用强度大小确定最佳发酵时间。

1.2.3.3 ELP对最佳益生菌活菌数的影响

将最佳益生菌与ELP共发酵产物在培养12、24和48 h时分别按1.2.2.2所述方法进行活菌计数,观察ELP对最佳益生菌活菌数的影响。

1.2.3.4 ELP与最佳益生菌共发酵产物抑菌作用比较

按1.2.2.3中方法进行抑菌试验,以最佳益生菌为对照,通过测定抑菌圈直径观察ELP对最佳益生菌抑菌性能的调节作用。

1.2.4 抑菌活性物质基础的推测

1.2.4.1 温度对共发酵产物抑菌活性的影响

取5份共发酵产物分别放入50、60、70、80、90和100 ℃的电热金属浴中保温处理20 min后,按1.2.2.3进行抑菌试验,比较抑菌效果差异,分析共发酵产物的抑菌活性成分是否受温度影响。

1.2.4.2 pH对共发酵产物抑菌活性的影响

取共发酵产物,以0.1 mol/L盐酸或氢氧化钠溶液调节pH分别至2.0、3.0、4.0、5.0、6.0、7.0、8.0和9.0;取空白的MRS培养基调节至相应的pH作为对照。按1.2.2.3进行抑菌试验,比较抑菌效果差异,分析共发酵产物的抑菌活性成分是否受酸碱度影响。

1.2.4.3 酶处理对共发酵产物抑菌活性的影响

取3支离心管,每支分装10 mL共发酵产物,同时测定其初始pH。之后向各管中分别加入胃蛋白酶溶液,使其终活性分别0、100和200 U,将标记胃蛋白酶的共发酵产物调节pH至2.0,放入37 ℃培养18~24 h。取培养后的含酶共发酵产物,将其pH调节至初始pH。按1.2.2.3进行抑菌试验,观察抑菌效果,分析共发酵产物的抑菌活性成分是否受胃蛋白酶的影响。

1.2.5 共发酵液对人工胃肠液的耐受性

分别取0.5 mL益生菌原液和ELP-益生菌共发酵液,加入装有4.5 mL的人工小肠液或人工胃液的试管中,人工小肠液或人工胃液试管各制备12管,将上述试管每3管为1组,37 ℃培养,在培养0、1、2和3 h时取出试管并按1.2.2.2进行活菌计数。

1.2.6 共发酵液急性经口毒性试验

根据GB 15193.3—2014急性经口毒性试验,采用限量法进行ELP-益生菌共发酵产物的小鼠急性经口毒性试验。取无特定病原体(SPF)级昆明小鼠20只(雌雄各1/2),雌性小鼠体重为18.2~21.1 g,雄性小鼠体重为20.0~21.8 g,按照每10 g体重0.1 g单次经口灌胃上述共发酵液,之后连续观察14 d,期间观察并记录动物死亡情况和中毒症状,于第15天安乐死所有小鼠,进行大体剖检。

1.3 数据统计分析

试验数据采用SPSS 18.0软件进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较,S.L. plantarum与ELP共发酵活菌计数结果和人工胃肠液耐受性试验结果采用t检验,结果数据采用“平均值±标准差(mean±SD)”形式表示,P<0.05表示差异显著;采用GraphPad Prism 8.0软件进行绘图。

2 结果与分析

2.1 益生菌的分离与鉴定

通过对健康猪群新鲜粪便菌群进行分离培养,共获得106株纯种培养菌株,通过16S rDNA引物扩增获得基因片段,并在NCBI上进行BLAST比对,利用MEGA 7.0软件构建遗传进化树,最终筛选到3株菌。结果显示,3株菌株的16S rDNA序列分别与植物乳植杆菌(Lactobacillus plantarum,L. plantarum)、发酵黏液乳杆菌(Lactobacillus fermentum,L. fermentum)和鼠李糖乳杆菌(Lactobacillus rhamnosus,L. rhamnosus)序列同源性为100%。结合其形态学特征,确定筛选得到的3株菌株分别为S.L. plantarum、猪源发酵黏液乳杆菌(swine-derived Lactobacillus fermentum,S.L. fermentum)和猪源鼠李糖乳杆菌(swine-derived Lactobacillus rhamnosus,S.L. rhamnosus)。

2.2 益生菌的抑菌活性筛选

2.2.1 不同益生菌生长曲线和活菌数比较

由生长曲线(图1)可知,3株益生菌的对数生长期为2~8 h,最适培养时间为15~24 h,S.L. plantarum在最适培养时间内保持较高的吸光度值,在大部分时间点OD600 nm值显著高于S.L. fermentum与S.L. rhamnosus(P<0.05);活菌计数(表1)结果显示S.L. plantarum平台期活菌数为(18.00±0.82)×108 CFU/mL,显著高于S.L. fermentum和S.L. rhamnosus(P<0.05)。结果表明,S.L. plantarum具有更好的生长优势。
图1 3株益生菌生长曲线

不同小写字母表示同一时间点差异显著(P<0.05)。

Fig.1 Growth curves of three strains of probiotics

Different lowercase letters indicate significant difference at the same time point (P<0.05).

表1 3株益生菌平台期活菌数

Table 1 Number of viable bacteria in plateau stage of three strains of probiotics ×108 CFU/mL

项目Items 活菌数Number of viable bacteria
猪源植物乳植杆菌S.L. plantarum 18.00±0.82a
猪源发酵黏液乳杆菌S.L. fermentum 14.32±0.47b
猪源鼠李糖乳杆菌S.L. rhamnosus 11.83±0.62c

同列数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。表2表3表5表6表8同。

In the same column, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as Table 2, Table 3, Table 5, Table 6 and Table 8.

2.2.2 不同益生菌抑菌作用比较

不同益生菌抑菌作用的测定结果见表2图2。结果显示,S.L. plantarum原液对E. coli的抑菌圈直径为(14.40±0.14) mm,显著大于其他2种益生菌(P<0.05);S.L. plantarum原液对S. aureus的抑菌圈直径为(12.75±0.90) mm,显著大于S.L. fermentum(P<0.05);S.L. plantarum原液对S. porcinus的抑菌圈直径为(13.50±1.22) mm,显著大于S.L. fermentum(P<0.05)。以上结果表明,S.L. plantarumE. coliS. aureusS. porcinus的抑菌作用最强。
表2 3株益生菌原液抑菌效果比较

Table 2 Comparison of antibacterial effects of three strains of probiotic stock solutions mm

项目
Items
平均抑菌圈直径Mean inhibition zone diameter
大肠埃希氏菌E. coli 金黄色葡萄球菌S. aureus 豕链球菌S. porcinus
猪源植物乳植杆菌S.L. plantarum 14.40±0.14a 12.75±0.90a 13.50±1.22a
猪源发酵黏液乳杆菌S.L. fermentum 8.00±0.67b 8.00±0.63b 8.00±0.91b
猪源鼠李糖乳杆菌S.L. rhamnosus 9.25±0.76b 10.25±0.98ab 11.25±1.15a
图2 3株益生菌的抑菌效果

E. coli:大肠埃希氏菌 Escherichia coli;S. aureus:金黄色葡萄球菌 Staphylococcus aureus;S. porcinus:豕链球菌 Streptococcus porcinus;S.L. plantarum:猪源植物乳植杆菌 swine-derived Lactobacillus plantarum;S.L. fermentum:猪源发酵黏液乳杆菌 swine-derived Lactobacillus fermentum;S.L. rhamnosus:猪源鼠李糖乳杆菌 swine-derived Lactobacillus rhamnosus

Fig.2 Antibacterial effect of three strains of probiotics

2.3 ELP对S.L. plantarum抑菌活性的影响

2.3.1 共发酵产物最佳发酵时间的确定

表3可知,0~18 h,共发酵产物对E. coliS. aureusS. porcinus的抑菌活性随发酵时间的推移而上升,在发酵18 h时达到最高水平,24和48 h发酵时间点的抑菌圈直径尽管稍有变化,但未出现显著差异(P>0.05)。与共发酵产物相比,未进行共发酵的S.L. plantarum在各发酵时间点的抑菌圈直径均小于前者;单纯使用ELP进行测定未出现肉眼可见的抑菌圈。结果表明,为获得最佳的抑菌效果,共发酵时间应>18 h,因此选择18~48 h为最佳发酵时间。
表3 不同发酵时间下S.L. plantarum与ELP共发酵产物的抑菌效果

Table 3 Antibacterial effects of co-fermentation products of S.L. plantarum and ELP at different fermentation time mm

发酵时间
Fermentation
time/h
平均抑菌圈直径Mean inhibition zone diameter
大肠埃希氏菌E. coli 金黄色葡萄球菌S. aureus 豕链球菌S. porcinus
猪源植物乳植
杆菌+杜仲叶多糖
S.L. plantarum+
ELP
猪源植物
乳植杆菌
S.L. plantarum
猪源植物乳植
杆菌+杜仲叶多糖
S.L. plantarum+
ELP
猪源植物
乳植杆菌
S.L. plantarum
猪源植物乳植杆
菌+杜仲叶多糖
S.L. plantarum+
ELP
猪源植物
乳植杆菌
S.L. plantarum
0 7.80±0.55c 6.90±1.04c 6.90±0.57c 5.80±1.23c 7.30±0.33d 6.80±1.05c
3 11.20±1.12bc 8.90±0.62bc 12.00±0.85b 8.30±0.35bc 12.22±1.23c 10.30±1.28bc
6 14.80±1.65ab 11.90±1.04ab 16.50±1.95a 11.00±0.56a 16.50±1.44bc 11.90±0.64ab
12 16.50±2.01a 14.40±1.31a 16.90±1.45a 12.20±1.20a 20.95±1.91ab 13.50±0.11a
18 18.20±1.99a 14.20±0.85a 17.05±2.01a 12.10±0.63a 21.65±1.78a 13.90±0.58a
24 18.10±1.46a 13.80±1.55a 17.10±1.71a 10.20±0.65ab 20.78±2.01ab 11.90±0.63ab
48 17.99±1.25a 12.10±0.74ab 17.25±1.58a 9.33±1.15ab 21.55±1.97a 10.80±0.27ab

2.3.2 ELP对S.L. plantarum活菌数的影响

表4可知,12和24 h时,S.L. plantarum与ELP共发酵后益生菌活菌数分别为(30.10±2.99)×108 CFU/mL和(30.80±2.43)×108 CFU/mL,显著高于S.L. plantarum对照在相应时间点的活菌数(P<0.05);48 h时,共发酵液与S.L. plantarum对照活菌数均下降至1×10⁸ CFU/mL以下,两者之间无显著差异(P>0.05)。以上结果表明,S.L. plantarum与ELP共发酵,在培养至12 ~24 h可显著促进S.L. plantarum的增殖,但随着时间的继续延长,活菌数会逐渐下降,此时ELP的协同作用不明显。
表4 S.L. plantarum与ELP共发酵活菌计数结果

Table 4 Counting results of viable bacteria in S.L. plantarum and ELP co-fermentation ×108 CFU/mL

时间
Time/h
活菌数Number of viable bacteria
猪源植物乳植杆菌S.L. plantarum 猪源植物乳植杆菌+杜仲叶多糖S.L. plantarum+ELP
12 17.40±2.01b 30.10±2.99a
24 14.50±1.14b 30.80±2.43a
48 0.54±0.16a 0.40±0.24a

同行数字肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05).

2.3.3 S.L. plantarum与ELP共发酵产物抑菌作用比较

表5可知,ELP单独对E. coliS. aureusS. porcinus这3种细菌无抑菌作用。与S.L. plantarum相比,S.L. plantarum与ELP共发酵产物能显著增大对3种细菌的抑菌圈直径(P<0.05)。结果表明,ELP能显著提高S.L. plantarum的抑菌性能。
表5 S.L. plantarum与ELP共发酵产物的抑菌效果

Table 5 Antibacterial effects of co-fermentation products of S.L. plantarum and ELP mm

项目
Items
平均抑菌圈直径Mean inhibition zone diameter
大肠埃希氏菌
E. coli
金黄色葡萄球菌
S. aureus
豕链球菌
S. porcinus
杜仲叶多糖ELP 0.00±0.00c 0.00±0.00c 0.00±0.00c
猪源植物乳植杆菌S.L. plantarum 12.48±1.41b 13.25±0.90b 13.38±1.22b
猪源植物乳植杆菌+杜仲叶多糖S.L. plantarum+ELP 18.10±0.74a 17.33±0.55a 21.45±0.88a

2.4 抑菌活性物质基础的推测

2.4.1 温度对共发酵产物抑菌活性的影响

表6可知,在50~100 ℃温度区间内,共发酵产物对3种细菌的抑菌性不随温度发生显著改变(P>0.05),这表明其抑菌活性不受温度的影响,对热不敏感。
表6 不同温度下S.L. plantarum与ELP共发酵产物的抑菌效果

Table 6 Antibacterial effects of co-fermentation products of S.L. plantarum and ELP at different temperatures mm

温度
Temperature/℃
平均抑菌圈直径Mean inhibition zone diameter
大肠埃希氏菌E. coli 金黄色葡萄球菌S. aureus 豕链球菌S. porcinus
50 18.90±0.82 17.35±0.72 16.53±0.50
60 18.70±0.82 16.97±0.90 17.08±1.05
70 18.80±0.48 17.00±1.81 16.87±0.47
80 18.00±0.38 16.69±1.00 14.69±1.02
90 17.30±0.71 16.88±0.92 16.29±0.36
100 17.56±0.49 16.88±0.97 17.21±1.02

2.4.2 pH对共发酵产物抑菌活性的影响

表7可知,当pH为4~5时,共发酵产物对于E. coli的抑菌圈直径显著大于对照(P<0.05);当pH为2~5时,共发酵产物对于S. aureus的抑菌圈直径显著大于对照(P<0.05);当pH为2~3时,共发酵产物对于S. porcinus的抑菌圈直径显著大于对照(P<0.05);当pH≥6之后,共发酵产物与对照的抑菌能力均丧失,未产生肉眼可见的抑菌圈。就共发酵产物本身而言,当pH>4后,其对E. coliS. aureus的抑菌能力开始迅速下降;其对S. porcinus的抑菌能力则在pH>3后迅速下降。结果提示,共发酵产物中存在酸性物质,这些酸性物质可能是产生抗菌性能的物质基础。
表7 不同pH下S.L. plantarum与ELP共发酵产物的抑菌效果

Table 7 Antibacterial effects of co-fermentation products of S.L. plantarum and ELP under different pH mm

pH 平均抑菌直径Mean inhibition zone diameter
大肠埃希氏菌E. coli 金黄色葡萄球菌S. aureus 豕链球菌S. porcinus
猪源植物乳植杆
菌+杜仲叶多糖
S.L. plantarum+
ELP
对照
Control
猪源植物乳植杆
菌+杜仲叶多糖
S.L. plantarum+
ELP
对照
Control
猪源植物乳植杆
菌+杜仲叶多糖
S.L. plantarum+
ELP
对照
Control
2 18.20±1.91a 16.50±1.81ab 18.65±2.05a 14.20±1.51b 23.30±2.44a 16.95±1.99bc
3 19.90±2.03a 16.05±1.75ab 19.90±2.13a 12.30±1.56b 19.05±2.01ab 14.35±1.54cd
4 19.90±1.88a 13.10±1.22b 18.20±1.91a 12.30±1.33b 14.80±1.32cd 11.05±1.43cd
5 15.65±1.43ab 8.50±0.98c 14.40±1.54b 8.50±0.91c 11.90±1.21cd 9.30±1.00d
≥6 0.00±0.00d 0.00±0.00d 0.00±0.00d 0.00±0.00d 0.00±0.00e 0.00±0.00e

同一种细菌肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。

In the same bacterial species, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05).

2.4.3 酶处理对共发酵产物抑菌活性的影响

表8可知,随着胃蛋白酶浓度的升高,共发酵产物对E. coliS. porcinus的抑菌活性均出现显著下降(P<0.05);对S. aureus的抑菌活性也同样受到抑制,在200 U/mL浓度时出现显著下降(P<0.05)。以上结果表明,高浓度胃蛋白酶会导致共发酵产物抑菌活性的下降,由此说明共发酵产物中发挥抑菌作用的活性成分中可能含有蛋白质成分。
表8 不同胃蛋白酶浓度下S.L. plantarum与ELP共发酵产物的抑菌效果

Table 8 Antibacterial effects of co-fermentation products of S.L. plantarum and ELP under different pepsin concentrations mm

胃蛋白酶浓度
Pepsin concentration/(U/mL)
平均抑菌圈直径Mean inhibition zone diameter
大肠埃希氏菌E. coli 金黄色葡萄球菌S. aureus 豕链球菌S. porcinus
0 18.00±0.14a 16.80±0.57a 20.80±0.42a
100 15.10±0.14b 15.05±0.21ab 15.65±0.64b
200 12.30±0.57c 12.90±0.71b 13.30±0.28c

2.5 共发酵液对人工胃肠液的耐受性

使用细菌浓度为1.5×10⁹ CFU/mL的S.L. plantarum菌液和S.L. plantarum与ELP共发酵液进行人工胃肠液的耐受性试验。由表9可知,纯培养的S.L. plantarum在经过人工胃液处理1 h后即全部失活,相比之下S.L. plantarum与ELP共发酵尽管出现了活菌数的下降,但仍保留一定的数量级至3 h,且在各时间点活菌数均显著高于纯培养(P<0.05)。人工小肠液对S.L. plantarum菌株的影响不如人工胃液明显,经肠液处理后,纯培养的S.L. plantarum活菌数随时间呈不断下降趋势,而S.L. plantarum与ELP共发酵的活菌数量随时间变化不明显,且在各时间点活菌数均显著高于纯培养(P<0.05)。结果表明,S.L. plantarum与ELP共发酵可显著提升S.L. plantarum菌株在人工胃肠液中的耐受性。
表9 S.L. plantarum与ELP共发酵对人工胃肠液的耐受性

Table 9 Tolerance to artificial gastrointestinal fluid of S.L. plantarum and ELP co-fermentation ×108 CFU/mL

时间
Time/h
活菌数Number of viable bacteria
人工胃液Artificial gastric fluid 人工小肠液Artificial intestinal fluid
猪源植物乳植杆菌+
杜仲叶多糖
S.L. plantarum+ELP
猪源植物乳植杆菌
S.L. plantarum
猪源植物乳植杆菌+
杜仲叶多糖
S.L. plantarum+ELP
猪源植物乳植杆菌
S.L. plantarum
1 0.86±0.01a 0.00±0.00b 17.50±2.05a 14.00±1.66b
2 0.43±0.05a 0.00±0.00b 16.40±1.89a 12.00±1.02b
3 0.10±0.05a 0.00±0.00b 16.10±1.56a 10.00±0.66b

人工胃液数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05);人工小肠液与之相同。

In the artificial gastric fluid, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05); the same as the artificial intestinal fluid.

2.6 急性经口毒性试验

在急性经口毒性试验中,所有小鼠在14 d内体况良好,均未出现中毒症状,小鼠无死亡,无大体病变。结果表明,共发酵产物半数致死剂量(LD50)≥10 g/kg BW,依照急性毒性剂量分级标准,属于实际无毒。

3 讨论

目前常见的饲用益生菌包括乳酸菌类、芽孢杆菌类和真菌类等。大量研究表明,益生菌在生猪养殖中功效显著,可为不同生长发育阶段的猪提供诸多积极影响,常用的有地衣芽孢杆菌、乳酸肠球菌和酵母菌等[22]。乳杆菌在体内外具有良好的抗菌活性,邱宇等[23]从15株益生菌中筛选对鸡沙门氏菌抗菌作用强的益生菌,经过体外抑菌试验发现唾液乳杆菌的抗菌活性最强;田丰松等[24]研究罗伊乳杆菌、格氏乳杆菌、约氏乳杆菌和唾液乳杆菌对S. aureus和沙门氏菌的抗菌活性,发现4株乳杆菌对S. aureus具有较强的抗菌活性。然而,这其中多数益生菌属于外源菌,在猪胃肠道的定植可能会受多种体内因素的影响,进入肠道后生长速度缓慢,与自然肠道菌群呈拮抗作用且竞争不占优势[25],最终导致定植菌数量不足,一定程度上限制了它们的应用。因此,本研究从同源菌入手,对健康猪群的粪便菌群进行分离、筛选,以获得动物源乳杆菌,最终筛选出了S.L. plantarum、S.L. fermentum和S.L. rhamnosus这3种乳杆菌。
在动物的各种腹泻病中,由E. coli引起的细菌性腹泻占比最高,导致畜禽生产性能下降,严重制约现代畜禽养殖发展[26]S. aureus的耐药性问题引起全球学者的担忧,Van Belkum等[27]调查发现39%的屠宰猪中含有耐甲氧西林的S. aureusS. porcinus可引起猪的脑膜炎、败血症和关节炎,不仅给生猪养殖业造成重大的经济损失,同时也是一种重要的人畜共患病。同时,E. coliS. aureusS. porcinus还是我国奶牛三大疾病之一——乳房炎的主要病原菌[28]。鉴于E. coliS. aureusS. porcinus对畜禽养殖业的危害严重,耐药问题突出,本研究将这三者作为指示菌株,用于比较所分离得到的3株益生菌发酵产物的抗菌作用。结果显示,S.L. plantarum发酵产物对上述3株细菌均能产生较好的抗菌作用,抑菌圈直径分别为(14.40±0.14) mm、(12.75±0.90) mm和(13.50±1.22) mm,其抗菌活性优于S.L. fermentum和S.L. rhamnosus。因此,本试验确定S.L. plantarum为最佳益生菌。
中药具有抗炎、促生长以及预防腹泻等功效,然而单独使用时,多数中药的抑菌能力微乎其微[29]。本次研究同样印证了这一观点,ELP体外对E. coliS. aureusS. porcinus均无直接的抑菌作用。尽管如此,大量研究发现将中药作为复合型微生态制剂的一员与益生菌共同使用,其效果显著。将中草药微生态制剂添加在南美对虾的饲料中进行饲喂,南美对虾的生长性能和免疫指标均出现提升,且未见毒性损伤[30];使用蒲公英和黄芪提取物与益生菌联合用药,提升了肉鸡的生长性能并降低了死亡率和腹泻率,同时改善了肠道和肝脏的病理变化[31];板蓝根、杜仲和金银花等中草药可提升家畜机体免疫指标水平,同时促进体内益生菌生长[32]。将S.L. plantarum与ELP共发酵后,共发酵液上清的抑菌活性均显著大于S.L. plantarum对照,说明两者发生了显著的协同抑菌作用。推测其原因可能与ELP能促进S.L. plantarum增殖及其代谢产物的释放有关,多糖类物质作为碳源的一种可以被细菌利用,利于细菌的生长;并且与多数中药多糖相似,ELP中含有的糖醛类物质对菌体具有逆境下胁迫伤害的保护作用[33]
越来越多的研究表明,益生菌产生的各种次级代谢物是其发挥作用功效的物质基础[34]。次生代谢物种类丰富,可大体分为多糖、细菌素、维生素、多肽、脂肪酸及有机酸等。尽管本试验未使用定性的方法进行次级代谢物的判断,但研究了共发酵产物在不同温度、pH和胃蛋白酶浓度作用之下对3种指示菌的抑菌性能变化。结果证明共发酵产物具有耐高温、耐酸和易被蛋白酶分解的特性。S.L. plantarum目前已广泛应用于畜牧养殖业,研究显示其次生代谢物包括有机酸类与小分子多肽,这些物质是其发挥效用的重要物质基础[35-36],因此推测共发酵产物中具有在碱性环境下易失活的酸性物质,并含有一定量的小分子多肽,但不含热敏感大分子蛋白质。
益生菌可通过产生酸性物质来发挥其抗菌活性,因此多数产酸益生菌在低pH环境中生长良好,本研究结果也表明较低的pH有利于共发酵产物发挥更好的抑菌活性。然而,胃液pH可降至2以下,对多数微生物具有抑制和杀灭作用,本试验结果也表明S.L. plantarum在强酸环境中无法存活。此时,ELP则展现出良好的保护性,使得相当一部分S.L. plantarum保持活性,猜测是由于ELP中的多糖类物质对S.L. plantarum起到了保护作用。丁宇威等[37]研究了黑果腺肋花楸多糖对益生菌生长的影响,发现加入多糖可以极大提高细菌对胃酸环境的耐受性;使用枸杞多糖处理乳酸杆菌,乳酸杆菌对细胞的黏附能力增强,抗逆性增加[38];冻干胞外多糖具有双歧杆菌生长刺激剂与抗生物被膜的作用,可作为一种高效的药剂[39]。有观点认为多糖的保护效果是由于多糖同细胞壁成分相近,因而可以减少菌体与不良环境的接触,从而起到类似“隔离”的作用,同时细菌的谷氨酸脱氢酶在这时被激活,细菌的耐酸性因此有所提升[33]。这种解释同样适用于肠液耐受性试验的结果,尽管相比于人工胃液环境,人工小肠液的抑菌能力要小很多。
现有研究认为,微生物可以通过发酵的形式转化中药底物,生成新物质或增加活性物质,而中药中的小分子化合物也可作为激发因子去诱导细菌合成某些次生代谢物。根霉菌可高效的将虎杖苷转化为白藜芦醇,具备优越的抗氧化作用[40];使用益生菌固态发酵法,三七渣的灵芝三萜含量显著提高[41]。ELP中的某些小分子化合物同S.L. plantarum相互作用,这一过程中的产物有可能同样具备抑菌能力,后续将进一步采用非靶向和靶向代谢组学探究共发酵产物的物质基础。

4 结论

S.L. plantarum与ELP共发酵可显著提高S.L. plantarumE. coliS. aureusS. porcinus的抑菌性能,增强其胃肠耐受性,无急性毒性。推断其抗菌活性的物质基础为有机酸类和小分子多肽。
[1]
CORPET D E. Mechanism of antimicrobial growth promoters used in animal feed[J]. Revue Médecine Vétérinaire, 2000, 151(2):99-104.

[2]
ZHANG E B, ZONG S Z, ZHOU W, et al. Characterization and comparative genomics analysis of RepA_N multi-resistance plasmids carrying optrA from Enterococcus faecalis[J]. Frontiers in Microbiology, 2022,13:991352.

[3]
SONG H S, CHOI T R, BHATIA S K, et al. Combination therapy using low-concentration oxacillin with palmitic acid and Span85 to control clinical methicillin-resistant Staphylococcus aureus[J]. Antibiotics, 2020, 9(10):682.

[4]
于洋, 方亮星, 周宇峰, 等. 畜牧业发展中抗菌药应用的“利”与“刃”[J]. 中国科学院院刊, 2019, 34(2):152-162.

YU Y, FANG L X, ZHOU Y F, et al. Benefit and risk of utilizing antimicrobials in animal husbandry development[J]. Bulletin of the Chinese Academy of Sciences, 2019, 34(2):152-162. (in Chinese)

[5]
MOGHTADERI M, MIRZAIE A, ZABET N, et al. Enhanced antibacterial activity of echinacea angustifolia extract against multidrug-resistant Klebsiella pneumoniae through niosome encapsulation[J]. Nanomaterials (Basel,Switzerland), 2021, 11(6):1573.

[6]
DE GIANI A, BOVIO F, FORCELLA M, et al. Identification of a bacteriocin-like compound from Lactobacillus plantarum with antimicrobial activity and effects on normal and cancerogenic human intestinal cells[J]. AMB Express, 2019, 9(1):88.

[7]
LIU X, ZHAO W, YU D, et al. Effects of compound probiotics on the weight,immunity performance and fecal microbiota of forest musk deer[J]. Scientific Reports, 2019, 9(1):19146.

[8]
RUNGSIRIVANICH P, SUPANDEE W, FUTUI W, et al. Culturable bacterial community on leaves of Assam tea (Camellia sinensis var. assamica) in Thailand and human probiotic potential of isolated bacillus spp[J]. Microorganisms, 2020, 8(10):1585.

[9]
LONG S F, HE T F, WU D, et al. Forsythia suspensa extract enhances performance via the improvement of nutrient digestibility,antioxidant status,anti-inflammatory function,and gut morphology in broilers[J]. Poultry Science, 2020, 99(9):4217-4226.

[10]
GUAN M Q, PAN D A, ZHANG M, et al. The aqueous extract of eucommia leaves promotes proliferation,differentiation,and mineralization of osteoblast-like MC3T3-E1 cells[J]. Evidence-Based Complementary and Alternative Medicine:eCAM, 2021,2021:3641317.

[11]
周莉, 平洋, 谭静, 等. 益生菌微胶囊技术及其应用[J]. 食品工业, 2024, 45(5):239-242.

ZHOU L, PING Y, TAN J, et al. Probiotics and application of microcapsule technology[J]. The Food Industry, 2024, 45(5):239-242. (in Chinese)

[12]
王凤玲, 杨扬, 韩方琴, 等. 中药提取物在临床抑菌中的研究进展[J]. 工业微生物, 2024, 54(1):67-70.

WANG F L, YANG Y, HAN F Q, et al. Research progress of traditional Chinese medicine extracts in clinical antibacterial activity[J]. Industrial Microbiology, 2024, 54(1):67-70. (in Chinese)

[13]
薛鹤鸣, 曹宽, 杨莹, 等. 论中药提取物属传统中医研究范畴[J]. 中华中医药杂志, 2024, 39(2):1029-1031.

XUE H M, CAO K, YANG Y, et al. Discussion on traditional Chinese medicine extract belongs to the research category of traditional Chinese medicine[J]. China Journal of Traditional Chinese Medicine and Pharmacy, 2024, 39(2):1029-1031. (in Chinese)

[14]
CUI Z J, TAN B, LIAO S M, et al. Dietary addition of antioxidant complex packs and functional amino acids can improve the digestion,absorption,and immunity of Huanjiang minipigs[J]. BioMed Research International, 2020,2020:1475831.

[15]
XING Y Y, WANG J Y, WANG K, et al. Inhibition of rheumatoid arthritis using bark,leaf,and male flower extracts of Eucommia ulmoides[J]. Evidence-Based Complementary and Alternative Medicine:eCAM, 2020,2020:3260278.

[16]
王诚, 范秋苹, 董桂红, 等. 中药微生态制剂在TMR保鲜及预防奶牛乳房炎中的应用[J]. 中国动物保健, 2023, 25(1):56-57,75.

WANG C, FAN Q P, DONG G H, et al. Application of traditional Chinese medicine microecological preparation in TMR preservation and prevention of bovine mastitis[J]. Chinese Animal Health, 2023, 25(1):56-57,75. (in Chinese)

[17]
CHEN X L, JIN J J, HAO F X, et al. Paulownia tomentosa flower polysaccharide as an effective immunopotentiator to enhance immune responses for Newcastle disease vaccine in mice[J]. Italian Journal of Food Science, 2021, 33(4):11-20.

[18]
陈晓兰, 圣志存, 陈海峰, 等. 泡桐花多糖的体内外抗氧化活性[J]. 食品工业科技, 2021, 42(7):349-353.

CHEN X L, SHENG Z C, CHEN H F, et al. Antioxidant activity in vitro and vivo of polysaccharide from Paulownia fortunei flower[J]. Science and Technology of Food Industry, 2021, 42(7):349-353. (in Chinese)

[19]
陈帅, 胡建宏, 李侃, 等. 杜仲叶药理作用及在鸡饲料添加剂中的应用研究[J]. 家畜生态学报, 2017, 38(6):68-71.

CHEN S, HU J H, LI K, et al. The pharmacological function of Eucommia ulmoides leaf and its application in chicken feed additive[J]. Acta Ecologae Animalis Domastici, 2017, 38(6):68-71. (in Chinese)

[20]
陈玉敏. 杜仲叶提取物对AA肉鸡的生长性能、抗氧化功能及肉品质的影响[D]. 硕士学位论文. 南昌: 江西农业大学, 2015.

CHEN Y M. Effect of Eucommia leaves extract as additive on growth performance and antioxidant functions and meat quality in AA broiler[D]. Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2015. (in Chinese)

[21]
任爱军. 杜仲叶与益生素对蛋鸡免疫功能影响的比较研究[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2015.

REN A J. Comparative study of the effect of Eucommia leaves and probiotic on immune function of laying hens[D]. Master’s Thesis. Yangling: Northwest A&F University, 2015. (in Chinese)

[22]
叶颖霞, 林岚, 赵菊香, 等. 杜仲叶多糖对免疫抑制小鼠免疫功能的影响[J]. 中药材, 2015, 38(7):1496-1498.

YE Y X, LIN L, ZHAO J X, et al. Effects of polysaccharide from Eucommia ulmoides leaves on immune function of immunosuppressive mice[J]. Journal of Chinese Medicinal Materials, 2015, 38(7):1496-1498. (in Chinese)

[23]
邱宇, 刘增琪, 吴晓婵, 等. 替代抗生素益生菌的筛选及其抗鸡沙门氏菌感染的研究[J]. 中国预防兽医学报, 2022, 44(11):1162-1168.

QIU Y, LIU Z Q, WU X C, et al. Screening of probiotics as substitute antibiotics and their anti-Salmonella infection in chickens[J]. Chinese Journal of Preventive Veterinary Medicine, 2022, 44(11):1162-1168. (in Chinese)

[24]
田丰松, 丁赫, 王军, 等. 奶牛阴道乳杆菌抗菌物质的体外特性[J]. 中国兽医学报, 2018, 38(5):1035-1038.

TIAN F S, DING H, WANG J, et al. Anti-bacteria substance of Lactobacilli from vaginas of dairy cows in vitro[J]. Chinese Journal of Veterinary Science, 2018, 38(5):1035-1038. (in Chinese)

[25]
CHEN X L, CAI B Y, WANG J, et al. Mulberry leaf-derived polysaccharide modulates the immune response and gut microbiota composition in immunosuppressed mice[J]. Journal of Functional Foods, 2021,83:104545.

[26]
王巍, 李春洙, 王沙沙, 等. 中药联合益生菌对大肠杆菌致小鼠腹泻保护机制研究[J]. 中国畜牧兽医, 2023, 50(2):779-788.

DOI

WANG W, LI C Z, WANG S S, et al. Study on the protective mechanism of traditional Chinese medicine combined with probiotics on diarrhea caused by E. coli in mice[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(2):779-788. (in Chinese)

[27]
VAN BELKUM A, MELLES D C, PEETERS J K, et al. Methicillin-resistant and -susceptible Staphylococcus aureus sequence type 398 in pigs and humans[J]. Emerging Infectious Diseases, 2008, 14(3):479-483.

[28]
毛永江, 张美荣, 刘姗, 等. 某新建大型奶牛场临床乳房炎病原菌分离及发病规律[J]. 中国兽医学报, 2013, 33(11):1773-1777.

MAO Y J, ZHANG M R, LIU S, et al. The incidence bovine of clinical mastitis and isolation of its pathogenic bacteria in a new large dairy farm[J]. Chinese Journal of Veterinary Science, 2013, 33(11):1773-1777. (in Chinese)

[29]
PARHAM S, KHARAZI A Z, BAKHSHESHI-RAD H R, et al. Antioxidant,antimicrobial and antiviral properties of herbal materials[J]. Antioxidants, 2020, 9(12):1309.

[30]
谢映红, 肖琦, 周琳玉, 等. 中草药微生态复方制剂提高南美白对虾生长性能和免疫功能的应用效果[J]. 广西畜牧兽医, 2022, 38(4):182-185.

XIE Y H, XIAO Q, ZHOU L Y, et al. The application effect of Chinese herbal microecological compound preparation on improving the growth performance and immune function of Penaeus vannamei[J]. Guangxi Journal of Animal Husbandry & Veterinary Medicine, 2022, 38(4):182-185. (in Chinese)

[31]
LIANG W F, LI H T, ZHOU H Y, et al. Effects of Taraxacum and Astragalus extracts combined with probiotic Bacillus subtilis and Lactobacillus on Escherichia coli-infected broiler chickens[J]. Poultry Science, 2021, 100(4):101007.

[32]
聂智英. 中药水提物对链霉菌次生代谢物生物合成的调控研究[D]. 硕士学位论文. 天津: 天津中医药大学, 2022.

NIE Z Y. Research on the regulation of Streptomyces secondary metabolites biosynthesis by the aqueous extracts of traditional Chinese medicine[D]. Master’s Thesis. Tianjin: Tianjin University of Traditional Chinese Medicine, 2022. (in Chinese)

[33]
赵建英, 李祥, 薛博文, 等. 红枣多糖对益生菌生长代谢的研究[J]. 饲料研究, 2022, 45(23):73-77.

ZHAO J Y, LI X, XUE B W, et al. Effect of jujube polysaccharide on growth and metabolism of probiotics[J]. Feed Research, 2022, 45(23):73-77. (in Chinese)

[34]
兰冬雪, 瞿茜楠, 黄天, 等. 益生菌活性代谢产物的研究及应用进展[J]. 食品工业科技, 2022, 43(24):11-20.

LAN D X, QU Q N, HUANG T, et al. Research and application progress of the active metabolites of probiotics[J]. Science and Technology of Food Industry, 2022, 43(24):11-20. (in Chinese)

[35]
孙丙勇, 何金祚, 刘晶晶, 等. 植物乳杆菌代谢产物对黄羽肉鸡生长性能和肠道健康的影响[J]. 饲料研究, 2024, 47(9):77-83.

SUN B Y, HE J Z, LIU J J, et al. Effect of metabolites of Lactobacillus plantarum on growth performance and intestinal health of yellow-feathered broilers[J]. Feed Research, 2024, 47(9):77-83. (in Chinese)

[36]
杨奕凡, 高雁, 刘亚男, 等. 单一菌与复合菌发酵甘草渣产有机酸能力比较[J]. 中国饲料, 2024(11):167-172.

YANG Y F, GAO Y, LIU Y N, et al. Comparison of organic acid production capacity of licorice residues fermented by single and complex bacteria[J]. China Feed, 2024(11):167-172. (in Chinese)

[37]
丁宇威, 郑加栋, 赵春然, 等. 黑果腺肋花楸多糖对3种益生菌生长的影响[J]. 食品研究与开发, 2023, 44(6):30-36.

DING Y W, ZHENG J D, ZHAO C R, et al. Effects of polysaccharides from aronia melanocarpa on the growth of three probiotic bacteria[J]. Food Research and Development, 2023, 44(6):30-36. (in Chinese)

[38]
LIU M M, SUN Z H, SHI C S, et al. How do Lycium barbarum polysaccharides promote the adhesion of Lactobacillus to Caco-2 cells?[J]. Journal of Functional Foods, 2022,89:104929.

[39]
SARIKAYA H, ASLIM B, YUKSEKDAG Z. Assessment of anti-biofilm activity and bifidogenic growth stimulator (BGS) effect of lyophilized exopolysaccharides (L-EPSs) from Lactobacilli strains[J]. International Journal of Food Properties, 2017, 20(2):362-371.

[40]
田天丽, 沈竞, 徐萌萌, 等. 虎杖中虎杖苷的微生物发酵转化研究[J]. 四川大学学报(自然科学版), 2008, 45(2):437-440.

TIAN T L, SHEN J, XU M M, et al. Biotransformation of polydatin from Polygonum cuspidatum by Rhizopus sp. T-34[J]. Journal of Sichuan University (Natural Science Edition), 2008, 45(2):437-440. (in Chinese)

[41]
谭显东, 陈楠, 王浪, 等. 响应面法优化灵芝发酵三七渣产灵芝三萜工艺[J]. 中国酿造, 2021, 40(6):147-151.

DOI

TAN X D, CHEN N, WANG L, et al. Optimization of fermentation conditions for Ganoderma lucidum triterpenoids production with notoginseng residues by Ganoderma lucidum using response surface methodology[J]. China Brewing, 2021, 40(6):147-151. (in Chinese)

Outlines

/