RESEARCH PAPER

Effects of Single or Combined Addition of Bacillus subtilis, Lactobacillus plantarum and Cellulase on Quality and Microbial Diversity of Sweet Sorghum Silage

  • WANG Ziyuan ,
  • WANG Qian ,
  • JI Yuyu ,
  • SHU Jianhong ,
  • CHEN Ying ,
  • CHEN Caijun ,
  • WANG Xiaoli , *
Expand
  • Guizhou Institute of Prataculture, Guiyang 550006, China
*professor, E-mail:

Received date: 2025-03-06

  Online published: 2025-10-15

Abstract

This study aimed to investigate the effects of single or combined supplementation of Bacillus subtilis, Lactobacillus plantarum, and cellulase on the quality and microbial diversity of sweet sorghum silage, and screen out the appropriate combination of additives. A single-factor experimental design was employed, with seven groups: sweet sorghum alone group (S group), Bacillus subtilis (SB group), Lactobacillus plantarum group (SM group), cellulase group (SC group), Bacillus subtilis+Lactobacillus plantarum group (SBM group), Lactobacillus plantarum+cellulase group (SCM group), and Bacillus subtilis+Lactobacillus plantarum+cellulase group (SBMC group). Each group contained three replicates. The addition was based on fresh raw material samples at 2.75×10⁷ CFU/g for Bacillus subtilis, 7×10⁸ CFU/g for Lactobacillus plantarum, and 0.05% for cellulase. The activated bacterial suspension and enzyme solution were evenly sprayed over 600 g of sweet sorghum raw material (S group received an equivalent volume of distilled water), and then put the mixture in a polyethylene bag and vacuum seal for ensiling. After 60 days of ensiling, the bags were opened to determine the sensory quality, nutritional composition, fermentation quality, and microbial community structure of the samples. A comprehensive evaluation of sweet sorghum silage quality was conducted using the membership function method to identify the suitable additive combination. The results showed that the total score of sensory evaluation of the SM and SBMC groups was significantly higher than of the S, SB, and SBM groups (P<0.05). Compared with the S group, the crude protein content of the SB, SBM, SCM and SBMC groups was significantly increased (P<0.05), while the neutral detergent fiber content of the SB, SBM and SBMC groups was significantly lower than that of the other groups (P<0.05). The water-soluble carbohydrate content of the SCM group was significantly higher than of the S, SM, SC and SBM groups (P<0.05). The SM group exhibited significantly reduced pH and significantly elevated lactic acid and acetic acid contents compared with the S group (P<0.05). In contrast to other additive-treated groups, single addition of Lactobacillus plantarum reduced microbial diversity in sweet sorghum silage, increased the relative abundances of Lactobacillus and Weissella, and decreased the relative abundances of Enterobacteriaceae, Bacillus, and Escherichia-Shigella. Based on the comprehensive evaluation of membership function method, the comprehensive value ranked as follows: SBMC group>SM group>SCM group>S group>SBM group>SB group>SC group. In conclusion, combined addition of Bacillus subtilis, Lactobacillus plantarum and cellulase can significantly improve the nutritional value and fermentation quality of sweet sorghum silage.

Cite this article

WANG Ziyuan , WANG Qian , JI Yuyu , SHU Jianhong , CHEN Ying , CHEN Caijun , WANG Xiaoli . Effects of Single or Combined Addition of Bacillus subtilis, Lactobacillus plantarum and Cellulase on Quality and Microbial Diversity of Sweet Sorghum Silage[J]. Chinese Journal of Animal Nutrition, 2025 , 37(10) : 7143 -7156 . DOI: 10.12418/CJAN2025.582

近年来,随着健康意识的增强以及对绿色有机食品的追求,消费者对低脂肪、高蛋白质的草食畜产品(如牛肉、羊肉和奶制品)的兴趣日益增加。这种饮食偏好的转变推动了畜牧业的快速发展,同时也提高了对优质饲草料的需求。然而,饲草料的供应未能跟上需求的增长,导致供需之间出现较大缺口。这一问题在中国南方地区尤为突出,频繁的降雨和高湿度加剧了饲草料储存和保存的挑战。因此,提高饲草料的营养价值和利用效率已成为畜牧业可持续发展的关键。
甜高粱(Sorghum bicolor)是一年生碳四(C4)植物,具有光合效率高、抗逆性强和生物产量高等特点,其叶片鲜嫩、柔软,茎秆含有丰富的可溶性碳水化合物(WSC)[1],使其成为牛、羊等反刍动物优质粗饲料的潜在候选者。与青贮玉米相比,甜高粱展现出显著的再生优势,一年可实现2~3次刈割,单位面积产量更高[2],且含糖量是玉米的2倍[3],这些特性使甜高粱成为一种极具潜力的优质饲草资源。然而,较高的水分和糖分含量给甜高粱的保存和利用带来了挑战,尤其是在中国南方潮湿的气候条件下,若未能及时储存极易引发腐败变质,导致资源浪费。此外,甜高粱茎秆的粗硬和高纤维特性限制了动物对营养物质的最大化吸收。因此,探索有效的加工和储存方法,以改善甜高粱的适口性和消化率,对于提高其作为饲料的营养价值至关重要。青贮作为一种保存青绿饲草的发酵技术,不仅能延长饲草的贮存时间,还能有效减少饲草在储存过程中的营养损失,通过微生物厌氧发酵还能在一定程度上改善饲草的适口性和消化率,提高饲草的整体品质和营养价值。
饲草中的不可消化纤维通常与植物细胞壁交联,难以降解。枯草芽孢杆菌(Bacillus subtilis)作为微生物饲料添加剂,在优化反刍动物胃肠道菌群、增加母羊产奶量以及提升日增重等方面具有积极作用[4]。同时,枯草芽孢杆菌能产生包括纤维素酶、葡聚糖酶、蛋白酶和几丁质酶等在内的细胞壁裂解酶[5-6],纤维素酶等酶类物质能有效水解植物的细胞壁,减少纤维含量并释放WSC,进而改善青贮发酵特性。有研究表明,在全株玉米青贮中接种枯草芽孢杆菌具有降解木质纤维素的作用[7]。朱佳文等[8]研究发现,桑叶在青贮时添加枯草芽孢杆菌,发酵12 d后可显著降低粗纤维含量及氨态氮/总氮比值,同时桑叶的发酵品质得到显著改善。纤维素酶作为一种常用于提高纤维消化率的添加剂,可通过降解细胞壁中的纤维素和半纤维素,释放WSC以加速青贮发酵进程。此外,在饲草青贮时添加乳酸菌能够迅速降低饲草中的pH,抑制有害微生物的生长,从而显著改善青贮饲料的发酵品质,有效延长饲草的保存期限。大量研究表明,将乳酸菌与纤维素酶联用,可以提高青贮饲料的发酵品质[9-11]。在添加淀粉酶的玉米青贮饲粮中添加乳酸菌和枯草芽孢杆菌,可显著提升玉米青贮饲粮中的粗蛋白质(CP)、中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量[12]。在含有黑麦草青贮和玉米青贮的全混合日粮中添加嗜酸乳杆菌(Lentilactobacillus buchneri)和枯草芽孢杆菌,能够改变全混合日粮的pH、乳酸(LA)和乙酸(AA)含量[13]。然而,少有研究关注枯草芽孢杆菌、乳酸菌和纤维素酶三者间的组合效应对甜高粱青贮饲料营养组分和发酵品质的影响。微生物发酵及其群落结构决定了青贮饲料的发酵品质,近年来16S rRNA测序技术的应用为青贮饲料微生物群落研究提供了强有力的工具,通过研究青贮饲料中的微生物群落结构,可以为调控青贮饲料的发酵提供理论依据。因此,本试验将枯草芽孢杆菌、植物乳杆菌(Lactobacillus plantarum)和纤维素酶组合应用于甜高粱青贮发酵,旨在探究其对甜高粱青贮感官质量、营养成分、发酵特性及微生物群落多样性的影响,筛选出最优组合,以期为甜高粱青贮饲料的调制和青贮添加剂的开发提供技术支撑。

1 材料与方法

1.1 试验材料

试验所用甜高粱种植于贵州省草业研究所独山基地,其营养成分如表1所示。枯草芽孢杆菌购自上海鲁微科技有限公司;植物乳杆菌为课题组前期从皇竹草青贮中分离获得,该菌株具有产阿魏酸酯酶的能力;纤维素酶购自北京索莱宝科技有限公司,酶活力为3 000 U/g。
表1 青贮前甜高粱的营养成分

Table 1 Nutrient components of sweet sorghum before ensiling

项目
Item
干物质
DM/% FW
粗蛋白质
CP/% DM
中性洗涤纤维
NDF/% DM
酸性洗涤纤维
ADF/% DM
可溶性碳水化合物
WSC/% DM
甜高粱Sweet sorghum 44.39 8.84 66.67 38.63 15.30

FW:鲜重 fresh weight;DM:干物质 dry matter。

1.2 试验设计

试验采用单因素随机设计,设置7个组,分别是甜高粱单贮组(S组)、枯草芽孢杆菌组(SB组)、植物乳杆菌组(SM组)、纤维素酶组(SC组)、枯草芽孢杆菌+植物乳杆菌组(SBM组)、植物乳杆菌+纤维素酶组(SCM组)、枯草芽孢杆菌+植物乳杆菌+纤维素酶组(SBMC组)。通过查阅与枯草芽孢杆菌、植物乳杆菌和纤维素酶青贮发酵相关的文献[14-16]后,确定枯草芽孢杆菌添加量为2.75×10⁷ CFU/g,植物乳杆菌添加量为7×108 CFU/g,纤维素酶添加量为0.05%。具体的试验设计见表2。3种添加剂均以原料鲜重为基础添加,每个组设3个重复,青贮60 d后开袋测定样品的营养成分、发酵品质、微生物数量以及微生物群落组成。
表2 试验设计

Table 2 Experimental design

组别
Groups
枯草芽孢杆菌添加量
Bacillus subtilis addition/(CFU/g)
植物乳杆菌添加量
Lactobacillus plantarum addition/(CFU/g)
纤维素酶添加量
Cellulase addition/%
S
SB 2.75×10⁷
SM 7×10⁸
SC 0.05
SBM 2.75×10⁷ 7×10⁸
SCM 7×10⁸ 0.05
SBMC 2.75×10⁷ 7×10⁸ 0.05

1.3 甜高粱青贮饲料的制备

将枯草芽孢杆菌和植物乳杆菌分别在LB液体培养基(30 ℃)和MRS液体培养基(37 ℃)中培养48 h,经稀释涂布于平板后计算原菌液中的菌落数,保存备用。新鲜刈割的甜高粱切短至2~3 cm,根据试验设计将活化后的菌液和酶液均匀喷洒于原料上,其中S组喷洒等量蒸馏水,混合均匀后称取600 g,装入聚乙烯袋并抽真空密封,置于实验室干燥处保存。

1.4 测定指标及方法

1.4.1 感官评定和营养成分

青贮60 d后根据德国农业学会(DLG)评分标准[17]对青贮饲料样品进行感官评定。甜高粱原料和青贮饲料样品的干物质(DM)含量采用烘箱干燥法(GB/T 6435—2014)测定,CP含量采用凯氏定氮法(GB/T 6432—2018)测定,NDF和ADF含量参照Van Soest等[18]的方法进行测定,WSC含量采用蒽酮-硫酸比色法[19]测定。

1.4.2 发酵品质

青贮饲料样品的pH采用德图Testo 206-pH1型测量仪测定,氨态氮(NH3-N)含量采用苯酚-次氯酸钠法[20]测定,LA、AA和丙酸(PA)含量采用岛津高效液相色谱仪检测,配置InertSustain C18 (5 μm×4.6 mm×250 mm)分析柱,流动相为pH 2.8的0.05 mol/L H3PO4-KH2PO4溶液与乙腈以95∶5体积比组成,流速0.5 mL/min,进样量10 μL,检测波长210 nm,柱温16 ℃。

1.4.3 微生物数量

称取25 g青贮饲料样品,加入225 mL蒸馏水,充分振摇30 min后将萃取液梯度稀释至10-1~10-8 CFU/mL。采用平板计数法测定微生物数量:乳酸菌(LAB)在MRS琼脂培养基中36 ℃厌氧培养72 h计数;酵母菌和霉菌在PDA琼脂培养基中28 ℃培养72 h计数。微生物数量以每克鲜物质中菌落形成单位数的对数[lg(CFU/g FM)]表示。

1.4.4 青贮质量综合评价

计算各组与感官品质、营养成分、发酵品质和微生物数量等相关的14个指标的隶属函数值,之后对14个指标的隶属函数值求平均值得到综合价值,根据综合价值大小对青贮质量进行排序。隶属函数值计算公式[21]如下:
Ui=(Xi-Ximin)/(Ximax-Ximin);
Ui=1-Ui
式中:Ui为测定正向指标的隶属函数值;Ui为测定负向指标的隶属函数值;Xi为该指标的测定值;Ximin为该指标的最小值;Ximax为该指标的最大值。
14个指标中,DM、CP、WSC、LA、AA含量,乳酸菌数量和感官评定总分为正向指标,用公式(1)计算;pH,NDF、ADF、NH3-N、PA含量,酵母菌和霉菌数量为负向指标,用公式(2)计算。

1.4.5 微生物多样性

使用E.Z.N.A®试剂盒(Omega Bio-Tek公司,美国)的DNA提取试剂盒从青贮样品中提取微生物总DNA,每个样品3个重复。随后,使用引物341F(5'-CCTACGGGNGGCWGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')对16S rDNA的V3~V4区域进行PCR扩增。扩增产物通过2%琼脂糖凝胶电泳分离,并利用AxyPrep DNA凝胶提取试剂盒(Axygen Biosciences公司,美国)进行纯化。纯化后的DNA使用Qubit® 3.0荧光定量仪(Life Invitrogen,美国)进行定量分析。根据Illumina的基因组DNA文库制备流程,将纯化后的DNA片段构建Illumina对端文库。文库构建完成后,在Illumina NovaSeq 6000测序平台进行双端测序,测序及结果分析由南京集思慧远生物科技有限公司完成。

1.5 数据分析

所有数据经Excel 2007初步整理后,采用SPSS 27.0软件进行单因素方差分析,差异显著者采用Duncan氏法进行组间多重比较,结果以“平均值±标准差”表示。使用vsearch软件(V2.15.0)对相似性97%以上的序列进行操作分类单元(OTU)归类并划分,利用QIIME软件(V1.9.1)从各OTU中挑选代表序列,再使用uclust方法将代表序列比对至sliva rRNA数据库进行物种分类,并使用R软件(V3.6.2)进行alpha多样性分析和主成分分析(PCA)。

2 结果与分析

2.1 不同添加剂对甜高粱青贮感官品质的影响

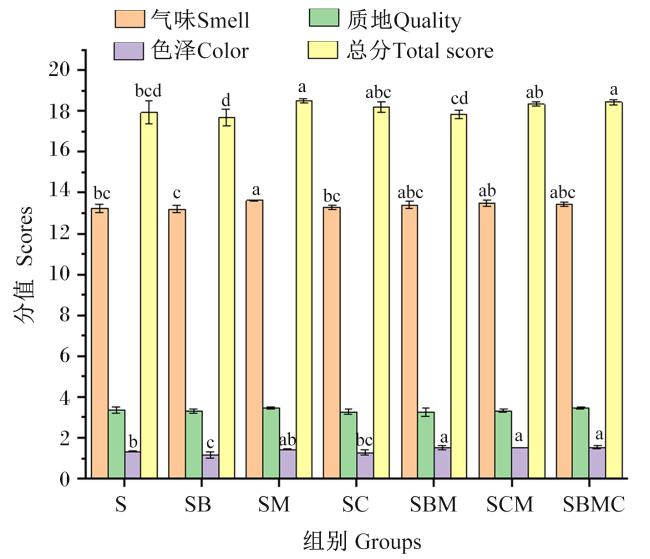
根据DLG评分标准,分别从气味、质地和色泽3个方面对青贮饲料进行评价,优质青贮饲料应具有明显的芳香果味或面包香味,茎叶结构完整无腐败,以及青贮后色泽与原料相似等特征,总分在16~20分评为Ⅰ级优良,10~15分评为Ⅱ级尚好,5~9分评为Ⅲ级中等,0~4分评为Ⅳ级腐败。如图1可知,各组感官评定总分均大于17分,其中SM组和SBMC组显著高于S组、SB组与SBM组(P<0.05),SM组和SBMC组与S组相比分别提高了3.18%、2.79%,说明植物乳杆菌单独添加或与枯草芽孢杆菌和纤维素酶组合添加有利于改善甜高粱青贮的感官品质。
图1 不同添加剂组甜高粱青贮的感官评定

相同颜色的数据柱标注不同小写字母表示组间存在差异显著(P<0.05)。下图同。

Fig.1 Sensory evaluation of sweet sorghum silage in different additive groups

Different lowercase letters within the same color data columns indicate significant difference among groups (P<0.05). The same as below.

2.2 不同添加剂对甜高粱青贮营养成分的影响

表3可知,除SM组和SC组以外,SB组、SBM组、SCM组和SBMC组的DM含量分别显著高于S组9.74%、10.49%、16.32%、9.68%(P<0.05);SB组的CP含量最高(6.97%),与S组相比显著提高了11.16%(P<0.05);SM组的CP含量最低(6.08%),较S组显著下降了3.03%(P<0.05);SB组、SBM组和SBMC组的NDF含量显著低于其他组(P<0.05),其中SBMC组的NDF含量最低(54.18%),与NDF含量最高的SC组(58.46%)相比降低了7.32%;SCM组的WSC含量显著高于S组、SM组、SC组、SBM组(P<0.05),与WSC含量最低的SBM组相比,SCM组的WSC含量升高了46.92%;此外,各组之间ADF含量差异不显著(P>0.05)。
表3 不同添加剂组甜高粱青贮的营养成分

Table 3 Nutritional components of sweet sorghum silage in different additive groups

组别
Groups
干物质
DM/% FM
粗蛋白质
CP/% DM
中性洗涤纤维
NDF/% DM
酸性洗涤纤维
ADF/% DM
可溶性碳水化合物
WSC/% DM
S 32.04±0.74c 6.27±0.03c 56.98±0.31c 34.46±0.89 13.87±1.57b
SB 35.16±0.33b 6.97±0.10a 54.95±0.19d 34.45±0.88 15.16±3.37ab
SM 30.14±1.10d 6.08±0.02c 57.12±0.08bc 33.83±0.66 13.09±1.11b
SC 33.33±0.31c 6.80±0.22ab 58.46±0.36a 34.22±0.75 14.61±0.03b
SBM 35.40±0.88b 6.25±0.11c 54.62±0.74d 33.69±1.69 12.81±0.61b
SCM 37.27±0.57a 6.65±0.08b 58.21±0.66ab 34.10±0.58 18.82±0.97a
SBMC 35.14±0.10b 6.68±0.09b 54.18±0.67d 32.95±0.40 16.35±0.29ab

同列数据肩标不同小写字母表示差异显著(P<0.05)。下表同。

In the same column, values with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.3 不同添加剂对甜高粱青贮发酵品质的影响

不同添加剂对甜高粱青贮发酵品质的影响见表4。各组的pH均低于4.2,其中SM组最低(3.90),其次是SC组和SCM组(3.94),最高的是SB组(4.05),与SB组相比,SM组的pH显著下降了3.70%(P<0.05)。有机酸含量方面,SM组的LA和AA含量显著高于其他组(P<0.05),与含量最低的SB组相比,SM组的LA和AA含量分别升高了71.55%、62.82%;SM组的PA含量显著低于其他组(P<0.05),与PA含量最高的SB组相比,SM组的PA含量降低了64.24%。NH3-N含量各组之间差异不显著(P>0.05),从数值上看SB组的NH3-N含量最低,SC组最高,与SC组相比,SB组的NH3-N含量降低了20.10%。
表4 不同添加剂组甜高粱青贮的发酵品质

Table 4 Fermentation quality of sweet sorghum silage in different additive groups

组别
Groups
pH 乳酸
LA/%
乙酸
AA/%
丙酸
PA/%
氨态氮
NH3-N/(mg/L)
S 3.97±0.01b 6.86±0.38bc 3.53±0.17b 0.88±0.06c 15.18±2.00
SB 4.05±0.07a 4.71±0.04f 2.34±0.08e 1.51±0.01a 14.91±1.74
SM 3.90±0.02c 8.08±0.37a 3.81±0.11a 0.54±0.01d 17.24±1.74
SC 3.94±0.02bc 7.26±0.03b 2.51±0.01de 1.02±0.01b 18.66±1.20
SBM 4.00±0.02ab 6.71±0.14cd 3.01±0.13c 0.91±0.01c 17.11±1.49
SCM 3.94±0.01bc 5.91±0.01e 3.08±0.01c 0.92±0.01c 18.09±1.49
SBMC 3.97±0.01b 6.27±0.06de 2.60±0.08d 0.93±0.03c 15.38±0.89

2.4 不同添加剂对甜高粱青贮微生物数量的影响

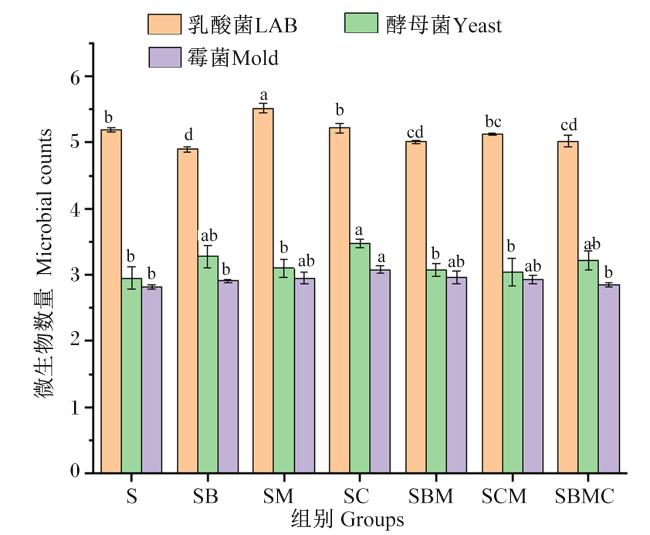
图2可知,SM组的乳酸菌数量显著高于其他组(P<0.05),SB组的乳酸菌数量最低,与SM组相比SB组的乳酸菌数量下降了11.23%;SC组的酵母菌和霉菌数量均最高,SC组的酵母菌数量显著高于SM组、SBM组、SCM组和S组(P<0.05),霉菌数量显著高于SB组、SBMC组和S组(P<0.05),与S组相比,SC组的酵母菌和霉菌数量分别升高了17.97%、9.22%。
图2 不同添加剂组甜高粱青贮的微生物数量

Fig.2 Microbial counts of sweet sorghum silage in different additive groups

2.5 隶属函数法分析甜高粱青贮的青贮质量

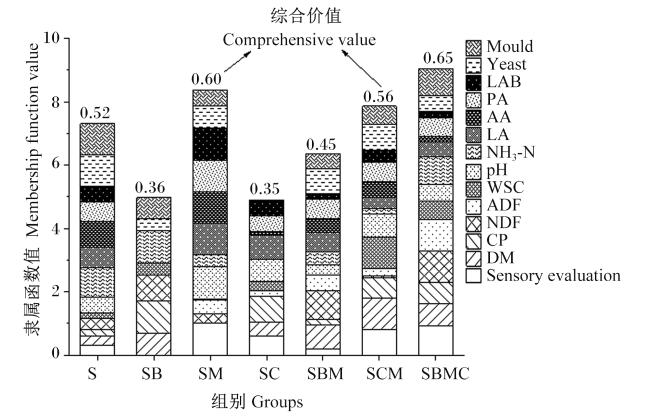
图3显示了8组甜高粱青贮14个指标的综合价值,对综合价值进行排序,综合价值越高,说明青贮质量越好,综合价值排序由高到低依次为:SBMC组(0.65)>SM组(0.60)>SCM组(0.56)>S组(0.52)>SBM组(0.45)>SB组(0.36)>SC组(0.35)。
图3 不同添加剂组甜高粱青贮的综合价值分析

Sensory evaluation:感官评定总分 total score of sensory evaluation;DM:干物质 dry matter;CP:粗蛋白质 crude protein;NDF:中性洗涤纤维 neutral detergent fiber;ADF:酸性洗涤纤维 acid detergent fiber;WSC:可溶性碳水化合物 water-soluble carbohydrates;NH3-N:氨态氮 ammonia nitrogen;LA:乳酸 lactic acid;AA:乙酸 acetic acid;PA:丙酸 propionic acid;LAB:乳酸菌 lactic acid bacteria;Yeast:酵母菌;Mould:霉菌。

Fig.3 Comprehensive value analysis of sweet sorghum silage in different additive groups

2.6 不同添加剂对甜高粱青贮微生物多样性的影响

2.6.1 alpha多样性指数

不同添加剂组甜高粱青贮的微生物alpha多样性指数见表5。各组的覆盖度均在0.99以上,说明测序深度已基本覆盖到青贮料中所有的物种。SC组的ACE指数和Chao1指数显著高于SBM组、SCM组、SBMC组、S组和SM组(P<0.05),与S组相比,SC组的ACE指数和Chao1指数分别升高了39.66%、39.31%。SC组的Shannon指数和Simpson指数最高,显著高于S组和SM组(P<0.05),说明SC组的微生物群落多样性最高。
表5 不同添加剂组甜高粱青贮中微生物的alpha多样性指数

Table 5 Microbial alpha diversity indexes of sweet sorghum silage in different additive groups

组别
Groups
覆盖度
Coverage
ACE指数
ACE index
Chao1指数
Chao1 index
Shannon指数
Shannon index
Simpson指数
Simpson index
S 0.99±0.00 612.84±54.58c 610.66±52.98c 6.31±0.18b 0.95±0.01b
SB 0.99±0.00 752.65±52.64ab 749.30±51.60ab 6.93±0.11a 0.98±0.00a
SM 0.99±0.00 609.00±29.98c 607.48±30.12c 6.27±0.16b 0.95±0.01b
SC 0.99±0.00 855.88±22.63a 850.68±12.42a 7.05±0.03a 0.98±0.01a
SBM 0.99±0.00 739.96±26.39b 734.99±25.90b 6.72±0.01a 0.98±0.00a
SCM 0.99±0.00 735.99±85.24b 732.02±83.52b 6.85±0.18a 0.98±0.00a
SBMC 0.99±0.00 698.60±75.37bc 695.63±75.32bc 6.82±0.25a 0.98±0.00a

2.6.2 PCA

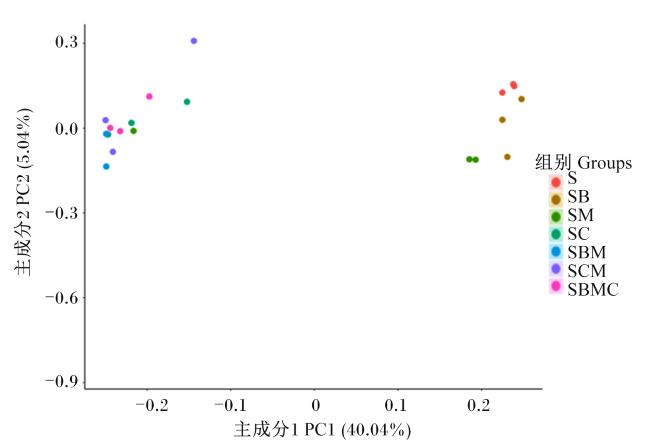
PCA是一种常用的数据降维技术,通过分析不同样本扩增序列变体(ASV)组成反映样本间的差异,即PCA图中的距离越近,样本组成就越相似。如图4所示,主成分1(PC1)和主成分2(PC2)方差贡献率解释度分别为40.04%和5.04%,不同添加剂组的微生物群落之间有明显分散,尤其是S组、SM组、SC组与SB组、SBM组、SBMC组、SCM组之间分离明显,表明甜高粱青贮饲料添加菌与酶制剂会改变微生物群落构成。
图4 不同添加剂组甜高粱青贮中微生物的主成分分析

Fig.4 Microbial principal component analysis of sweet sorghum silage in different additive treatment groups

2.6.3 门水平微生物分布

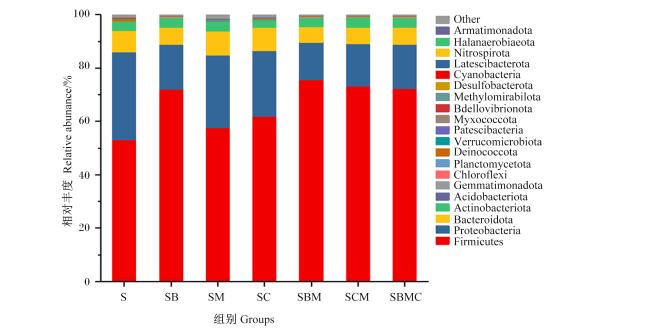
图5所示,青贮60 d后甜高粱单贮和添加菌酶制剂青贮的优势菌门均为厚壁菌门(Firmicutes),其次是变形菌门(Proteobacteria),拟杆菌门(Bacteroidota)和放线菌门(Actinobacteriota)也少量存在。厚壁菌门相对丰度最高的是SBM组(75.58%),其次是SCM组(73.33%)、SBMC组(72.42%)和SB组(72.02%),最低的是S组(53.01%);变形菌门相对丰度最高的是S组(32.98%),其次是SM组(27.32%)、SC组(24.64%),最低的是SBM组(14.10%)。上述结果说明添加菌酶制剂能增加甜高粱青贮微生物中厚壁菌门的相对丰度,降低变形菌门的相对丰度。
图5 不同添加剂组甜高粱青贮微生物在门水平上的分布

Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Bacteroidota:拟杆菌门;Actinobacteriota:放线菌门;Acidobacteriota:酸杆菌门;Gemmatimonadota:芽单胞菌门;Chloroflexi:绿弯菌门;Planctomycetota:浮霉菌门;Deinococcota:奇异球菌门;Verrucomicrobiota:疣微菌门;Patescibacteria:髌骨菌门;Myxococcota:黏球菌门;Bdellovibrionota:蛭弧菌门;Methylomirabilota:甲基微菌门;Desulfobacterota:脱硫菌门;Cyanobacteria:蓝藻门;Latescibacterota:迟杆菌门;Nitrospirota:硝化螺旋菌门;Halanaerobiaeota:盐厌氧菌门;Armatimonadota:装甲军门;Other:其他。

Fig.5 Microbial distribution at phylum level of sweet sorghum silage in different additive groups

2.6.4 属水平微生物分布

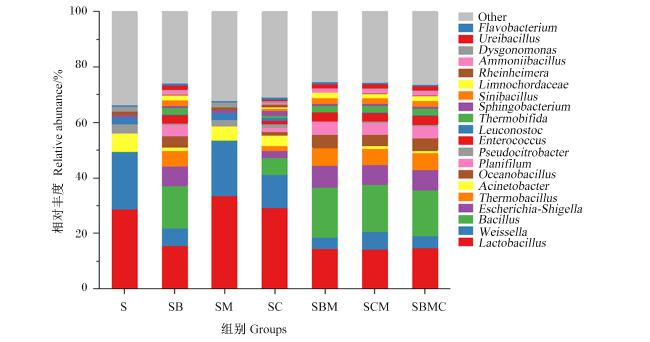
图6可知,SM组的优势菌属为乳杆菌属(Lactobacillus),除SM组外,其他组的其他菌属(Other)相对丰度均大于乳杆菌属,说明单独添加植物乳杆菌能提高乳杆菌属的相对丰度。乳杆菌属相对丰度由大到小依次为SM组(33.45%)、SC组(29.34%)、S组(28.78%)、SB组(15.41%)、SBMC组(14.78%)、SBM组(14.57%)和SCM组(14.38%)。SM组、SC组和S组的魏斯氏菌属(Weissella)的相对丰度高于SB组、SCM组、SBM组和SBMC组,其中以SM组魏斯氏菌属的相对丰度最高,为19.97%,SBM组魏斯氏菌属的相对丰度最低,为3.92%。SM组和S组的明串珠菌属(Leuconostoc)高于其他组,且以SM组明串珠菌属的相对丰度最高,为2.54%。此外,SM组和S组芽孢杆菌属(Bacillus)、埃希氏-志贺氏菌属(Escherichia-Shigella)、热杆菌属(Thermobacillus)和肠杆菌属(Enterococcus)的相对丰度均低于SB组、SC组、SBM组、SCM组和SBMC组。
图6 不同添加剂组甜高粱青贮微生物在属水平上的分布

Lactobacillus:乳杆菌属;Weissella:魏斯氏菌属;Bacillus:芽孢杆菌属;Thermobacillus:热杆菌属;Escherichia-Shigella:埃希氏-志贺氏菌属;Acinetobacter:不动杆菌属;Oceanobacillus:大洋芽孢杆菌;Planifilum:污泥扁平丝菌属;Pseudocitrobacter:假柠檬酸杆菌属;Enterococcus:肠球菌属;Leuconostoc:明串珠菌属;Thermobifida:褐色嗜热裂孢菌属;Sphingobacterium:鞘氨醇杆菌属;Sinibacillus:中华芽胞杆菌属;Limnochordaceae:湖线菌属;Rheinheimera:莱茵海默氏菌属;Ammoniibacillus:氨芽胞杆菌属;Dysgonomonas:营发酵单胞菌属;Ureibacillus:嗜热尿素芽孢杆菌;Flavobacterium:黄杆菌属;Other:其他。

Fig.6 Microbial distribution at genus level of sweet sorghum silage in different additive groups

2.6.5 种水平微生物分布

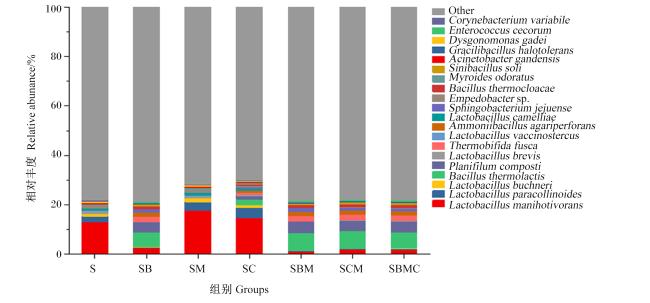
图7可知,S组、SM组和SC组食木薯乳杆菌(Lactobacillus manihotivorans)的相对丰度高于其他组,其中以SM组最高,为17.69%,其次是SC组,为14.61%,S组为13.13%。同样地,S组、SM组和SC组副柯林斯乳杆菌(Lactobacillus paracollinoides)的相对丰度也高于其他组,其中以SC组最高,达4.19%,其次是SM组,为3.48%,S组为2.29%。此外,布氏乳杆菌(Lactobacillus buchneri)相对丰度也以SM组、SC组和S组较高,分别为1.53%、1.11%和0.88%。SCM组、SBMC组、SB组和SBM组嗜热杆菌(Bacillus thermolactis)的相对丰度高于其他组,相对丰度由大到小依次为SCM组(7.01%)、SBMC组(6.53%)、SB组(5.84%)、SBM组(5.01%)。
图7 不同添加剂组甜高粱青贮微生物在种水平上的分布

Lactobacillus manihotivorans:食木薯乳杆菌;Lactobacillus paracollinoides:副柯林斯乳杆菌;Lactobacillus buchneri:布氏乳杆菌;Bacillus thermolactis:嗜热杆菌;Planifilum composti:污泥扁平丝菌;Lactobacillus brevis:短乳杆菌;Thermobifida fusca:褐色高温双歧菌;Lactobacillus vaccinostercus:牛痘乳杆菌;Ammoniibacillus agariperforans:穿琼脂氨芽孢杆菌;Lactobacillus camelliae:茶叶乳杆菌;Sphingobacterium jejuense:济州鞘氨醇杆菌;Empedobacter sp.:短黄杆菌;Bacillus thermocloacae:热阴沟芽孢杆菌;Myroides odoratus:气味类香味菌;Sinibacillus soli:土壤中华芽孢杆菌;Acinetobacter gandensis:根特不动杆菌;Gracilibacillus halotolerans:耐盐纤细芽孢杆菌;Dysgonomonas gadei:伽岱恶单胞菌;Enterococcus cecorum:盲肠肠球菌;Corynebacterium variabile:变异棒杆菌;Other:其他。

Fig.7 Microbial distribution at species level of sweet sorghum silage in different additive groups

3 讨论

3.1 不同添加剂对甜高粱青贮感官品质和营养成分的影响

感官评定是生产实践中对青贮饲料进行品质评定的一种方法,具有方便快捷的优点[22],其中气味、质地和色泽是感官评定的主要指标。本试验中,添加不同添加剂的甜高粱青贮在发酵60 d后均未发生霉变现象,开袋后具有较浓的果酸香味,色泽与甜高粱原料相近,其中SM组、SC组、SCM组和SBMC组的感官评定总分均高于18分,说明单独或联合添加植物乳杆菌和纤维素酶有利于提高甜高粱青贮饲料的感官品质,这与付志慧等[23]的研究结果一致。
青贮饲料的DM含量对饲料的质量和营养价值至关重要,适宜的DM含量(30%~35%)有助于确保青贮饲料在发酵过程中形成稳定的LA环境。本试验结果表明,与甜高粱单贮相比,菌酶联合处理可显著提高甜高粱青贮饲料的DM含量,尤其是SCM组的DM含量显著高于其他组,这可能是由于添加纤维素酶能够裂解木质纤维结构的β-1,4键,将结构性碳水化合物转化为WSC,为乳酸菌的大量繁殖提供了充分的底物[24],使其在青贮初期快速成为优势菌群,抑制了有害微生物的活性,从而减少了DM损失,提高了青贮饲料的营养价值。此外,本研究还发现,单独接种植物乳杆菌组的DM含量低于甜高粱单贮组,出现这一现象的原因可能是植物乳杆菌属于兼性异型乳酸菌,其产酸速度慢于同型乳酸菌[25-26],这就导致在青贮发酵前期,植物乳杆菌未能快速占据优势地位,使得酵母菌、肠杆菌和醋酸菌等好氧微生物繁殖较快,消耗了甜高粱的营养物质,造成DM损失。也有研究认为,接种单一乳酸菌所产生的LA容易被以LA为碳源的酵母菌所利用,从而影响青贮饲料的DM含量[27]
CP、NDF和ADF是反映饲草饲用价值的重要指标,优质饲料需要有较高的CP含量和适宜的纤维含量。本研究中,单独接种枯草芽孢杆菌或其与植物乳杆菌和纤维素酶联用,有利于提高甜高粱青贮饲料的CP含量,降低NDF和ADF含量,这可能是由于枯草芽孢杆菌分泌的多种消化酶能有效分解植物细胞壁中的纤维组分;此外,枯草芽孢杆菌类群能够通过多种抗菌机制发挥抑菌作用,其可产生抗菌活性成分[28],这些活性成分可以通过诱导细胞裂解、抑制特定酶活性或细菌蛋白质合成等机制抑制不良微生物的生长[29],以实现抗菌效果,降低有害菌对CP的水解,有助于保持饲料的营养价值。Lara等[26]在玉米青贮中单独接种枯草芽孢杆菌或其与植物乳杆菌联合接种,均能降低NDF和ADF含量。Shi等[30]研究表明,在玉米-豆粕固体发酵中添加枯草芽孢杆菌能提高CP含量。以上研究结果与本研究结果保持一致。
WSC在青贮过程中扮演着重要的角色,它不仅是青贮发酵过程中的主要底物,同时也直接影响到青贮饲料的最终品质和营养价值。本研究中SM组和SBM组的WSC含量低于S组,而SCM组和SBMC组的WSC含量高于其他组,这主要归因于纤维素酶在青贮初期的强烈酶解作用,有助于分解甜高粱青贮中的部分结构性多糖,将其转化为低聚糖和葡萄糖等物质,这些物质可供乳酸菌等微生物利用,纤维素酶产生葡萄糖的速率远超微生物发酵所消耗的速率,从而增加了青贮饲料中WSC的含量,这与武齐丰等[24]的研究结果一致。

3.2 不同添加剂对甜高粱青贮发酵品质的影响

青贮过程中pH的降低主要归因于有机酸的累积,尤其是LA的大量生成,因此pH能直观反映青贮饲料发酵成功与否,一般认为当pH≤4.2说明青贮发酵良好[31-32]。本试验中单独接种植物乳杆菌的组pH最低,此外单独添加纤维素酶及其与植物乳杆菌联用的组pH也低于甜高粱单贮组。这说明接种植物乳杆菌能够促进乳酸菌产生大量LA,进而导致pH明显降低,这从SM组的LA含量显著高于其他组能得以印证。任海伟等[33]研究表明,在甜高粱渣中单独接种植物乳杆菌青贮后LA含量高于菌酶处理组,这与本研究结果一致。
AA是异型发酵乳酸菌的关键代谢产物,具有良好的酸化和防腐性能,能够有效抑制霉菌和酵母菌的繁殖,进而增强青贮饲料的有氧稳定性[34]。本试验中,SM组的AA含量显著高于其他组,可能原因是植物乳杆菌具有磷酸转酮酶,能将戊糖发酵为LA和LA,因此代谢产物除LA外还有AA、乙醇和CO2。同时,AA含量的增加也可能与明串珠菌属、魏斯氏菌属等异型乳酸菌的相对丰度增加有关,能代谢产生更多AA[35],这与图6中显示的结果相吻合。PA作为一种短链脂肪酸,具有抗真菌的作用,能够有效防止青贮饲料腐败。本研究中,单独接种枯草芽孢杆菌能显著提高甜高粱青贮的PA含量,这可能是因为枯草芽孢杆菌能够分泌多种与碳水化合物代谢相关的酶,如淀粉酶,其可以将淀粉分解为葡萄糖等单糖后,通过糖酵解(EMP)途径转化为丙酮酸,再经过一系列酶促反应将丙酮酸转化为PA。值得注意的是,菌酶联合处理组的PA含量均介于单独接种枯草芽孢杆菌和单独接种植物乳杆菌、纤维素酶的甜高粱青贮之间,这表明枯草芽孢杆菌与其他菌或酶剂之间存在着相互制约的关系,限制了将彼此的作用发挥到最好,但又结合了彼此的发酵特性。NH3-N含量是反映青贮饲料中蛋白质降解程度的指标,其产生主要由于植物酶对蛋白质的降解和微生物分解利用蛋白质和氨基酸共同作用的结果。本试验中,各组的NH3-N浓度差异不显著,但从数值上看,接种枯草芽孢杆菌有降低甜高粱青贮饲料中NH3-N含量的趋势,这表明在甜高粱青贮中接种枯草芽孢杆菌可能会抑制不良微生物对蛋白质的分解,提高青贮品质。

3.3 不同添加剂对甜高粱青贮微生物数量和微生物多样性的影响

alpha多样性主要用于评估样本群落中物种的丰富度及多样性[36]。ACE指数和Chao1指数反映群落丰富度,Shannon指数和Simpson指数反映群落的多样性,数值越大说明微生物群落的丰富度或多样性越高。本试验中,SB组、SC组、SBM组、SCM组和SBMC组的alpha多样性指数均高于S组,其中SC组各指数均最大,说明纤维素酶的添加提高了甜高粱青贮饲料中微生物群落的多样性和丰富度。这与Zhao等[37]在玉米秸秆与大豆残渣中添加纤维素酶能够提高青贮饲料Shannon指数和Simpson指数的结果一致。此外,本试验结果还显示,单独接种植物乳杆菌降低了甜高粱青贮饲料的alpha多样性指数,说明接种植物乳杆菌后青贮饲料中微生物的多样性降低。这与Eikmeyer等[38]通过高通量测序观察到的接种植物乳杆菌后青贮饲料的微生物多样性降低的结果相一致。
为了进一步揭示不同菌酶组合对甜高粱青贮细菌群落组成的影响,在门、属和种水平上对细菌群落进行了评估。基于门水平的微生物分布,各组优势菌门均为厚壁菌门,其次为变形菌门。厚壁菌门是革兰氏阳性菌,能降解多种大分子化合物,青贮饲料中厚壁菌门最主要的菌属是乳杆菌属,其直接影响青贮品质。变形菌门包括大肠杆菌、沙门氏菌等病原菌,会与乳酸菌竞争营养物质并产生生物胺,对青贮发酵品质产生负面影响。本研究中,甜高粱单贮组变形菌门的相对丰度最高,添加不同的菌酶制剂后,甜高粱青贮饲料中变形菌门的相对丰度明显降低,其中SBM组的厚壁菌门相对丰度最高,变形菌门相对丰度最低,这表明接种枯草芽孢杆菌和植物乳杆菌能够促进青贮饲料中厚壁菌门的生长,抑制不良发酵菌的增殖。这可能是由于接种植物乳杆菌后低pH的内环境抑制了不良微生物的生长,从而降低了变形菌门的相对丰度,也可能是由于枯草芽孢杆菌产生的抗菌物质引起的抑制作用。
同时,本研究还观察到单独接种植物乳杆菌后提高了甜高粱青贮饲料中乳杆菌属、魏斯氏菌属和明串球菌属的相对丰度,降低了肠杆菌属、芽孢杆菌属以及埃希氏-志贺氏菌属等其他菌属的相对丰度。这与Yang等[39]报道的接种植物乳杆菌可以降低细菌的多样性,显著提高乳杆菌相对丰度和LA含量的研究结果相一致。已有研究表明,乳杆菌属、明串球菌属、片球菌属和魏斯氏菌属等是青贮过程中的主要优势菌属,是青贮发酵中后期的优势功能微生物类群[40-41]。结合SM组的AA含量显著高于其他组,推测本研究自选的植物乳杆菌作为青贮添加剂能通过产生高浓度的AA来抑制酵母菌、霉菌等不良微生物的生长,从而改变微生物群落的组成。
在种水平上,SM组、SC组和S组的优势菌种是食木薯乳杆菌和副柯林斯乳杆菌,说明在不添加任何酶菌制剂的情况下,甜高粱青贮饲料能通过自然发酵过程保证青贮品质,而单独添加植物乳杆菌或纤维素酶则可以进一步优化青贮饲料的发酵效果,尤其是SM组的布氏乳杆菌相对丰度高于其他组,这预示着SM组在有氧抑菌方面将会表现出比其他组更强的抗性作用,有助于提高青贮饲料的有氧稳定性。此外,本研究还发现接种枯草芽孢杆菌能提高热酸芽孢杆菌(Bacillus thermolactis)的相对丰度。Coorevits等[42]根据16S rRNA基因序列分析和DNA-DNA杂交试验,验证了从奶牛场环境(如原奶、滤布、稻草或挤奶设备)中分离出的产芽孢杆菌与嗜热淀粉芽孢杆菌(Bacillus thermoamylovorans)的基因序列相似性达93.9%,并将其命名为热酸芽孢杆菌。虽然目前对于热酸芽孢杆菌在青贮方面的研究较少,但基于嗜热淀粉芽孢杆菌的产酶功能和抗菌能力,推测接种枯草芽孢杆菌对甜高粱青贮发酵具有促进作用,尤其是在降解纤维素和减少霉菌繁殖方面。

3.4 隶属函数法综合评价甜高粱青贮的品质

本试验对甜高粱青贮的14个指标进行隶属函数评价,结果显示,SBMC组、SM组和SCM组甜高粱青贮质量较好,综合价值分别达到了0.65、0.60和0.56,以SBMC组最高。这一结果表明,通过添加枯草芽孢杆菌、植物乳杆菌和纤维素酶形成的复合处理的协同效应显著优化了甜高粱青贮的品质。然而,需要指出的是,本试验是在实验室条件下进行的袋装青贮研究,原料的均匀性、添加剂的添加量以及青贮厌氧状态都处于较为理想的水平,与大规模青贮生产中涉及的大体量和复杂环境存在一定差异。尽管如此,但本试验的结果仍为大规模甜高粱青贮提供了有价值的参考。未来,我们将进一步开展田间试验,以验证实验室研究成果在大规模生产中的适用性,并根据实际情况对青贮工艺进行调整和优化。

4 结论

① 枯草芽孢杆菌单独或与植物乳杆菌和纤维素酶联合添加,有助于保存CP、WSC等营养成分,降低木质纤维组分,从而提高甜高粱青贮饲料的营养价值。
② 添加植物乳杆菌提高了甜高粱青贮饲料中乳杆菌属、魏斯氏菌属和明串球菌属等有益菌群的相对丰度,优化了菌群结构,提升了LA和AA含量,改善了甜高粱青贮饲料的发酵品质。
③ 综合甜高粱青贮饲料的营养价值、发酵品质和微生物组成等因素,推荐枯草芽孢杆菌、植物乳杆菌和纤维素酶联合作为甜高粱青贮的添加剂,可获得更好的青贮效果。
[1]
ZHANG L M, LENG C Y, LUO H, et al. Sweet sorghum originated through selection of dry,a plant-specific NAC transcription factor gene[J]. The Plant Cell, 2018, 30(10):2286-2307.

[2]
赵杰, 尹雪敬, 王思然, 等. 贮藏时间对甜高粱青贮发酵品质、微生物群落组成和功能的影响[J]. 草业学报, 2023, 32(8):164-175.

DOI

ZHAO J, YIN X J, WANG S R, et al. Effects of storage time on the fermentation quality,bacterial community composition,and functional profile of sweet sorghum silage[J]. Acta Prataculturae Sinica, 2023, 32(8):164-175. (in Chinese)

DOI

[3]
TAO Y, SUN Q Z, LI F, et al. Comparative analysis of ensiling characteristics and protein degradation of alfalfa silage prepared with corn or sweet sorghum in semiarid region of Inner Mongolia[J]. Animal Science Journal, 2020, 91(1):e13321.

[4]
KRITAS S K, GOVARIS A, CHRISTODOULOPOULOS G, et al. Effect of Bacillus licheniformis and Bacillus subtilis supplementation of ewe’s feed on sheep milk production and young lamb mortality[J]. Journal of Veterinary Medicine Series A, 2006, 53(4):170-173.

[5]
CAULIER S, GILLIS A, COLAU G, et al. Versatile antagonistic activities of soil-borne Bacillus spp. and Pseudomonas spp. against Phytophthora infestans and other potato pathogens[J]. Front in Microbiology, 2018,9:143.

[6]
ALAMRI S A. Enhancing the efficiency of the bioagent Bacillus subtilis JF419701 against soil-borne phytopathogens by increasing the productivity of fungal cell wall degrading enzymes[J]. Archives of Phytopathology and Plant Protection, 2015, 48(2):159-170.

[7]
GUO X J, GUO W, YANG M, et al. Effect of Bacillus additives on fermentation quality and bacterial community during the ensiling process of whole-plant corn silage[J]. Processes, 2022, 10(5):978.

[8]
朱佳文, 李峪鹏, 许祯莹, 等. 添加枯草芽孢杆菌对桑青贮发酵品质的研究[J]. 中国饲料, 2020(3):82-86.

ZHU J W, LI Y P, XU Z Y, et al. Research on fermentation quality of mulberry silage of adding Bacillus subtyilis[J]. China Feed, 2020(3):82-86. (in Chinese)

[9]
DOU Q, LUO B, DAI X H, et al. Effects of additives and planting density on silage performance and bacterial community of novel Sorghum bicolor×S.propinquum hybrids[J]. Fermentation, 2024, 10(8):434.

[10]
DESTA S T, YUAN X J, LI J F, et al. Ensiling characteristics,structural and nonstructural carbohydrate composition and enzymatic digestibility of Napier grass ensiled with additives[J]. Bioresource Technology, 2016,221:447-454.

[11]
XIA T Q, TAHIR M, WANG T W, et al. Lactobacillus cocktail and cellulase synergistically improve the fiber transformation rate in Sesbania cannabina and sweet sorghum mixed silage[J]. Chemical and Biological Technologies in Agriculture, 2024, 11(1):81.

[12]
LARA E C, BRAGIATO U C, RABELO C H S, et al. Inoculation of corn silage with Lactobacillus plantarum and Bacillus subtilis associated with amylolytic enzyme supply at feeding.1.Feed intake,apparent digestibility,and microbial protein synthesis in wethers[J]. Animal Feed Science and Technology, 2018,243:22-34.

[13]
YIN H, ZHAO M R, PAN G, et al. Effects of Bacillus subtilis or Lentilactobacillus buchneri on aerobic stability,and the microbial community in aerobic exposure of whole plant corn silage[J]. Frontiers in Microbiology, 2023,14:1177031.

[14]
王保平, 董晓燕, 董宽虎. 不同添加剂对柠条嫩枝叶青贮品质的影响[J]. 草地学报, 2014, 22(5):1096-1102.

DOI

WANG B P, DONG X Y, DONG K H. Effects of different additives on the quality of Caragana korshinskii silage[J]. Acta Agrestia Sinica, 2014, 22(5):1096-1102. (in Chinese)

[15]
BONALDI D S, CARVALHO B F, ÁVILA C L D S, et al. Effects of Bacillus subtilis and its metabolites on corn silage quality[J]. Letters in Applied Microbiology, 2021, 73(1):46-53.

[16]
侯建建, 白春生, 张庆, 等. 单一和复合乳酸菌添加水平对苜蓿青贮营养品质及蛋白组分的影响[J]. 草业科学, 2016, 33(10):2119-2125.

HOU J J, BAI C S, ZHANG Q, et al. Effects of different additive amount of single and multiple lactic acid bacteria on the silage quality and protein fractions of alfalfa[J]. Pratacultural Science, 2016, 33(10):2119-2125. (in Chinese)

[17]
ZHU Y, NISHINO N, KISHIDA Y, et al. Ensiling characteristics and ruminal degradation of Italian ryegrass and lucerne silages treated with cell wall-degrading enzymes[J]. Science, 1999, 79(14):1987-1992.

[18]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber, neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[19]
李富国. 青贮水稻秸发酵品质及其饲喂肉牛效果的研究[D].硕士学位论文. 哈尔滨: 东北农业大学, 2013:35-36.

LI F G. Studies of rice straw silage and its feeding value on beef cattle[D].Master’s Thesis. Harbin: Northeast Agricultural University, 2013:35-36. (in Chinese)

[20]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

[21]
谢婉, 杨喜珍, 杨利, 等. 添加物料和菌剂对日喀则地区马铃薯茎叶青贮品质的影响[J]. 草业科学, 2017, 34(1):173-185.

XIE W, YANG X Z, YANG L, et al. Effects of the addition of different additives and biological agents on the quality of potato stem and leaf silage in Shigatse[J]. Pratacultural Science, 2017, 34(1):173-185. (in Chinese)

[22]
王杰, 张养东, 郑楠, 等. 青贮饲料感官评定研究进展[J]. 中国奶牛, 2019(1):1-3.

WANG J, ZHANG Y D, ZHENG N, et al. Research progress in sensory evaluation of sliage[J]. China Dairy Cattle, 2019(1):1-3. (in Chinese)

[23]
付志慧, 格根图, 贾玉山, 等. 添加剂对黑麦草青贮品质及微生物数量的影响[J]. 草地学报, 2022, 30(5):1296-1301.

DOI

FU Z H, GE G T, JIA Y S, et al. Effects of additives on silage quality and microorganism counts of ryegrass[J]. Acta Agrestia Sinica, 2022, 30(5):1296-1301. (in Chinese)

[24]
武齐丰, 陈晨, 黄沁骄, 等. 纤维素酶和乳酸菌对杂交象草青贮结构性碳水化合物影响[J]. 草地学报, 2024, 32(7):2314-2322.

DOI

WU Q F, CHEN C, HUANG Q J, et al. A effects of cellulase and high-temperature tolerant lactic acid bacteria on structural carbohydrate of (Pennisetum americanum×P.purpureumP.durpureum Schum[J]. Acta Agrestia Sinica, 2024, 32(7):2314-2322. (in Chinese)

[25]
王天威, 曹艳红, 杨果, 等. 乳酸菌对青贮品质及草食家畜健康的影响[J]. 中国科学(生命科学), 2020, 50(9):927-938.

WANG T W, CAO Y H, YANG G, et al. Effects of lactic acid bacteria on the quality of silage and health of ruminants[J]. Scientia Sinica (Vitae), 2020, 50(9):927-938. (in Chinese)

[26]
LARA E C, BASSO F C, DE ASSIS F, et al. Changes in the nutritive value and aerobic stability of corn silages inoculated with Bacillus subtilis alone or combined with Lactobacillus plantarum[J]. Animal Production Science, 2016, 56(11):1867-1874.

[27]
WANG T W, TENG K L, CAO Y H, et al. Effects of Lactobacilus hilgardi 60Ts-2,with or without homofermenlative Lactobacillus plamtarum B90,on the aerobic stability,fermentation quality and microbial community dynamics in sugarcane top silage[J]. Bioresource Technology, 2020,312:123600.

[28]
CAULIER S, NANNAN C, GILLIS A, et al. Overview of the antimicrobial compounds produced by members of the Bacillus subtilis group[J]. Frontiers in Microbiology, 2019,10:302.

[29]
陈国旺, 南景东, 张建胜, 等. 枯草芽孢杆菌和乳酸菌对青贮饲料发酵效果的研究进展[J]. 中国饲料, 2025(1):157-161.

CHEN G W, NAN J D, ZHANG J S, et al. Research progress on the fermentation effect of Bacillus subtilis and lactic acid bacteria on silage[J]. China Feed, 2025(1):157-161. (in Chinese)

[30]
SHI C, ZHANG Y, YIN Y, et al. Amino acid and phosphorus digestibility of fermented corn-soybean meal mixed feed with Bacillus subtilis and Enterococcus faecium fed to pigs[J]. Journal of Animal Science, 2017, 95(9):3996-4004.

[31]
WANG C, ZHENG M Y, WU S, et al. Effects of gallic acid on fermentation parameters,protein fraction,and bacterial community of whole plant soybean silage[J]. Frontiers in Microbiology, 2021,12:662966.

[32]
ALI N, WANG S R, ZHAO J, et al. Microbial diversity and fermentation profile of red clover silage inoculated with reconstituted indigenous and exogenous epiphytic microbiota[J]. Bioresource Technology, 2020,314:123606.

[33]
任海伟, 石瑞锋, 魏慧元, 等. 菌/酶添加对甜高粱渣青贮预处理作用的强化效果[J]. 农业工程学报, 2023, 39(6):224-236.

REN H W, SHI R F, WEI H Y, et al. Improvement for the ensiling pretreatment effectiveness of sweet sorghum bagasse by fortified with Lactobacillus plantarum and cellulolytic enzymes[J]. Transactions of the Chinese Society of Agricultural Engineering, 2023, 39(6):224-236. (in Chinese)

[34]
KLEINSCHMIT D H, KUNG L,Jr. Meta-analysis of the effects of Lactobacillus buchneri on the fermentation and aerobic stability of corn and grass and small-grain silages[J]. Journal of Dairy Science, 2006, 89(10):4005-4013.

[35]
WANG S R, SHAO T, LI J F, et al. A survey of fermentation parameters,bacterial community compositions and their metabolic pathways during the ensiling of sorghum[J]. Journal of Applied Microbiology, 2022, 132(5):3563-3577.

[36]
LI B, ZHANG X X, GUO F, et al. Characterization of tetracycline resistant bacterial community in saline activated sludge using batch stress incubation with high-throughput sequencing analysis[J]. Water Research, 2013, 47(13):4207-4216.

DOI PMID

[37]
ZHAO C, WANG L H, MA G M, et al. Cellulase interacts with lactic acid bacteria to affect fermentation quality,microbial community,and ruminal degradability in mixed silage of soybean residue and corn stover[J]. Animals, 2021, 11(2):334.

[38]
EIKMEYER F G, KÖFINGER P, POSCHENEL A, et al. Metagenome analyses reveal the influence of the inoculant Lactobacilus buchneri CD034 on the microbial community involved in grass ensiling[J]. Journal of Biotechnology, 2013,167:334-343.

[39]
YANG F Y, WANG Y P, ZHAO S S, et al. Lactobacillus plantarum inoculants delay spoilage of high moisture alfalfa silages by regulating bacterial community composition[J]. Frontiers in Microbiology, 2020,11:1989.

[40]
SOUNDHARRAJAN I, PARK H S, RENGASAMY S, et al. Application and future prospective of lactic acid bacteria as natural additives for silage production—a review[J]. Applied Sciences, 2021, 11(17):8127.

[41]
ALHAAG H, YUAN X J, MALA A, et al. Fermentation characteristics of Lactobacillus plantarum and Pediococcus species isolated from sweet sorghum silage and their application as silage inoculants[J]. Applied Sciences, 2019, 9(6):1247.

[42]
COOREVITS A, LOGAN N A, DINSDALE A E, et al. Bacillus thermolactis sp.nov.,isolated from dairy farms,and emended description of Bacillus thermoamylovorans[J]. International Journal of Systematic and Evolutionary Microbiology, 2011, 61(Pt 8):1954-1961.

Outlines

/