RESEARCH PAPER

Effects of Caging Stress on Structure, Composition and Short Chain Fatty Acid Producing Capacity of Jejunal and Cecal Bacterial Community in Shaoxing Ducks

  • ZENG Hongbo , 1 ,
  • XIAO Yingping 1 ,
  • CHEN Bindan 2 ,
  • JIANG Chunqing 3 ,
  • SHEN Jiamin 4 ,
  • ZHAO Guangmin 2 ,
  • MA Lingyan 1 ,
  • YANG Hua , 1, *
Expand
  • 1 State Key Laboratory for Quality and Safety of Agro-Products, Institute of Agro-Product Safety and Nutrition, Zhejiang Academy of Agricultural Sciences, Hangzhou 310021, China
  • 2 Zhejiang Guowei Technology Co., Ltd., Zhuji 311800, China
  • 3 Jinhua Jinwu Agricultural Development Co., Ltd., Jinhua 321019, China
  • 4 Zhejiang Zhuowang Agricultural Technology Co., Ltd., Huzhou 313000, China
*professor, E-mail:

Received date: 2025-07-24

  Online published: 2026-03-16

Abstract

This study aimed to investigate the caging stress on structure, composition and short chain fatty acid (SCFA) producing capacity of jejunal and cecal bacterial community in Shaoxing ducks. Two hundred 168-day-old Shaoxing ducks were floor-reared and then placed in cages for 14 days. At days 0 (before caging, while still floor-reared), 1, 3, 7 and 14 after caging, ten ducks were randomly selected at each time point for weighing, slaughtering, and collecting eggs and jejunal and cecal contents samples for further analysis. The results showed as follows: compared with the before caging, the egg production rate of Shaoxing ducks dropped to 29.27% (vs. 76.50% before caging) on day 3 post-caging, and eggshell strength decreased significantly (P<0.05). In comparison with before caging, distinct differences in the structure of jejunal and cecal bacterial community were observed on days 1 and 3 post-caging. In the jejunum, the relative abundances of Bacteroidota and Muribaculum increased, while the relative abundances of Campylobacterota and Helicobacter decreased. In the cecum, the relative abundances of Firmicutes, Actinobacteriota, Faecalibacterium and Slackia increased, whereas the relative abundances of Proteobacteria and Bacteroides decreased. The SCFA quantification results showed that, compared with the before caging, the propionate content in the jejunal contents was significantly decreased on day 1 post-caging (P<0.05), the acetate and isovalerate contents in the jejunal contents were significantly decreased on day 3 post-caging (P<0.05), and the acetate content in the jejunal contents was reduced significantly on day 7 post-caging (P<0.05). In the cecal contents, the contents of acetate, propionate, butyrate and valerate were all significantly decreased on days 1, 3, and 7 post-caging compared with before caging (P<0.05). On day 14 post-caging, egg production, eggshell strength, jejunal and cecal bacterial community structure, and SCFA producing capacity returned to before caging levels. In conclusion, ephemeral caging stress can reduce egg production rate and egg quality in Shaoxing ducks, and it also can alter the structure, composition and SCFA producing capacity of the jejunal and cecal bacterial community. However, these indicators gradually recover to the before caging levels on day 14 post-caging.

Cite this article

ZENG Hongbo , XIAO Yingping , CHEN Bindan , JIANG Chunqing , SHEN Jiamin , ZHAO Guangmin , MA Lingyan , YANG Hua . Effects of Caging Stress on Structure, Composition and Short Chain Fatty Acid Producing Capacity of Jejunal and Cecal Bacterial Community in Shaoxing Ducks[J]. Chinese Journal of Animal Nutrition, 2026 , 38(3) : 1977 -1990 . DOI: 10.12418/CJAN2026.159

中国家禽存栏量约占全球总量的1/4,其中鸭产品消费量也在逐年增加[1]。随着养殖业向规模化、集约化方向迈进,蛋鸭笼养作为一种现代化养殖模式,能够提高土地利用率、饲料转化率和产蛋率,同时降低鸭蛋破损率[2]。但是,在蛋鸭从地面平养转变为笼养的过程中,容易出现生理性应激反应。这种应激源包含活动空间受限、管理模式改变等多种因素,可能会导致绍兴鸭肠道组织受损、氧化应激和炎症反应加剧[3]
动物肠道内栖息着复杂多样的微生物群落,这些微生物对宿主的健康起着至关重要的作用[4],其中微生物产生的短链脂肪酸(SCFA)能够抑制病原菌生长,调节宿主的营养代谢和应激反应[5-6]。应激会导致动物肠道菌群失调,具体表现为厚壁菌门相对丰度上升、拟杆菌门相对丰度下降,以及条件致病菌大量增殖,进而造成肠道屏障完整性受损[7]。但是,目前关于蛋鸭上笼应激的研究主要聚焦于宿主相关组织器官变化[8-9]。肠道微生物在促进蛋鸭肠道及宿主健康方面发挥着重要纽带作用,与之相关的研究仍较为匮乏。绍兴鸭作为蛋鸭中的小体型品种,是我国优质的蛋用型麻鸭品种。它具有体型小巧、产蛋量高、饲料转化率佳、抗病能力强等特性[10],是开展蛋鸭笼养应激试验的理想模型。
基于此,本试验开展绍兴鸭上笼试验,旨在探究上笼应激对其空肠和盲肠菌群结构、组成及产SCFA能力的影响,这对于开发缓解蛋鸭上笼应激的微生态制剂以及优化蛋鸭饲养模式具有重要的理论意义。

1 材料与方法

1.1 伦理声明

动物试验方案经过浙江省农业科学院实验动物福利和伦理委员会审核及批准,批准编号:2022ZAASLA16。

1.2 试验设计及样品采集

试验于2024年12月,随机挑选200只健康、体重相近且采用地面平养的168日龄绍兴鸭进行上笼试验,上笼后单笼饲养14 d,采样时间点分别为上笼第0天(D0)(即上笼前,仍为地面平养)以及上笼后第1天(D1)、第3天(D3)、第7天(D7)和第14天(D14)。所有试验鸭被随机分配在立体3层阶梯式笼子的上、中、下层,每个时间点的采样均覆盖3层,以最小化层间差异。所有试验蛋鸭均自由采食同一饲粮,饲粮的配制参照《蛋鸭营养需要量》(GB/T 41189—2021)。每天记录所有蛋鸭产蛋数并收集鸭蛋样品。在每个采样时间点随机选取10只蛋鸭称重后屠宰。蛋鸭屠宰后,立即解剖取出肠道,空肠取样位置为十二指肠悬韧带后至回肠前段,盲肠取样位置为结肠两侧的盲囊。用无菌手术刀切开肠道,收集空肠中段和盲肠基部的内容物,置于无菌离心管中,在液氮中速冻,然后保存于-80 ℃冰箱待测。

1.3 蛋品质指标分析

使用蛋壳强度测定仪(FPG-5,日本Robotmation公司)测定鸭蛋蛋壳强度;使用多功能蛋品质分析仪(EA-01,以色列Orka Technology公司)测定鸭蛋哈氏单位。

1.4 空肠和盲肠微生物16S rDNA测序

1.4.1 基因组DNA提取及质量检测

按照E.Z.N.A.® DNA Isolation Kit(美国Omega公司)说明书描述的方法提取空肠和盲肠内容物的基因组DNA。利用NanoDrop 2000分光光度计(美国Thermo Fisher Scientific公司)和琼脂糖凝胶电泳检测DNA的浓度和纯度后,将提取的DNA保存于-80 ℃。

1.4.2 PCR扩增

以提取的基因组DNA为模板,使用带有样本特异性barcode序列的16S rRNA基因V3~V4区通用引物对341F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3'),并采用TaKaRa Ex Taq高保真DNA聚合酶进行PCR扩增,其中barcode序列连接在特异性引物序列的5'端。PCR扩增程序如下:94 ℃下进行4 min;在94 ℃下进行30 s,在55 ℃下进行30 s,在72 ℃下进行1 min,上述步骤进行25个循环,最后72 ℃保持10 min。

1.4.3 PCR产物纯化及测序

PCR产物经2%琼脂糖凝胶电泳后进行核酸纯化。利用Qubit® 3.0对纯化后的PCR产物进行精准定量,然后按照每个样本的测序量要求进行相应比例的混合。混合后的PCR产物进行PacBio测序文库构建,并委托上海凌恩生物科技有限公司使用PacBio Sequel Ⅱe平台进行测序。

1.5 生物信息学分析

使用SMRTLINK(version 9.0)对测序得到的原始序列进行质控以获得高质量的序列。使用QIIME2软件中的DADA2算法将序列拼接及嵌合体过滤后,通过RDP Classifier(http://rdp.cme.msu.edu)获得扩增子序列变体(ASV)序列。利用RDP classifier将每条ASV序列比对到Silva 16S rRNA基因数据库(version 138)以进行物种分类注释。使用QIIME2软件对肠道菌群进行Alpha和Beta多样性分析。组间差异菌群通过LEfSe分析确定,其筛选阈值为线性判别分析(LDA)得分>2.0且P<0.05。

1.6 空肠和盲肠内容物中SCFA含量检测

参考中国团体标准《猪肠内容物中短链脂肪酸含量的测定 气相色谱法》(T/SAASS 12—2021)测定肠道内容物中SCFA含量,具体操作如下:称取约0.1 g空肠或盲肠内容物,置于1.5 mL离心管中,加入1 mL的磷酸缓冲液,充分混匀后,7 000×g离心10 min;取0.5 mL上清液并转移至1.5 mL离心管中,再加入0.1 mL质量体积分数为25%的偏磷酸与巴豆酸混合溶液,于-20 ℃下过夜保存;上样前,提前1 h将样品解冻后以12 000×g离心10 min,取上清液过0.22 μm滤膜,然后取150 μL滤液利用气相色谱仪(日本岛津公司)测定SCFA含量。

1.7 统计分析

试验数据用SPSS 26.0统计软件进行单因素方差分析(one-way ANOVA)后,采用Duncan氏法进行多重比较,最终结果使用GraphPad Prism 8.0进行可视化呈现。

2 结果与分析

2.1 上笼应激对绍兴鸭产蛋性能和体重的影响

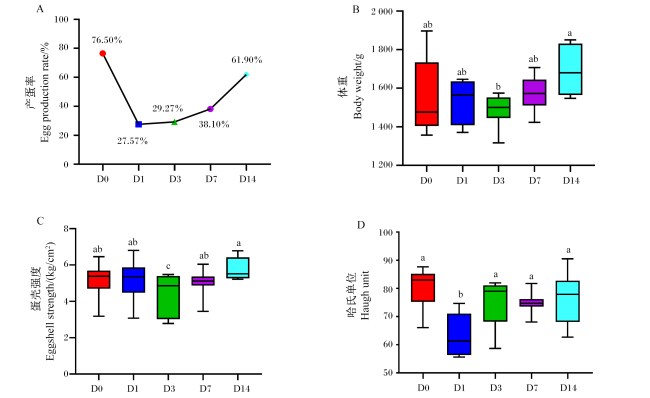
图1-A可知,绍兴鸭在上笼前(第0天)产蛋率为76.50%,上笼后第1天和第3天产蛋率分别下降至27.57%和29.27%;在上笼3 d后产蛋率有所回升,在上笼后第7天和第14天分别达到38.10%和61.90%。由图1-B可知,与上笼前相比,上笼后第1天和第3天绍兴鸭体重有所下降,但差异不显著(P>0.05);但与上笼后第3天相比,上笼后第14天绍兴鸭体重显著升高(P<0.05)。由图1-C图1-D可知,上笼后第1天绍兴鸭蛋哈氏单位以及第3天蛋壳强度与上笼前相比显著降低(P<0.05);在上笼后第14天蛋壳强度和哈氏单位与上笼前相比无显著差异(P>0.05)。
图1 不同上笼时间点绍兴鸭产蛋率(A)、体重(B)、蛋壳强度(C)和哈氏单位(D)的变化

D0:第0天(上笼前);D1:第1天;D3:第3天;D7:第7天;D14:第14天。数据柱标注不同小写字母表示差异显著(P<0.05),标注相同小写字母或无字母标注表示差异不显著(P>0.05)。下图同。

Fig.1 Changes of egg production rate (A), body weight (B), eggshell strength (C) and Haugh unit (D) of Shaoxing ducks at different caging time points

D0: day 0 (before caging); D1: day 1; D3: day 3; D7: day 7; D14: day 14. Different lowercase letters on the data bars indicate significant difference (P<0.05), while the same lowercase letter or no letter on the data bars indicate no significant difference (P>0.05). The same as below.

2.2 上笼应激对绍兴鸭肠道菌群Alpha多样性的影响

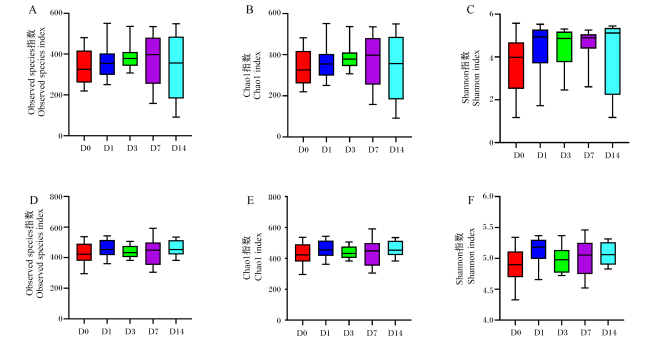
利用Alpha多样性分析(包括Observed species、Chao1、Shannon指数)评估了不同上笼时间点绍兴鸭空肠和盲肠菌群的丰富度和均匀度,结果显示,与上笼前相比,上笼后第1~14天空肠和盲肠菌群Observed species、Chao1和Shannon指数均无显著变化(P>0.05,图2)。
图2 不同上笼时间点绍兴鸭空肠(A~C)和盲肠(D~F)菌群Alpha多样性分析

Fig.2 Alpha diversity analysis of bacterial community in jejunum (A to C) and cecum (D to F) of Shaoxing ducks at different caging time points

2.3 上笼应激对绍兴鸭肠道菌群Beta多样性的影响

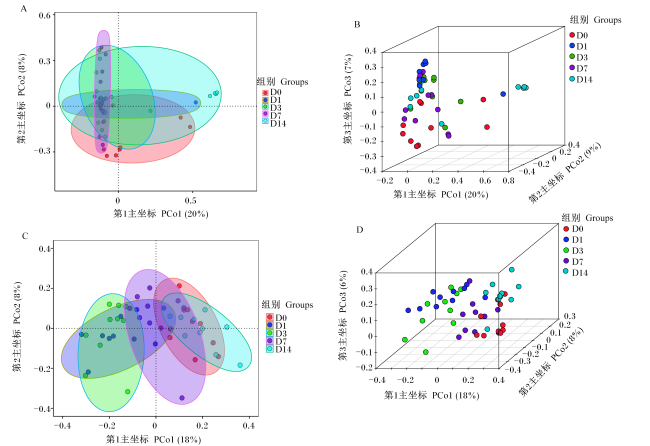
基于Bray-Curtis距离的主坐标分析(PCoA)结果显示,上笼前与上笼后第1天和第3天的空肠菌群样本在坐标空间中形成明显分离的聚类;上笼后第7天,空肠菌群结构开始恢复至上笼前水平,而在上笼后第14天空肠菌群结构与上笼前已较为相似(图3-A图3-B)。盲肠菌群的PCoA结果同样显示出与空肠菌群结构相同的变化趋势,上笼前与上笼后第1天和第3天的盲肠菌群样本在坐标空间中形成明显分离的聚类;上笼后第7天,盲肠菌群结构开始恢复至上笼前水平,而上笼后第14天盲肠菌群结构与上笼前最为相似(图3-C图3-D)。
图3 不同上笼时间点绍兴鸭空肠(A、B)和盲肠(C、D)菌群结构主坐标分析

Fig.3 PCoA of bacterial community structure in jejunum (A and B) and cecum (C and D) of Shaoxing ducks at different caging time points

2.4 上笼应激对绍兴鸭肠道菌群组成的影响

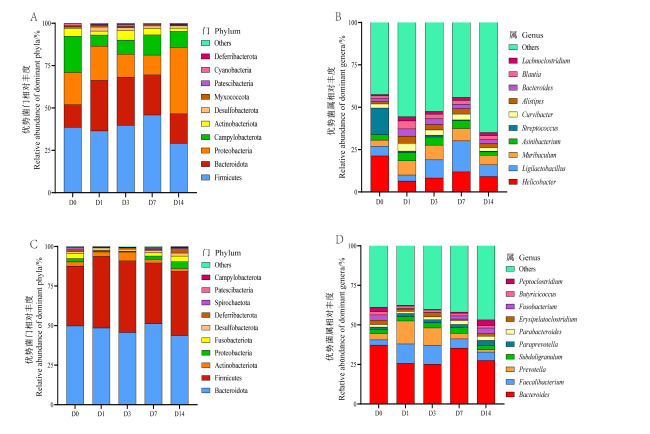
图4展示了空肠和盲肠菌群在门和属水平上组成的变化。
图4 不同上笼时间点绍兴鸭空肠(A、B)和盲肠(C、D)菌群在门和属水平上的组成分析

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Proteobacteria:变形菌门;Campylobacterota:弯曲菌门;Actinobacteriota:放线菌门;Desulfobacterota:脱硫杆菌门; Myxococcota:黏液球菌门;Patescibacteria:帕特西菌门;Cyanobacteria:蓝细菌门;Deferribacterota:脱铁杆菌门;Fusobacteriota:梭杆菌门;Spirochaetota:螺旋菌门;Helicobacter:螺杆菌属;Ligilactobacillus:利氏乳杆菌属;Muribaculum:鼠杆菌属;Asinibacterium:异杆菌属;Streptococcus:链球菌属;Curvibacter:弯杆菌属;Alistipes:另枝菌属; Bacteroides:拟杆菌属;Blautia:布劳特氏菌属;Lachnoclostridium:拉克梭菌属;Faecalibacterium:粪杆菌属;Prevotella:普雷沃氏菌属;Subdoligranulum:罕见小球菌属;Paraprevotella:帕拉普雷沃菌属;Parabacteroides:帕拉拟杆菌属;Erysipelatoclostridium:丹毒丝菌属;Fusobacterium:梭杆菌属;Butyricicoccus:丁酸梭菌属;Peptoclostridium:梭状芽孢杆菌属。

Fig.4 Composition analysis of bacterial community at phylum and genus levels in jejunum (A and B) and cecum (C and D) of Shaoxing ducks at different caging time points

在门水平上,空肠菌群中的主要优势菌门包括厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、变形菌门(Proteobacteria)和弯曲菌门(Campylobacterota)等(图4-A)。与上笼前相比,上笼后第1天和第3天拟杆菌门的相对丰度逐渐升高,而弯曲菌门的相对丰度逐渐降低,上笼后第7天逐渐恢复至上笼前水平;变形菌门的相对丰度在上笼后第3天逐渐降低,而在上笼后第14天逐渐升高至上笼前水平。在门水平上,盲肠菌群中的主要优势菌门为厚壁菌门、拟杆菌门、放线菌门(Actinobacteriota)和变形菌门等(图4-C)。与上笼前相比,上笼后第1天和第3天厚壁菌门和放线菌门的相对丰度逐渐升高,而变形菌门的相对丰度逐渐降低,上笼后第7天逐渐恢复至上笼前水平。
在属水平上,空肠菌群中的主要优势菌属包括螺杆菌属(Helicobacter)、利氏乳杆菌属(Ligilactobacillus)和鼠杆菌属(Muribaculum)等(图4-B)。与上笼前相比,上笼后第1天和第3天鼠杆菌属的相对丰度逐渐升高,而螺杆菌属的相对丰度逐渐降低,上笼后第7天螺杆菌属的相对丰度逐渐升高;利氏乳杆菌属的相对丰度在上笼后第1天逐渐降低,而在上笼后第3天逐渐升高,在上笼后第7天达到最大值,随后在上笼后第14天降低至上笼前水平。盲肠菌群中的主要优势菌属包括拟杆菌属(Bacteroides)、粪杆菌属(Faecalibacterium)和普雷沃氏菌属(Prevotella)等(图4-D)。与上笼前相比,上笼后第1天和第3天粪杆菌属和普雷沃氏菌属的相对丰度逐渐升高,而拟杆菌属的相对丰度逐渐降低,上笼后第14天逐渐恢复至上笼前水平。

2.5 上笼应激对绍兴鸭肠道差异菌群组成的影响

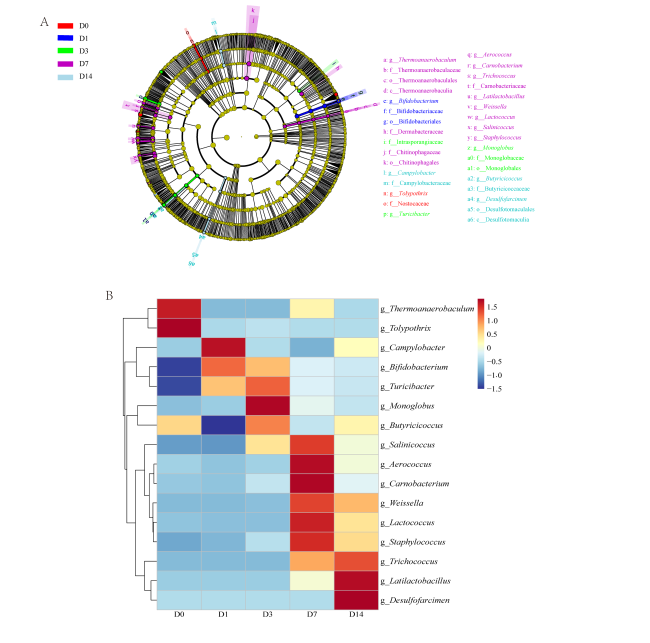
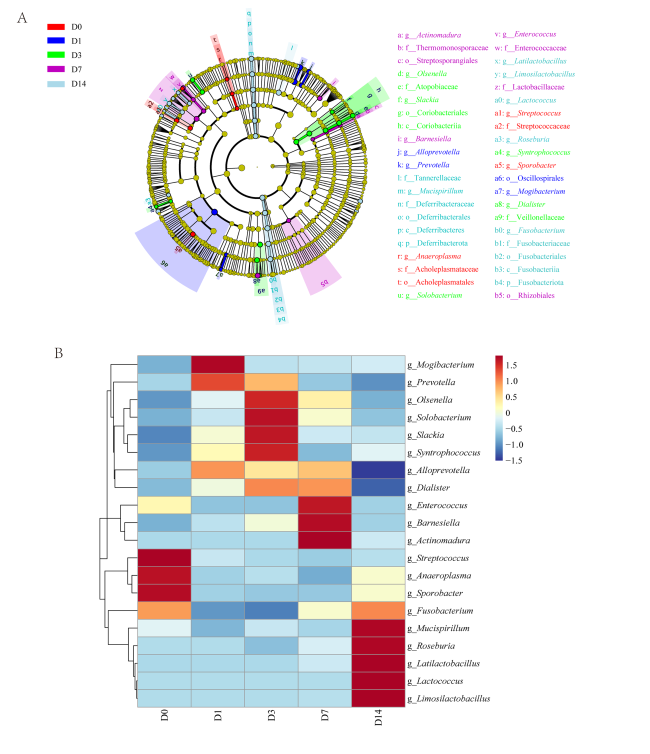
为明确随上笼应激变化的关键差异菌群组成,对空肠和盲肠菌群进行了LEfSe分析,结果如图5图6所示。
图5 不同上笼时间点绍兴鸭空肠菌群LEfSe分析(A)及差异菌属分布热图(B)

Chitinophagales:鞘氨醇菌属;Thermoanaerobaculum:嗜热厌氧杆菌属;Thermoanaerobaculaceae:嗜热厌氧杆菌科;Thermoanaerobaculales:嗜热厌氧杆菌属;Thermoanaerobaculia:热厌氧杆菌纲;Bifidobacterium:双歧杆菌属;Bifidobacteriaceae:双歧杆菌科;Bifidobacteriales:双歧杆菌目;Dermabacteraceae:皮杆菌属;Intrasporangiaceae:间胞囊菌科;Chitinophagaceae:噬几丁质菌属;Campylobacter:弯曲菌属;Campylobacteraceae:弯曲菌科;Tolypothrix:单歧藻属;Nostocaceae:普通念珠藻科;Turicibacter:苏黎世杆菌属;Aerococcus:气球菌属;Carnobacterium:肉杆菌属;Trichococcus:毛滴虫属;Carnobacteriaceae:肉杆菌科;Latilactobacillus:广布乳杆菌属;Weissella:魏斯氏菌属;Lactococcus:乳球菌属;Salinicoccus:盐球菌属;Staphylococcus:葡萄球菌属;Monoglobus:单球菌属;Monoglobaceae:单球菌科;Monoglobales:单球菌目;Butyricicoccus:丁酸梭菌属;Butyricicoccaceae:丁酸梭菌科;Desulfofarcimen:脱硫肠状菌属;Desulfotomaculales:脱硫肠状菌目;Desulfotomaculia:脱硫肠状菌纲。

Fig.5 LEfSe analysis of bacterial community (A) and heat map of differential bacterial genera distribution (B) in jejunum of Shaoxing ducks at different caging time points

图6 不同上笼时间点绍兴鸭盲肠菌群LEfSe分析(A)及差异菌属分布热图(B)

Actinomadura:马杜拉放线菌属;Thermomonosporaceae:高温单孢菌科;Streptosporangiales:链孢子囊目;Olsenella:欧陆森氏菌属;Atopobiaceae:奇异菌科;Slackia:沙雷氏菌属;Coriobacteriales:红蝽菌目;Coriobacteriia:红蝽菌纲;Barnesiella:巴氏杆菌属;Alloprevotella:拟普雷沃氏菌属;Prevotella:普雷沃氏菌属;Tannerellaceae:坦纳菌科;Mucispirillum:黏螺菌属;Deferribacteraceae:脱铁杆菌科;Deferribacterales:脱铁杆菌目;Deferribacteres:脱铁杆菌纲;Deferribacterota:脱铁杆菌门;Anaeroplasma:厌氧支原体属;Acholeplasmataceae:无胆甾支原体科;Acholeplasmatales:无胆甾支原体目;Solobacterium:莫雷梭菌属;Enterococcus:肠球菌属;Enterococcaceae:肠球菌科;Latilactobacillus:广布乳杆菌属;Limosilactobacillus:黏液乳杆菌属;Lactobacillaceae:乳杆菌科;Lactococcus:乳球菌属;Streptococcus:链球菌属;Streptococcaceae:链球菌科;Roseburia:罗氏菌属;Syntrophococcus:互营球菌属;Sporobacter:孢杆菌属;Oscillospirales:颤螺菌目;Mogibacterium:莫吉杆菌属;Rhizobiales:根瘤菌目;Dialister:戴阿利斯特菌属;Veillonellaceae:韦荣球菌科;Fusobacterium:梭杆菌属;Fusobacteriaceae:梭杆菌科;Fusobacteriales:梭杆菌目;Fusobacteriia:梭杆菌纲;Fusobacteriota:梭杆菌门。

Fig.6 LEfSe analysis of bacterial community (A) and heat map of differential bacterial genera distribution (B) in cecum of Shaoxing ducks at different caging time points

在空肠中,上笼前的差异菌群主要为单歧藻属(Tolypothrix),上笼后第1天主要为双歧杆菌属(Bifidobacterium),上笼后第3天主要为单球菌属(Monoglobus),上笼后第7天主要为嗜热厌氧杆菌属(Thermoanaerobaculum)、气球菌属(Aerococcus)、肉杆菌属(Carnobacterium)和盐球菌属(Salinicoccus),上笼后第14天主要为弯曲菌属(Campylobacter)、丁酸梭菌属(Butyricicoccus)和脱硫肠状菌属(Desulfofarcimen)(图5-A)。在属水平上,差异菌属弯曲菌属和单球菌属的相对丰度分别在上笼后第1天和第3天显著升高,气球菌属和肉杆菌属的相对丰度在上笼后第7天显著升高,而嗜热厌氧杆菌属和单歧藻属的相对丰度在上笼后第14天显著降低(图5-B)。
在盲肠中,上笼前的差异菌群主要为厌氧支原体属(Anaeroplasma)、链球菌属(Streptococcus)和孢杆菌属(Sporobacter),上笼后第1天主要为普雷沃氏菌属和莫雷梭菌属(Solobacterium),上笼后第3天主要为沙雷氏菌属(Slackia)和莫雷梭菌属,上笼后第7天主要为放线菌属(Actinomadura)、巴氏杆菌属(Barnesiella)和肠球菌属(Enterococcus),上笼后第14天主要为黏螺菌属(Mucispirillum)、广布乳杆菌属(Latilactobacillus)、乳球菌属(Lactococcus)和黏液乳杆菌属(Limosilactobacillus)(图6-A)。在属水平上,差异菌属沙雷氏菌属、莫雷梭菌属和肠球菌属的相对丰度在上笼后第1天和第3天显著升高,链球菌属、孢杆菌属和厌氧支原体属的相对丰度在上笼后第7天显著降低,而广布乳杆菌属和乳球菌属的相对丰度在上笼后第14天显著升高(图6-B)。

2.6 上笼应激对绍兴鸭肠道内容物中SCFA含量的影响

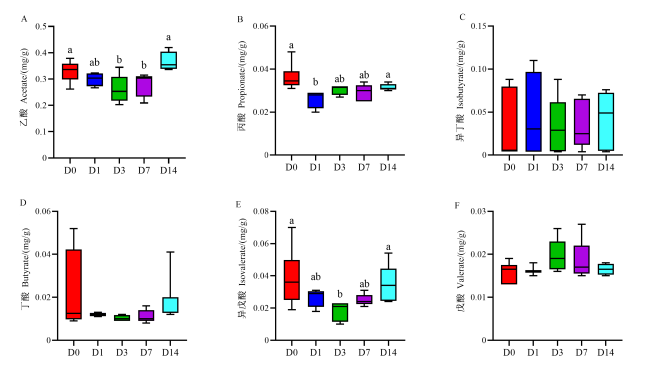
图7所示,上笼后第1天空肠内容物中丙酸含量以及上笼后第3天乙酸、丁酸、异丁酸和异戊酸含量达到最低,其中,上笼后第1天丙酸含量以及上笼后第3天乙酸和异戊酸含量与上笼前相比显著降低(P<0.05);与上笼后第1天相比,上笼后第14天空肠内容物中丙酸含量显著升高(P<0.05);与上笼后第3天相比,上笼后第14天空肠内容物中乙酸和异戊酸含量显著升高(P<0.05);上笼前后空肠内容物中异丁酸、丁酸和戊酸含量无显著变化(P>0.05)。
图7 不同上笼时间点绍兴鸭空肠内容物中SCFA含量

Fig.7 SCFA contents in jejunal contents of Shaoxing ducks at different caging time points

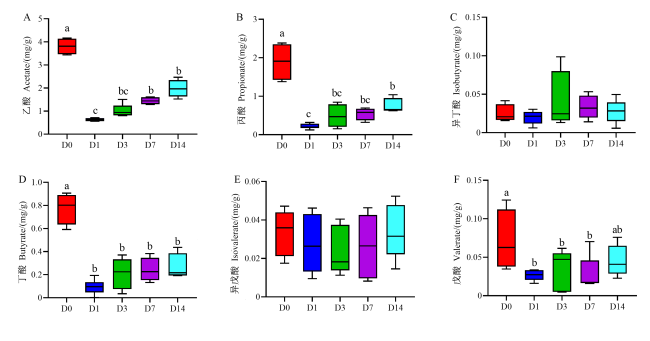
图8所示,与上笼前相比,上笼后第1天、第3天、第7天盲肠内容物中乙酸、丙酸、丁酸和戊酸含量均显著降低(P<0.05),且均以上笼后第1天为最低;与上笼后第1天相比,上笼后第14天盲肠内容物中乙酸和丙酸含量显著升高(P<0.05);上笼前后盲肠内容物中异丁酸和异戊酸含量无显著变化(P>0.05)。
图8 不同上笼时间点绍兴鸭盲肠内容物中SCFA含量

Fig.8 SCFA contents in cecal contents of Shaoxing ducks at different caging time points

3 讨论

笼养模式作为一种集约化的养殖方式,使蛋鸭养殖过程中土地利用率和生产效率大大提升。然而,蛋鸭生性敏感,由地面平养转为笼养过程中会出现应激。罗祥[11]研究发现,蛋鸭在上笼初期极易产生应激,导致其产蛋性能和体重下降。此外,郭盈盈[12]研究发现,笼养方式和应激会显著降低蛋禽的蛋品质指标(蛋壳厚度和哈氏单位)。本试验结果也发现,绍兴鸭在上笼后短期内产蛋率和体重以及鸭蛋蛋壳强度和哈氏单位均明显降低。Alpha多样性指数可反映肠道菌群的多样性和丰富度,包括Chao1和Shannon指数等评价指标。其中,Chao1指数用于衡量物种丰富度;Shannon指数用于衡量物种多样性[13]。本试验发现,绍兴鸭在相同饲粮饲喂模式下,上笼前后并不影响空肠和盲肠菌群的多样性和丰富度。宋倩倩[14]对肉鸭不同肠段的菌群测序后发现,空肠菌群在门水平上以厚壁菌门、变形菌门和拟杆菌门为主,在属水平上以乳杆菌属、梭菌属、链球菌属和肠球菌属为主。Zhu等[15]对蛋鸭盲肠菌群测序后发现,拟杆菌门、厚壁菌门、变形菌门和放线菌门为盲肠菌群的优势菌门。本试验同样发现了类似的结果,即在绍兴鸭上笼前后,空肠内的主要优势菌门为厚壁菌门、拟杆菌门、变形菌门,优势菌属为利氏乳杆菌属和螺杆菌属,而盲肠内的主要优势菌门则是厚壁菌门、拟杆菌门和放线菌门,优势菌属为拟杆菌属、粪杆菌属和普雷沃氏菌属。
应激会导致厚壁菌门相对丰度增加(主要归因于梭菌属异常增殖),而拟杆菌门相对丰度降低,其中以拟杆菌属相对丰度降低最为显著[16]。这一变化生理意义在于厚壁菌门包含多种条件致病菌,其过度增殖可加剧肠道炎症;而拟杆菌属则是SCFA的主要生产者,其减少将直接削弱黏膜能量供应。本试验发现,绍兴鸭上笼后第1天和第3天,空肠菌群中拟杆菌门和鼠杆菌属的相对丰度逐渐升高,而弯曲菌门和螺杆菌属的相对丰度逐渐降低;盲肠菌群中厚壁菌门和放线菌门以及粪杆菌属和普雷沃氏菌属的相对丰度逐渐升高,而变形菌门和拟杆菌属的相对丰度逐渐降低,上笼后第14天逐渐恢复至上笼前水平。放线菌门是家禽肠道中常见的细菌门之一,家禽染病后其肠道菌群中放线菌门的相对丰度会显著升高[17]。拟杆菌属有助于分解食物并产生身体所需的营养物质和能量,参与人体结肠中许多重要的代谢活动,包括碳水化合物的发酵、含氮物质的利用以及胆汁酸和其他类固醇的生物转化[18-19]。以上结果提示,蛋鸭在上笼应激后,肠道中尤其是盲肠中属于厚壁菌门的致病菌以及放线菌门的相对丰度会升高,而对家禽肠道发挥有益作用的细菌如拟杆菌属的相对丰度会降低,但在上笼后第14天肠道菌群结构逐渐恢复至上笼前状态。应激状态下动物肠腔内环境pH发生改变[20]、菌群组成结构改变[21],而不同菌群对pH的耐受范围存在差异,如对肠道有益的拟杆菌偏好酸性环境[22],而一些放线菌对pH耐受性较强[23],这种微环境的改变直接导致菌群竞争性排斥关系重构,最终引发菌群组成变化。
一些具有致病性肠球菌属细菌(如粪肠球菌)可通过产生白细胞趋化因子和溶血素等毒力因子,破坏肠上皮细胞完整性,易位至其他组织部位引发动物机体的炎性反应和组织病变[24-25],为条件致病菌提供入侵通道。沙雷氏菌属作为条件致病菌,不仅会引发出血性肠道炎症,还可通过菌血症导致全身感染[26]。弯曲菌属属于变形菌门,其对家禽肠道健康会产生明显的负面作用[27]。另外,广布乳杆菌属是厚壁菌门的一种,是潜在的有益菌,参与多种碳水化合物的代谢[28]。本试验进一步结合LEfSe分析的结果发现,空肠中的差异菌属弯曲菌属和单球菌属的相对丰度分别在上笼后第1天和第3天显著升高,盲肠中的差异菌属沙雷氏菌属和肠球菌属的相对丰度分别在上笼后第3天和第7天显著升高;上笼后第14天,盲肠中广布乳杆菌属和黏液乳杆菌属的相对丰度显著升高。上述结果进一步提示,在上笼早期,绍兴鸭肠道中弯曲菌属、肠球菌属和沙雷氏菌属等有害菌具有明显的定植优势。应激引发的氧化损伤和炎症反应会破坏肠上皮细胞紧密连接,导致肠道通透性增加[29],从而促进了弯曲菌属、肠球菌属和沙雷氏菌属等有害菌的定植。而肠道炎症损伤和黏液层的破坏会进一步抑制拟杆菌属等有益菌的生长[30],上笼后第14天,由于菌群生态位的作用,一些具有益生作用的乳杆菌等恢复了定植优势。
肠道微生物对碳水化合物进行发酵,产生SCFA,其中主要为乙酸、丙酸和丁酸。这些SCFA具备多种生理功能,如促进营养物质的吸收、调控肠道内的pH、抑制肠道炎症以及调节免疫应答等[31]。厚壁菌门所属细菌可产生更多的丁酸[32],而丁酸在调节能量代谢方面发挥着重要作用[33]。拟杆菌门所属细菌主要生成乙酸和丙酸,其中乙酸可通过改善胰岛素的抵抗调节宿主脂肪代谢[34],而丙酸则可通过多个信号通路影响胰岛素敏感性、脂肪酸氧化以及葡萄糖稳态,进而影响宿主能量代谢功能[35]。当机体处于炎症状态下,肠道微生物SCFA产量降低,微生物代谢稳态失衡[36]。本试验发现,绍兴鸭在上笼初期(第1天和第3天)空肠内容物中乙酸和丙酸含量显著降低,盲肠内容物中乙酸、丙酸和丁酸含量均显著降低;与上笼后第1天相比,上笼后第14天空肠和盲肠内容物中乙酸和丙酸含量则又逐渐回升。以上结果提示,蛋鸭在应激状态下肠道微生物产SCFA能力减弱,能量代谢能力减弱,而在上笼后第14天微生物代谢能力逐渐恢复,产SCFA能力有所回升。综合分析蛋鸭产蛋率和蛋品质及微生物数据表明,应激导致肠道菌群失调,引发的炎症反应会破坏肠上皮细胞紧密连接,促进致病菌定植,导致肠道通透性增加[21,29];同时微生物产SCFA的减少,使得微生物介导的碳水化合物发酵功能减弱[36],影响能量代谢和重分配,进而间接导致产蛋性能下降。此外,蛋鸭上笼后会激活下丘脑-垂体-卵巢轴,影响雌二醇、促性腺激素释放激素和黄体生成素等生殖激素的分泌与释放,进而影响蛋鸭的产蛋节律和卵泡发育[37],最终导致产蛋率和蛋品质下降。同时,研究表明应激诱导的动物肠道微生物结构和组成紊乱可能加剧宿主氧化损伤[38];SCFA的产生减少会削弱肠道屏障功能和宿主抗氧化能力[39]。因此,后续亟需基于多组学技术探究上笼前后蛋鸭肠道微生物(功能)和宿主互作(下丘脑-垂体-卵巢轴参与肠道与宿主繁殖性能的调控)影响产蛋性能和蛋品质的分子机制。

4 结论

上笼应激短期内会降低绍兴鸭的产蛋率和蛋品质,同时也会导致肠道菌群组成和结构的紊乱,突出表现为有害菌定植能力增加以及微生物产SCFA能力降低。但是,在上笼14 d后,绍兴鸭产蛋率和蛋品质以及空肠和盲肠菌群结构与产SCFA能力逐渐恢复至上笼前水平。
[1]
PROSSER D J, PALM E C, TAKEKAWA J Y, et al. Movement analysis of free-grazing domestic ducks in Poyang Lake,China:a disease connection[J]. International Journal of Geographical Information Science, 2016, 30(5):869-880.

DOI

[2]
朱文奇, 夏新山, 韩祥林, 等. 笼养和平养蛋鸭生产性能的比较[J]. 中国家禽, 2015, 37(2):66-67.

ZHU W Q, XIA X S, HAN X L, et al. Comparison of production performance between cage-reared and floor-reared laying ducks[J]. China Poultry, 2015, 37(2):66-67. (in Chinese)

[3]
ZHANG Y, GU T T, TIAN Y, et al. Effects of cage and floor rearing system on the factors of antioxidant defense and inflammatory injury in laying ducks[J]. BMC Genetics, 2019, 20(1):103.

DOI PMID

[4]
BECATTINI S, TAUR Y, PAMER E G. Antibiotic-induced changes in the intestinal microbiota and disease[J]. Trends in Molecular Medicine, 2016, 22(6):458-478.

DOI PMID

[5]
SÁNCHEZ B, DELGADO S, BLANCO-MÍGUEZ A, et al. Probiotics,gut microbiota,and their influence on host health and disease[J]. Molecular Nutrition & Food Research, 2017, 61(1):1600240.

[6]
LYU W, LIU X T, LU L Z, et al. Cecal microbiota modulates fat deposition in muscovy ducks[J]. Frontiers in Veterinary Science, 2021, 8:609348.

DOI

[7]
TOFANI G S S, LEIGH S J, GHEORGHE C E, et al. Gut microbiota regulates stress responsivity via the circadian system[J]. Cell Metabolism, 2025, 37(1):138-153.e5.

DOI PMID

[8]
刘香杉. 抗应激剂对上笼应激蛋鸭肝脏和十二指肠损伤的影响[D].硕士学位论文. 哈尔滨: 东北农业大学, 2019.

LIU X S. Effects of anti-stress agents on liver and duodenum injury in egg-ducks[D].Master’s Thesis. Harbin: Northeast Agricultural University, 2019. (in Chinese)

[9]
顾天天, 田勇, 周玮, 等. 上笼应激对绍兴鸭十二指肠组织结构、抗氧化能力及基因mRNA表达量的影响[J]. 浙江大学学报(农业与生命科学版), 2020, 46(2):234-242.

GU T T, TIAN Y, ZHOU W, et al. Effects of caged stress on the duodenal tissue structure,antioxidant capacity and gene mRNA expression level of Shaoxing duck[J]. Journal of Zhejiang University (Agriculture and Life Sciences Edition), 2020, 46(2):234-242. (in Chinese)

[10]
陈海燕, 卢立志, 傅衍, 等. 影响绍兴鸭产蛋性能若干因素的研究[J]. 上海交通大学学报(农业科学版), 2005, 23(1):63-68.

CHEN H Y, LU L Z, FU Y, et al. Study on factors affecting laying performance of Shaoxing duck[J]. Journal of Shanghai Jiaotong University (Agricultural Science Edition), 2005, 23(1):63-68. (in Chinese)

[11]
罗祥. 上笼应激诱导的蛋鸭小肠miRNA差异表达分析及其功能验证[D].硕士学位论文. 绵阳: 西南科技大学, 2023.

LUO X. Differential expression analysis and functional verification of miRNA in the small intestine of laying ducks induced by caged stress[D].Master’s Thesis. Mianyang: Southwest University of Science and Technology, 2023. (in Chinese)

[12]
郭盈盈. 笼养方式和应激对蛋鸡生产性能和福利状态的影响[D].硕士学位论文. 泰安: 山东农业大学, 2010.

GUO Y Y. Effects of cage systems and stress on the performances and welfare of laying hens[D].Master’s Thesis. Tai’an: Shandong Agricultural University, 2010. (in Chinese)

[13]
GRICE E A, KONG H H, CONLAN S, et al. Topographical and temporal diversity of the human skin microbiome[J]. Science, 2009, 324(5931):1190-1192.

DOI PMID

[14]
宋倩倩. 肠道微生物与宿主基因互作对肉鸭腹脂沉积的遗传机制研究[D].博士学位论文. 扬州: 扬州大学, 2021.

SONG Q Q. Metagenomics and transeriptomics revea the genetic mechanism of abdominal fat deposition in duck[D].Ph.D.Thesis. Yangzhou: Yangzhou University, 2021. (in Chinese)

[15]
ZHU C H, XU W J, TAO Z Y, et al. Effects of rearing conditions and sex on cecal microbiota in ducks[J]. Frontiers in Microbiology, 2020, 11:565367.

DOI

[16]
宋立锦, 张晋东, 段丽萍. 应激对肠道菌群的影响及机制研究进展[J]. 生理学报, 2020, 72(3):361-370.

SONG L J, ZHANG J D, DUAN L P. Progresses on the effects and mechanisms of stress on gut microbiota[J]. Acta Physiologica Sinica, 2020, 72(3):361-370. (in Chinese)

[17]
KONG J, WU X H, LIAO L Q, et al. Duck plague virus infection alter the microbiota composition and intestinal functional activity in Muscovy ducks[J]. Poultry Science, 2023, 102(3):102365.

DOI

[18]
LE H H, LEE M T, BESLER K R, et al. Characterization of interactions of dietary cholesterol with the murine and human gut microbiome[J]. Nature Microbiology, 2022, 7(9):1390-1403.

DOI PMID

[19]
TAMANA S K, TUN H M, KONYA T, et al. Bacteroides-dominant gut microbiome of late infancy is associated with enhanced neurodevelopment[J]. Gut Microbes, 2021, 13(1):1930875.

DOI

[20]
MISHRA M, MARTZ F A, STANLEY R W, et al. Effect of diet and ambient temperature-humidity on ruminal pH,oxidation reduction potential,ammonia and lactic acid in lactating cows[J]. Journal of Animal Science, 1970, 30(6):1023-1028.

DOI

[21]
HOWARD C D, MISIC A M, et al. Stress during pregnancy alters temporal and spatial dynamics of the maternal and offspring microbiome in a sex-specific manner[J]. Scientific Reports, 2017, 7:44182.

DOI PMID

[22]
BITEW D, DAMTEW B, TESFAYE A, et al. Isolation of yeast from some Ethiopian traditional fermented beverages and in vitro evaluation for probiotic traits[J]. Heliyon, 2024, 10(23):e40520.

DOI

[23]
SHU W S, HUANG L N. Microbial diversity in extreme environments[J]. Nature Reviews Microbiology, 2022, 20(4):219-235.

DOI

[24]
田媛媛, 贾雄飞. 肠球菌的有益性和致病性[J]. 检验医学, 2023, 38(11):1101-1105.

DOI

TIAN Y Y, JIA X F. Advantages and pathogenicity of Enterococci[J]. Laboratory Medicine, 2023, 38(11):1101-1105. (in Chinese)

[25]
董国军, 高原, 马万欣. 禽类粪肠球菌病研究进展[J]. 内蒙古民族大学学报(自然科学版), 2012, 27(2):207-209.

DONG G J, GAO Y, MA W X. Study progress on Enterococcus faecalis[J]. Journal of Inner Mongolia University for Nationalities (Natural Science Edition), 2012, 27(2):207-209. (in Chinese)

[26]
徐海军, 张磊, 爨淑楠, 等. 山羊肺源肠外致病型大肠杆菌和黏质沙雷氏菌混合感染的病原分离鉴定、毒力因子基因检测和耐药性分析[J]. 中国兽医杂志, 2024, 60(2):54-60.

XU H J, ZHANG L, CUAN S N, et al. Pathogen isolation,identification,virulence factor gene detection,and drug resistance analysis of mixed infection with extraintestinal pathogenic Escherichia coli and Serratia marcescens in goats[J]. Chinese Journal of Veterinary Medicine, 2024, 60(2):54-60. (in Chinese)

[27]
ROKOSZ N, RASTAWICKI W, WOŁKOWICZ T. Microbiological diagnosis of infections caused by Campylobacter jejuni and Campylobacter coli in humans[J]. Postepy Higieny i Medycyny Doświadczalnej, 2014, 68(1):48-56.

[28]
LIU X M, MAO B Y, GU J Y, et al. Blautia—a new functional genus with potential probiotic properties?[J]. Gut Microbes, 2021, 13(1):1875796.

DOI

[29]
刘洁, 熊正国, 顿耀艳. 氧化应激对肠屏障功能障碍发病的影响[J]. 生命的化学, 2020, 40(2):166-172.

LIU J, XIONG Z G, DUN Y Y. Effects of oxidative stress in the pathogenesis of intestinal mucosal barrier dysfunction[J]. Chemistry of Life, 2020, 40(2):166-172. (in Chinese)

[30]
DE VOS W M, TILG H, VAN HUL M, et al. Gut microbiome and health:mechanistic insights[J]. Gut, 2022, 71(5):1020-1032.

DOI

[31]
陆松翠, 郑楠, 王加启, 等. 短链脂肪酸的生物学功能研究进展[J]. 动物营养学报, 2024, 36(6):3514-3524.

DOI

LU S C, ZHENG N, WANG J Q, et al. Research progress on biological function of short-chain fatty acids[J]. Chinese Journal of Animal Nutrition, 2024, 36(6):3514-3524. (in Chinese)

DOI

[32]
许真源, 李小雅, 许雅青, 等. 产丁酸菌调节肠道微生态及中药的干预作用研究进展[J]. 中国实验方剂学杂志, 2020, 26(6):226-233.

XU Z Y, LI X Y, XU Y Q, et al. Research progress of butyrate-producing bacteria in regulating intestinal microecology and interventional effect of Chinese herbal medicine[J]. Chinese Journal of Experimental Traditional Medical Formulae, 2020, 26(6):226-233. (in Chinese)

[33]
ZHANG L, LIU C D, JIANG Q Y, et al. Butyrate in energy metabolism:there is still more to learn[J]. Trends in Endocrinology & Metabolism, 2021, 32(3):159-169.

[34]
XIAO S W, JIANG S, QIAN D W, et al. Modulation of microbially derived short-chain fatty acids on intestinal homeostasis,metabolism,and neuropsychiatric disorder[J]. Applied Microbiology and Biotechnology, 2020, 104(2):589-601.

DOI

[35]
郭梅芳, 狄嘉欣, 谭周进, 等. 肠道丙酸的研究进展[J]. 中国微生态学杂志, 2025, 37(7):857-862,868.

GUO M F, DI J X, TAN Z J, et al. Intestinal propionic acid:progress in research[J]. Chinese Journal of Microecology, 2025, 37(7):857-862,868. (in Chinese)

[36]
HAYS K E, PFAFFINGER J M, RYZNAR R. The interplay between gut microbiota,short-chain fatty acids,and implications for host health and disease[J]. Gut Microbes, 2024, 16(1):2393270.

DOI

[37]
饶琳洁, 张危红, 魏岳, 等. 绍兴鸭血清生殖激素及下丘脑开产相关基因的鉴定分析[J]. 南方农业学报, 2023, 54(3):755-763.

RAO L J, ZHANG W H, WEI Y, et al. Identification and analysis of serum reproductive hormones and genes related to laying in hypothalamus of Shaoxing ducks[J]. Journal of Southern Agriculture, 2023, 54(3):755-763. (in Chinese)

[38]
TANG Z N, YANG Y, WU Z L, et al. Heat stress-induced intestinal barrier impairment:current insights into the aspects of oxidative stress and endoplasmic reticulum stress[J]. Journal of Agricultural and Food Chemistry, 2023, 71(14):5438-5449.

DOI

[39]
崇洁, 马继登, 张进威, 等. SCFAs对肠道免疫调控的研究进展[J]. 生命科学, 2023, 35(5):663-670.

CHONG J, MA J D, ZHANG J W, et al. Advances in the intestinal immune regulation by SCFAs[J]. Chinese Bulletin of Life Sciences, 2023, 35(5):663-670. (in Chinese)

Outlines

/