RESEARCH PAPER

Effects of Different Dietary Slow-Release Urea Addition Ratios on in Vitro Rumen Fermentation Characteristics and Bacterial Community Structure of Tan Sheep

  • LI Qingmin , 1 ,
  • WANG Jin 1, 2 ,
  • LI Mai 1 ,
  • LIU Weiguo 3 ,
  • TIAN Daijun 4 ,
  • ZHOU Yuxiang , 1, *
Expand
  • 1 College of Animal Science and Technology, Ningxia University, Yinchuan 750021, China
  • 2 Institute of Animal Science, Ningxia Academy of Agriculture and Forestry Sciences, Yinchuan 750004, China
  • 3 Ningxia Zhongmu Yilin Livestock Co., Ltd., Yinchuan 750001, China
  • 4 Ningxia Autonomous Region Animal Husbandry Station, Yinchuan 750002, China
* professor, E-mail:

Received date: 2026-01-20

  Online published: 2026-09-12

Abstract

This study aimed to investigate the effects of different dietary slow-release urea (SRU) addition ratios on in vitro rumen fermentation characteristics and bacterial community structure of Tan sheep. A single-factor experimental design was adopted. Six groups were set by adding 0 (control group), 0.5%, 1.0%, 1.5%, 2.0% and 2.5% SRU (dry matter basis) to the basal diet as fermentation substrates, with 3 replicates per group, and the in vitro incubation lasted for 48 h. The results showed as follows: 1) at 48 h of incubation, the cumulative gas production and theoretical maximum gas production in the 1.0% group, 1.5% group, 2.0% group and 2.5% group were significantly higher than those in the control group and 0.5% group (P<0.05). 2) The 1.0% group exhibited the highest dry matter degradability, crude protein degradability, neutral detergent fiber degradability and acid detergent fiber degradability among all groups. 3) No significant differences were observed in fermentation fluid pH, ammonia nitrogen, microbial protein and volatile fatty acid contents among all groups (P>0.05). 4) Rumen bacterial community analysis revealed that the Sobs index, Simpson index, Shannon index and Chao index in the 1.0% group, 1.5% group, 2.0% group and 2.5% group were significantly higher than those in the control group (P<0.05). The relative abundances of Bacteroidota, Xylanibacter and Rikenellaceae_RC9_gut_group in the 1.0% group, 1.5% group, 2.0% group and 2.5% group were significantly higher than those in the control group (P<0.05), while the relative abundance of Firmicutes in the 1.5% group, 2.0% group and 2.5% group was significantly lower than that in the control group (P<0.05). 5) Functional prediction of rumen microbiota indicated that the abundances of amino acid metabolism and carbohydrate metabolism pathways in the 1.0% group were significantly higher than those in the control group, 2.0% group and 2.5% group (P<0.05). In conclusion, the appropriate dietary SRU addition ratio of Tan sheep is 1.0%. This addition level can optimize the in vitro rumen bacterial community structure and potential metabolic pathways, and promote dietary nutrient degradation.

Cite this article

LI Qingmin , WANG Jin , LI Mai , LIU Weiguo , TIAN Daijun , ZHOU Yuxiang . Effects of Different Dietary Slow-Release Urea Addition Ratios on in Vitro Rumen Fermentation Characteristics and Bacterial Community Structure of Tan Sheep[J]. Chinese Journal of Animal Nutrition, 2026 , 38(9) : 7063 -7077 . DOI: 10.12418/CJAN2026.563

随着我国畜牧业的规模化发展,反刍动物养殖领域面临着蛋白质资源紧缺、成本上升及可持续发展压力加大等挑战[1]。豆粕等优质蛋白质原料价格波动大,且进口依赖度较高,进一步推高了养殖成本。因此,在保障生产性能和产品品质的前提下,开发高效安全的蛋白质替代策略、降低真蛋白质用量,已成为当前研究重点[2]。非蛋白氮(NPN)是反刍动物特有的可利用氮源形式。尿素作为应用最广泛的NPN来源,具有氮含量高、成本低廉及来源稳定等优势[3]。在瘤胃中,尿素可被微生物脲酶迅速水解为氨,并进一步合成微生物蛋白(MCP)供宿主利用。但常规尿素的水解速率远高于瘤胃微生物对氨的同化速率,易导致氨氮在瘤胃内过度积累,降低氮利用效率,甚至引发氮代谢紊乱[4]。因此,实现氮源释放速率与微生物碳源利用之间的动态同步,是提高瘤胃氮素利用效率和发酵稳定性的关键。缓释尿素(slow-release urea,SRU)通过包被或控释技术调控尿素在瘤胃中的释放速度,使氨氮供应更加持续和稳定,有助于提高MCP合成效率,降低氨中毒风险,同时促进纤维分解菌生长,提高饲粮消化率[5-6]。目前,有关SRU的研究多集中于奶牛和肉牛的生产性能评价,而对绵羊尤其是肉用品种的系统研究相对较少,且SRU对瘤胃微生态结构与功能代谢的调控机制尚缺乏深入探讨。滩羊作为我国优良地方肉羊品种,以肉质细嫩、风味独特和脂肪分布均匀而著称[7]。在蛋白质饲料成本持续上升的背景下,如何在滩羊育肥阶段保障肉品质稳定,同时提高氮利用效率、降低真蛋白质依赖度,是实现产业可持续发展的关键问题。因此,本研究拟采用体外瘤胃发酵模型,系统评估饲粮添加不同比例SRU对滩羊瘤胃发酵特性、养分降解率及菌群结构与功能代谢通路的影响,旨在明确SRU对瘤胃微生态调控的作用规律,并在维持瘤胃稳态的前提下筛选适宜的添加比例,为后续开展滩羊生产性能与肉品质研究提供理论基础和数据支撑。

1 材料与方法

1.1 试验材料

试验所用SRU为包被型产品,以尿素为核心原料,棕榈油、羧甲基纤维素钠为载体及包被材料,其中尿素含量≥87.9%,氮含量≥41.0%,粗蛋白质当量≥256.0%,水分含量≤2.0%。

1.2 试验设计

本试验方案已获得宁夏大学科技伦理审查委员会的伦理许可,伦理批准编号:NXU-A-2025-278。试验在宁夏中牧亿林畜产股份有限公司进行,选择6只体况健康、体重[(25.00±1.25) kg]相近的滩羊作为瘤胃液供体。供体羊饲粮参照《肉羊营养需要量》(NY/T 816—2021)配制,精粗比为6∶4,其组成及营养水平见表1中基础饲粮。每日07:00、18:00各饲喂1次,羊只自由采食和饮水。
表1 发酵底物组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of fermentation substrates (DM basis)

项目
Items
基础饲粮
Basal diet
缓释尿素添加比例SRU addition ratios/%
0.5 1.0 1.5 2.0 2.5
原料Ingredients
苜蓿干草Alfalfa hay 20.0 20.0 20.0 20.0 20.0 20.0
玉米青贮Corn silage 10.0 10.0 10.0 10.0 10.0 10.0
玉米秸秆Corn stalk 10.0 10.0 10.0 10.0 10.0 10.0
豆粕Soybean meal 12.0 10.0 7.0 4.0 1.0
麸皮Wheat bran 15.0 15.0 15.0 15.0 12.0 6.0
玉米Corn 28.0 29.5 32.0 34.5 40.0 46.5
缓释尿素SRU 0.5 1.0 1.5 2.0 2.5
预混料Premix1) 3.0 3.0 3.0 3.0 3.0 3.0
碳酸氢钠NaHCO3 1.0 1.0 1.0 1.0 1.0 1.0
食盐NaCl 1.0 1.0 1.0 1.0 1.0 1.0
合计Total 100.0 100.0 100.0 100.0 100.0 100.0
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 9.50 9.45 9.40 9.36 9.37 9.45
粗蛋白质CP 15.23 15.72 15.84 15.96 15.91 15.99
钙Ca 0.45 0.45 0.44 0.44 0.43 0.42
磷P 0.31 0.30 0.29 0.28 0.26 0.23
中性洗涤纤维NDF 34.73 35.98 37.82 40.58 34.28 35.68
酸性洗涤纤维ADF 16.23 16.62 16.00 16.14 17.08 15.62

1)每千克预混料含有 One kilogram of the premix contained the following:VA 300 000 IU,VD 35 000 IU,VE 2 000 IU,Cu 200 mg,Fe 1 800 mg,Zn 1 100 mg,Mn 750 mg,I 6 mg,Se 15 mg,NaCl 50 g。

2)代谢能为参照NY/T 816—2021所得计算值,其余均为实测值。ME was a calculated value according to NY/T 816—2021, while the others were measured values.

采用单因素试验设计,共设置6个组,在基础饲粮中分别添加0(对照组)、0.5%、1.0%、1.5%、2.0%和2.5%的SRU(干物质基础)作为发酵底物,每组3个重复。各组发酵底物组成及营养水平见表1

1.3 体外瘤胃发酵试验

每日晨饲前采用口腔插管法采集供体羊瘤胃液,装入预热至39 ℃且充满二氧化碳(CO2)的保温瓶中,混匀后经4层纱布过滤。参照Menke等[8]的方法配制人工唾液,于39 ℃水浴保温并持续通入CO2,将人工唾液与瘤胃液按体积比2∶1混匀,制得体外瘤胃发酵培养液。
参照沙志行等[9]的方法开展体外瘤胃发酵试验。精确称取9 g各组发酵底物样品,装入1 000 mL发酵袋(杭州安思科技有限公司);用注射器吸取300 mL瘤胃发酵培养液注入袋内,密封并排尽空气后,置于39 ℃恒温水浴摇床(85 r/min)连续培养48 h。

1.4 体外产气量、产气参数及瘤胃发酵参数测定

分别在培养2、4、6、8、10、12、24、48 h时,采用注射器测定并记录各组发酵体系的累积产气量。参照Ørskov等[10]的产气动力学模型计算产气参数:
GP=a+b×(1-e-ct)。
式中:GP表示t时刻的累积产气量(mL);a表示快速降解部分产气量(mL);b表示慢速降解部分产气量(mL);c表示产气速率(%/h);a+b表示理论最大产气量(mL)。
各组样品发酵48 h后,将发酵袋置于冰水浴终止发酵,测定发酵液pH;采用比色法[11]测定发酵液氨态氮(NH3-N)含量;采用考马斯亮蓝法[12]测定发酵液MCP含量;使用日本岛津GC-2030气相色谱仪测定发酵液乙酸、丙酸、丁酸等挥发性脂肪酸(VFA)含量。

1.5 体外养分降解率测定

发酵底物干物质、粗蛋白质、钙、磷含量分别参照GB/T 6435—2014、GB/T 6432—2018、GB/T 6436—2018、GB/T 6437—2018的方法测定,中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)含量参照Van Soest等[13]的方法测定。各组样品发酵48 h后,将发酵袋置于冰水浴终止发酵,过滤发酵底物,并用蒸馏水充分冲洗残渣;残渣于65 ℃烘干,测定其干物质、粗蛋白质、NDF、ADF含量,据此计算干物质降解率(DMD)、粗蛋白质降解率(CPD)、中性洗涤纤维降解率(NDFD)与酸性洗涤纤维降解率(ADFD),计算公式如下:
某养分降解率(%)=100×(发酵前底物中该养分含量-发酵后残渣中该养分含量)/发酵前底物中该养分含量。

1.6 体外瘤胃菌群结构测定

将发酵48 h后的发酵液样品送至广州基迪奥生物科技有限公司进行细菌16S rDNA扩增子测序。提取样品总DNA,选用引物341F(5'-ACTCCTACGGGAGGCAGCAG-3')、806R(5'-GGACTACHVGGGTWTCTAAT-3')扩增16S rDNA基因V3~V4可变区;扩增产物于Illumina MiSeq PE250平台测序,在基迪奥生物信息云平台上对菌群多样性及组成结构进行可视化分析。

1.7 数据处理与统计分析

数据经Excel 2019整理后,采用SAS 8.2软件进行统计分析。瘤胃菌群多样性指数、门和属水平菌群相对丰度的组间差异采用非参数检验;其余指标采用单因素方差分析,并用Duncan氏法进行组间多重比较。结果以平均值和均值标准误(SEM)表示,P<0.05为差异显著。采用Spearman相关性分析评估瘤胃菌群与体外养分降解率之间的相关性,并采用R(v4.1.0)软件绘制相关性热图。

2 结果与分析

2.1 SRU对滩羊体外瘤胃发酵产气量和产气参数的影响

表2可知,随着发酵时间的延长,各组累积产气量持续上升。饲粮添加不同比例SRU对发酵2、4、6、8、10、12、24、48 h累积产气量均有显著影响(P<0.05)。与对照组和0.5%组相比,1.0%组、1.5%组、2.0%组和2.5%组发酵48 h累积产气量和理论最大产气量显著升高(P<0.05);各组间产气速率无显著差异(P>0.05)。
表2 SRU对滩羊体外瘤胃发酵产气量和产气参数的影响

Table 2 Effects of SRU on in vitro rumen fermentation gas production and gas production parameters of Tan sheep

项目
Items
对照组
Control
group
0.5%组
0.5%
group
1.0%组
1.0%
group
1.5%组
1.5%
group
2.0%组
2.0%
group
2.5%组
2.5%
group
SEM P
P-value
累积产气量Cumulative gas production/mL
2 h 425.00b 570.00a 377.50b 352.50b 355.00b 370.00b 24.723 0.046
4 h 1 020.00a 1 015.00a 740.00b 697.50b 707.50b 660.00b 44.221 0.001
6 h 1 200.00a 1 205.00a 1 155.00ab 1 062.50b 1 067.50b 1 040.00b 20.534 0.006
8 h 1 237.50b 1 280.00ab 1 440.00a 1 402.50ab 1 417.50a 1 400.00ab 23.779 0.020
10 h 1 332.50b 1 412.50b 1 615.00a 1 607.50a 1 637.50a 1 590.00a 34.684 0.002
12 h 1 415.00b 1 495.00b 1 745.00a 1 742.50a 1 785.00a 1 735.00a 42.309 0.001
24 h 1 610.00b 1 720.00b 2 062.50a 2 080.00a 2 120.00a 2 095.00a 59.557 0.002
48 h 1 750.00b 1 867.50b 2 285.00a 2 315.00a 2 250.00a 2 230.00a 64.896 0.001
理论最大产气量
a+b/mL
1 672.18b 1 814.80b 2 271.40a 2 293.95a 2 233.45a 2 199.55a 71.179 <0.001
产气速率c/(%/h) 0.13 0.14 0.14 0.13 0.13 0.15 0.004 0.654

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same lowercase letter superscripts mean no significant difference (P>0.05), while with different lowercase letter superscripts mean significant difference (P<0.05). The same as below.

2.2 SRU对滩羊体外养分降解率的影响

表3可知,1.0%组DMD显著高于对照组、1.5%组、2.0%组和2.5%组(P<0.05),CPD显著高于对照组、0.5%组和2.5%组(P<0.05);1.0%组、1.5%组和2.0%组NDFD显著高于0.5%组和2.5%组(P<0.05),与对照组无显著差异(P>0.05);1.0%组和1.5%组ADFD显著高于2.0%组和2.5%组(P<0.05),与对照组和0.5%组无显著差异(P>0.05)。
表3 SRU对滩羊体外养分降解率的影响

Table 3 Effects of SRU on in vitro nutrient degradability of Tan sheep

项目
Items
对照组
Control
group
0.5%组
0.5%
group
1.0%组
1.0%
group
1.5%组
1.5%
group
2.0%组
2.0%
group
2.5%组
2.5%
group
SEM P
P-value
干物质降解率DMD 41.04c 67.92ab 74.85a 67.18b 61.78b 59.42b 0.031 0.001
粗蛋白质降解率CPD 44.70c 51.20b 69.94a 66.99ab 65.64ab 62.15b 2.829 0.008
中性洗涤纤维降解率
NDFD
42.90ab 36.18b 45.09a 43.46a 43.36a 36.62b 1.079 0.013
酸性洗涤纤维降解率
ADFD
30.04ab 30.55ab 36.88a 35.90a 27.34b 26.32b 1.127 0.003

2.3 SRU对滩羊体外瘤胃发酵参数的影响

表4可知,各组间发酵液pH及NH3-N、MCP、乙酸、丙酸、丁酸、总挥发性脂肪酸(TVFA)含量和乙酸/丙酸均无显著差异(P>0.05)。
表4 SRU对滩羊体外瘤胃发酵参数的影响

Table 4 Effects of SRU on in vitro rumen fermentation parameters of Tan sheep

项目
Items
对照组
Control
group
0.5%组
0.5%
group
1.0%组
1.0%
group
1.5%组
1.5%
group
2.0%组
2.0%
group
2.5%组
2.5%
group
SEM P
P-value
pH 6.33 6.36 6.40 6.37 6.34 6.33 0.015 0.713
氨态氮NH3-N/(mg/dL) 9.93 10.00 10.19 10.05 10.15 10.08 0.079 0.989
微生物蛋白
MCP/(mg/mL)
1.06 1.05 0.95 1.03 0.89 0.86 0.019 0.623
乙酸
Acetic acid/(mmol/L)
6.70 7.10 7.12 7.19 6.64 6.55 0.145 0.908
丙酸
Propionic acid/(mmol/L)
3.46 3.25 3.41 3.38 3.21 3.19 0.128 0.976
丁酸
Butyric acid/(mmol/L)
2.68 2.63 2.74 2.69 2.45 2.48 0.054 0.798
乙酸/丙酸
Acetic acid/propionic acid
1.93 2.02 2.11 2.14 2.05 1.97 0.050 0.964
总挥发性脂肪酸
TVFA/(mmol/L)
14.06 14.01 14.17 13.98 13.75 13.58 0.289 0.751

2.4 SRU对滩羊体外瘤胃菌群结构的影响

2.4.1 操作分类单元(OTUs)聚类分析
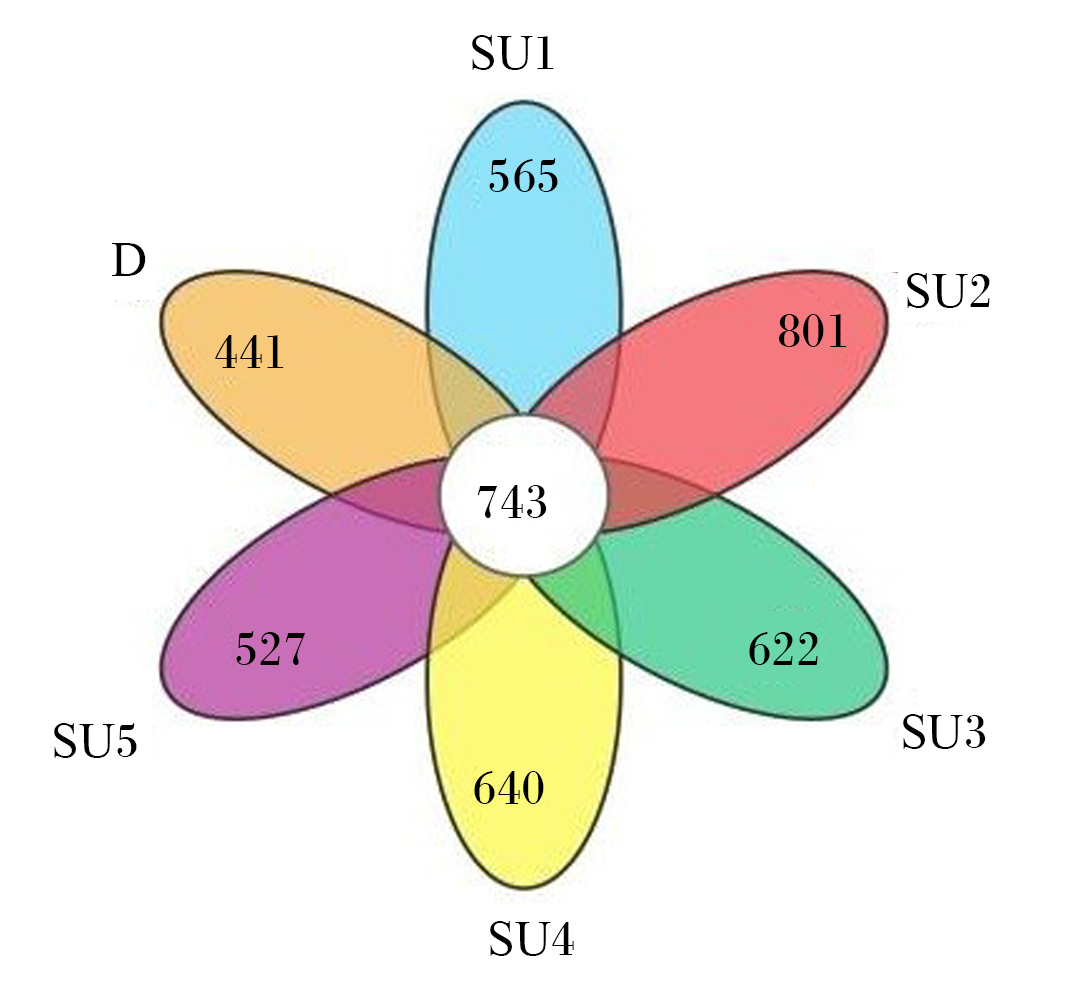
基于OTUs聚类结果,对6组样品的OTUs分布特征进行韦恩图分析(图1)。结果显示,6组共有OTUs数量为743个,对照组、0.5%组、1.0%组、1.5%组、2.0%组和2.5%组特有OTUs数量分别为441、565、801、622、640、527个。与对照组相比,各SRU添加组OTUs总量均上升,说明SRU能够增加瘤胃菌群物种丰富度。
图1 基于OTUs的韦恩图

D:对照组;SU1:0.5%组;SU2:1.0%组;SU3:1.5%组;SU4:2.0%组;SU5:2.5%组。下图同。

Fig.1 Venn diagram based on OTUs

D: control group; SU1: 0.5% group; SU2: 1.0% group; SU3: 1.5% group; SU4: 2.0% group; SU5: 2.5% group. The same as below.

2.4.2 Sobs指数与Shannon指数稀释曲线分析

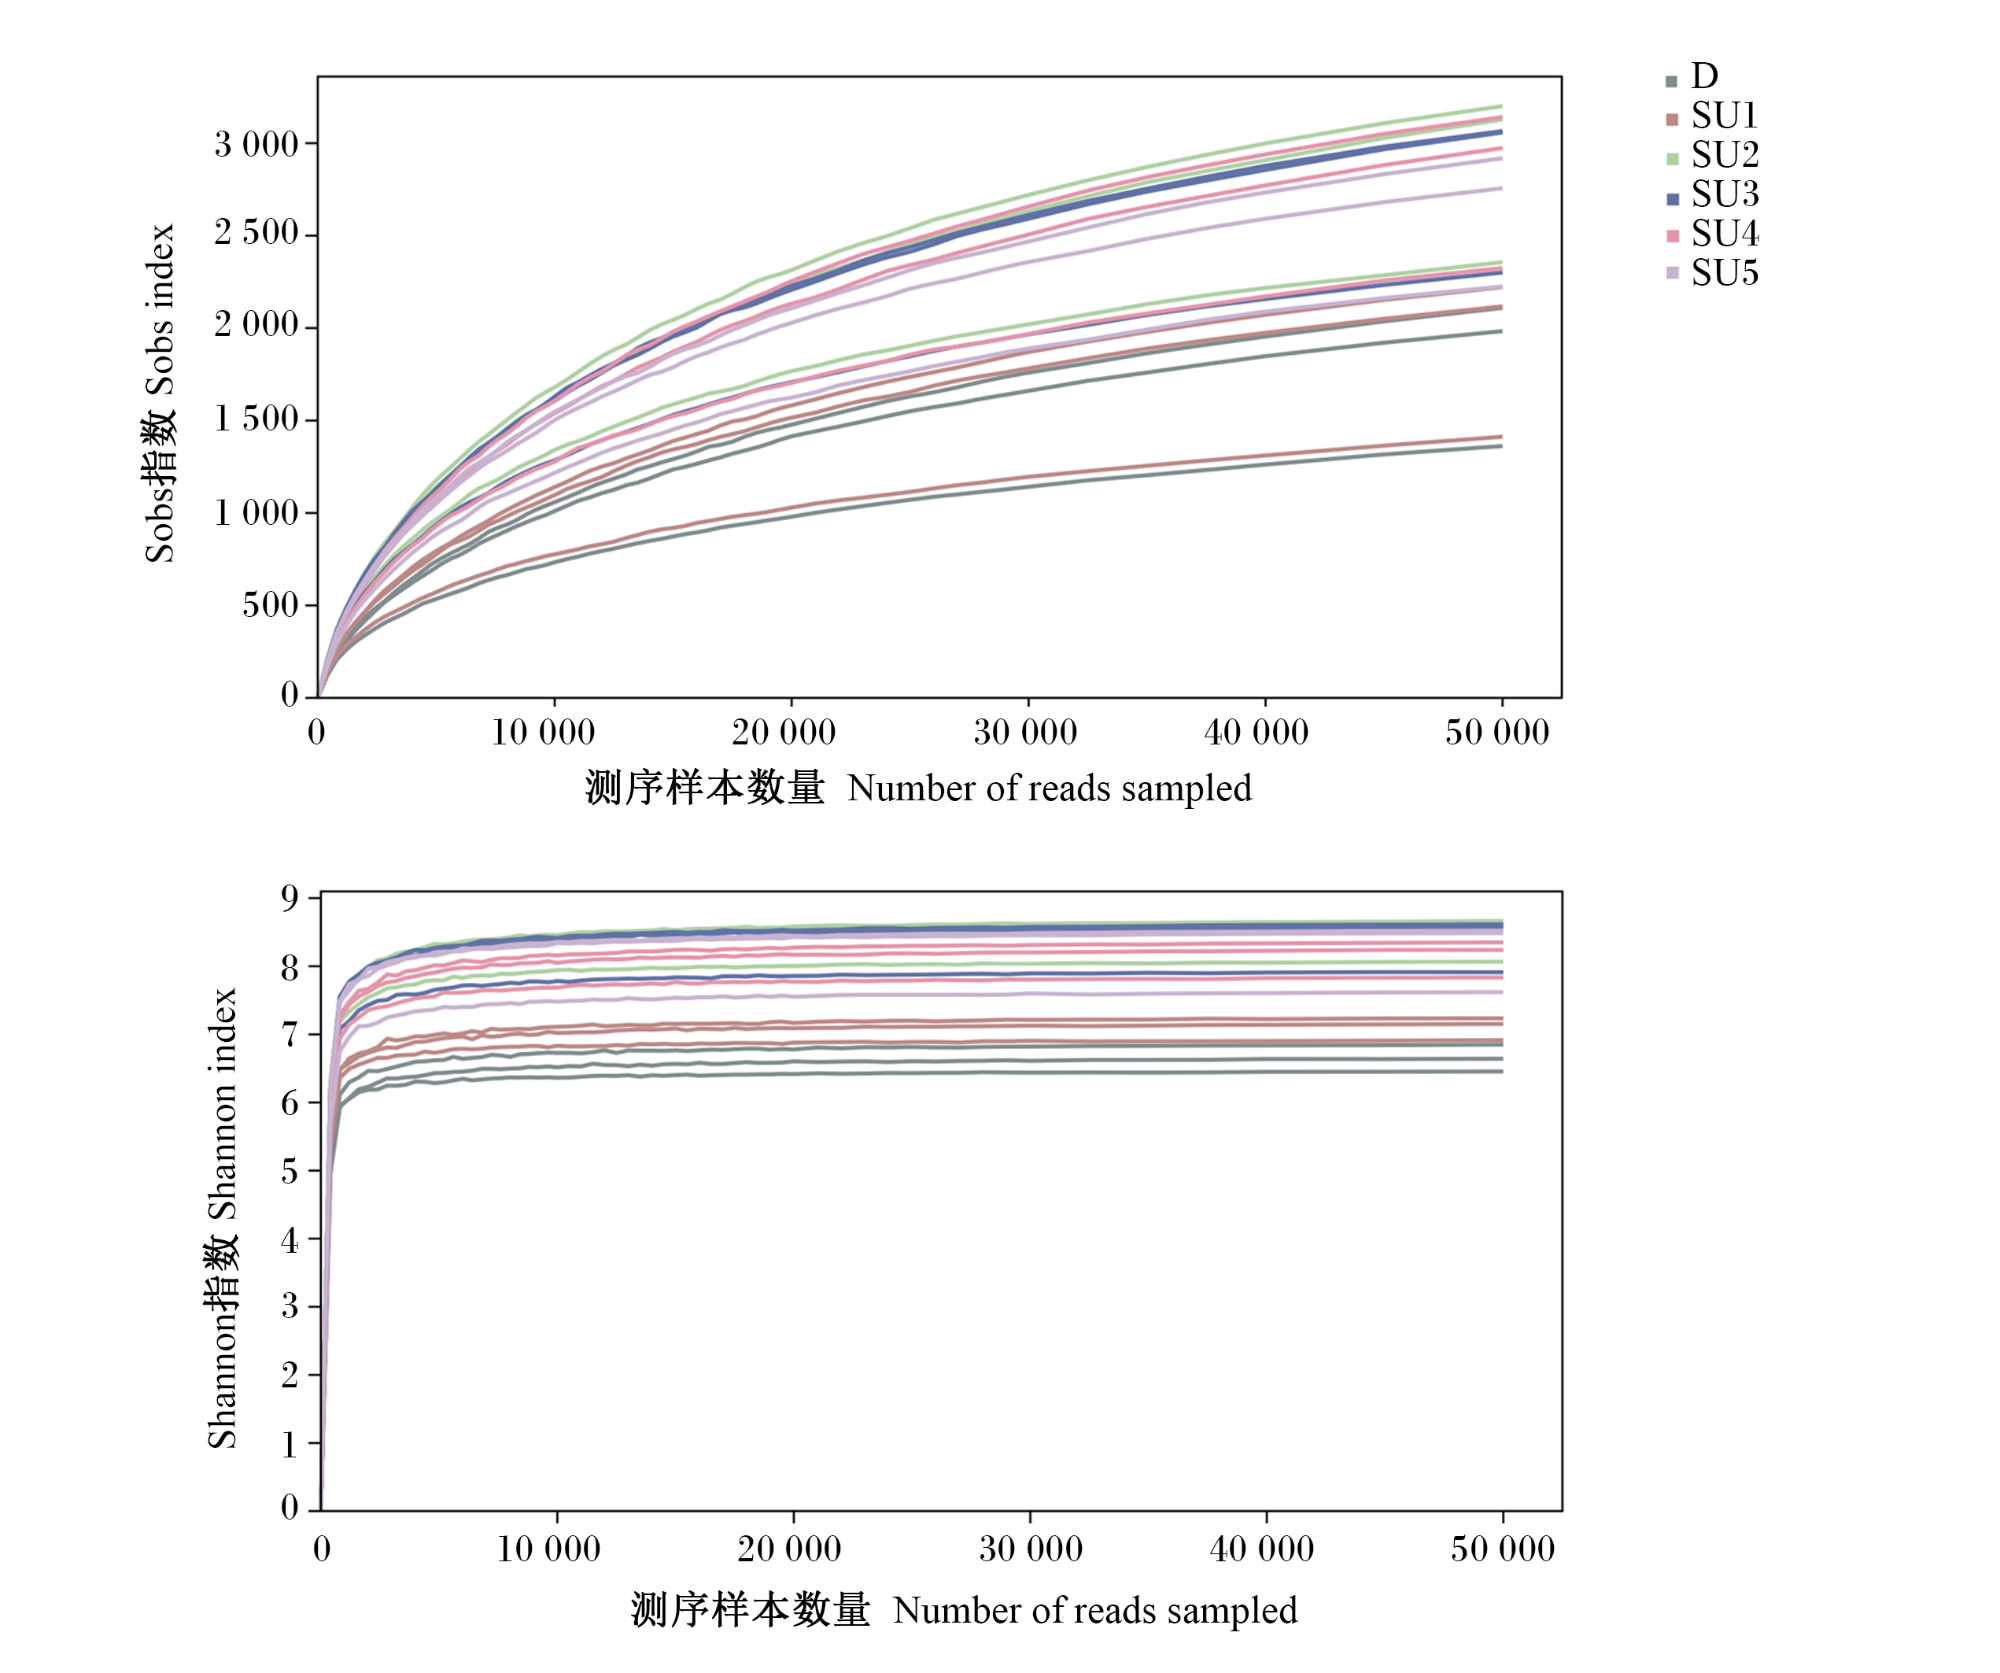
图2可知,随着测序样品数量的增加,Sobs指数与Shannon指数稀释曲线均呈现先快速上升、后逐步趋于稳定的变化趋势,表明当前测序深度已覆盖样品中绝大多数微生物种类,可用于开展菌群多样性分析。
图2 Sobs指数与Shannon指数稀释曲线

Fig.2 Dilution curves of Sobs index and Shannon index

2.4.3 Alpha多样性分析

表5可知,1.0%组、1.5%组、2.0%组和2.5%组Sobs指数、Simpson指数、Shannon指数、Chao指数显著高于对照组(P<0.05),1.0%组、1.5%组和2.0%组ACE指数显著高于对照组(P<0.05),表明饲粮添加1.0%~2.5% SRU可显著提升滩羊体外瘤胃菌群的物种丰富度与多样性。所有组别测序覆盖度均超过0.99,表明本研究测序深度充足,能够完整表征样品内菌群真实组成。
表5 Alpha多样性指数

Table 5 Alpha diversity indexes

项目
Items
对照组
Control
group
0.5%组
0.5%
group
1.0%组
1.0%
group
1.5%组
1.5%
group
2.0%组
2.0%
group
2.5%组
2.5%
group
SEM P
P-value
Sobs指数Sobs index 1 927.00b 2 083.67b 3 155.00a 3 024.00a 3 024.67a 2 884.00a 139.655 0.010
Simpson指数
Simpson index
0.95b 0.96b 0.99a 0.98a 0.98a 0.98a 0.003 <0.001
Shannon指数
Shannon index
6.66b 7.11b 8.47a 8.38a 8.16a 8.22a 0.175 <0.001
Chao指数Chao index 2 305.07b 2 420.80b 3 545.48a 3 425.14a 3 467.24a 3 316.50a 135.622 0.001
ACE指数ACE index 2 366.94b 2 486.29b 3 613.74a 3 502.94a 3 558.99a 3 375.03ab 144.108 0.005
覆盖度Coverage 0.99 0.99 0.99 0.99 0.99 0.99 <0.001 0.144

2.4.4 Beta多样性分析

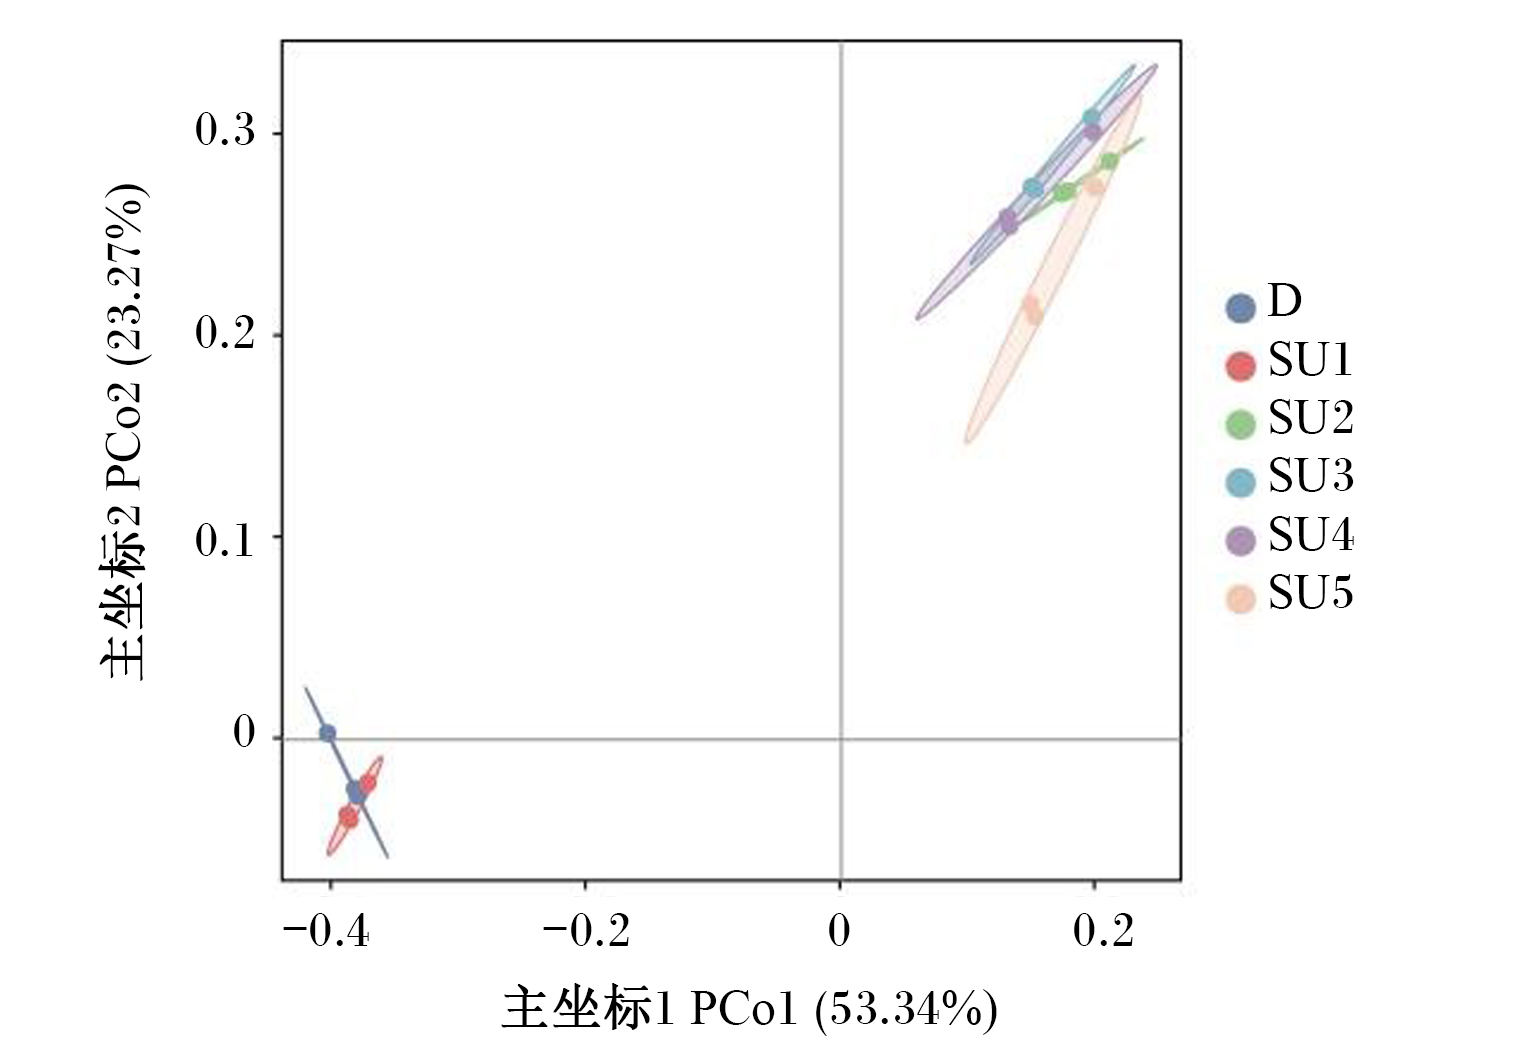
基于Bray-Curtis距离的主坐标分析(PCoA)结果(图3)显示,主坐标1(PCo1)和主坐标2(PCo2)对样品菌群组成差异的贡献率分别为53.34%和23.27%,可较好解释样本间微生物群落差异。各组样品菌群结构呈现明显的分离趋势,0.5%组与对照组样品分布较为接近,而1.0%组、1.5%组、2.0%组和2.5%组样品与其距离相对较远,表明添加1.0%~2.5% SRU可能引起滩羊体外瘤胃菌群结构变化。
图3 主坐标分析

Fig.3 Principal coordinate analysis

2.4.5 瘤胃菌群组成与结构分析

2.4.5.1 门和属水平菌群组成

表6可知,各组相对丰度排名前10的菌门依次为拟杆菌门(Bacteroidota)、厚壁菌门(Firmicutes)、变形菌门(Pseudomonadota)、疣微菌门(Verrucomicrobiota)、髌骨细菌门(Patescibacteria)、放线菌门(Actinomycetota)、螺旋体门(Spirochaetota)、甲烷杆菌门(Methanobacteriota)、绿弯菌门(Chloroflexota)、互养菌门(Synergistota);相对丰度排名前10的菌属依次为木聚糖杆菌属(Xylanibacter)、解琥珀酸菌属(Succiniclasticum)、瘤胃杆菌属(Ruminobacter)、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、克里斯滕森菌科R-7群(Christensenellaceae_R-7_group)、候选糖单胞菌属(Candidatus_Saccharimonas)、琥珀酸弧菌科UCG-002(Succinivibrionaceae_UCG-002)、NK4A214群(NK4A214_group)、琥珀酸弧菌属(Succinivibrio)、产乙酸糖发酵菌属(Saccharofermentans)。与对照组相比,1.0%组、1.5%组、2.0%组和2.5%组拟杆菌门、木聚糖杆菌属和理研菌科RC9肠道群相对丰度显著升高(P<0.05),1.5%组、2.0%组和2.5%组厚壁菌门相对丰度显著降低(P<0.05)。
表6 SRU对滩羊体外瘤胃菌群门和属水平相对丰度的影响

Table 6 Effects of SRU on relative abundance of rumen microbiota of Tan sheep in vitro at phylum and genus levels

项目
Items
对照组
Control
group
0.5%组
0.5%
group
1.0%组
1.0%
group
1.5%组
1.5%
group
2.0%组
2.0%
group
2.5%组
2.5%
group
SEM P
P-value
Phylum level门水平
拟杆菌门Bacteroidota 26.39c 28.56c 42.26ab 44.14a 37.84b 36.63b 1.615 <0.001
厚壁菌门Firmicutes 39.54a 37.42a 27.85ab 24.27b 24.18b 21.87b 1.887 0.004
变形菌门Pseudomonadota 24.52 22.21 22.86 20.18 27.04 22.72 1.363 0.859
疣微菌门Verrucomicrobiota 3.66b 4.70ab 6.15a 4.16b 3.80b 4.46ab 0.243 0.020
髌骨细菌门Patescibacteria 2.32b 2.68b 3.65ab 4.69a 3.33ab 3.28ab 0.229 0.031
放线菌门Actinomycetota 1.38b 0.82c 1.93a 1.67ab 1.39b 1.11bc 0.156 <0.001
螺旋体门Spirochaetota 0.64 0.84 0.99 1.24 0.98 0.66 0.073 0.165
甲烷杆菌门
Methanobacteriota
0.49 0.40 0.53 0.47 0.53 0.75 0.046 0.422
绿弯菌门Chloroflexota 0.12 0.12 0.32 0.31 0.49 0.53 0.054 0.130
互养菌门Synergistota 0.18 0.21 0.18 0.20 0.23 0.25 0.009 0.283
属水平Genus level
木聚糖杆菌属
Xylanibacter
11.71b 11.17b 21.66a 22.13a 20.17a 19.84a 1.118 <0.001
解琥珀酸菌属
Succiniclasticum
9.96 7.27 6.62 8.86 7.97 9.04 0.410 0.199
瘤胃杆菌属
Ruminobacter
8.44 8.09 9.05 8.61 8.82 8.57 0.113 0.199
理研菌科RC9肠道群
Rikenellaceae_RC9_
gut_group
4.97c 5.56bc 9.05ab 9.74a 7.54b 6.81b 0.426 <0.001
克里斯滕森菌科R-7群
Christensenellaceae_
R-7_group
2.21 2.93 2.44 2.46 3.23 3.11 0.574 0.329
候选糖单胞菌属
Candidatus_Saccharimonas
2.63 3.33 3.16 3.53 3.23 2.63 0.228 0.155
琥珀酸弧菌科UCG-002
Succinivibrionaceae_
UCG-002
1.45 1.12 1.46 1.33 1.56 1.30 0.293 0.166
NK4A214群
NK4A214_group
0.70 0.84 0.51 0.61 0.86 0.87 0.113 0.247
琥珀酸弧菌属Succinivibrio 0.52 0.65 0.82 0.88 0.43 0.34 0.072 0.102
产乙酸糖发酵菌属
Saccharofermentans
0.45 0.46 0.43 0.50 0.48 0.48 0.032 0.817

2.4.5.2 瘤胃菌群与体外养分降解率之间的相关性

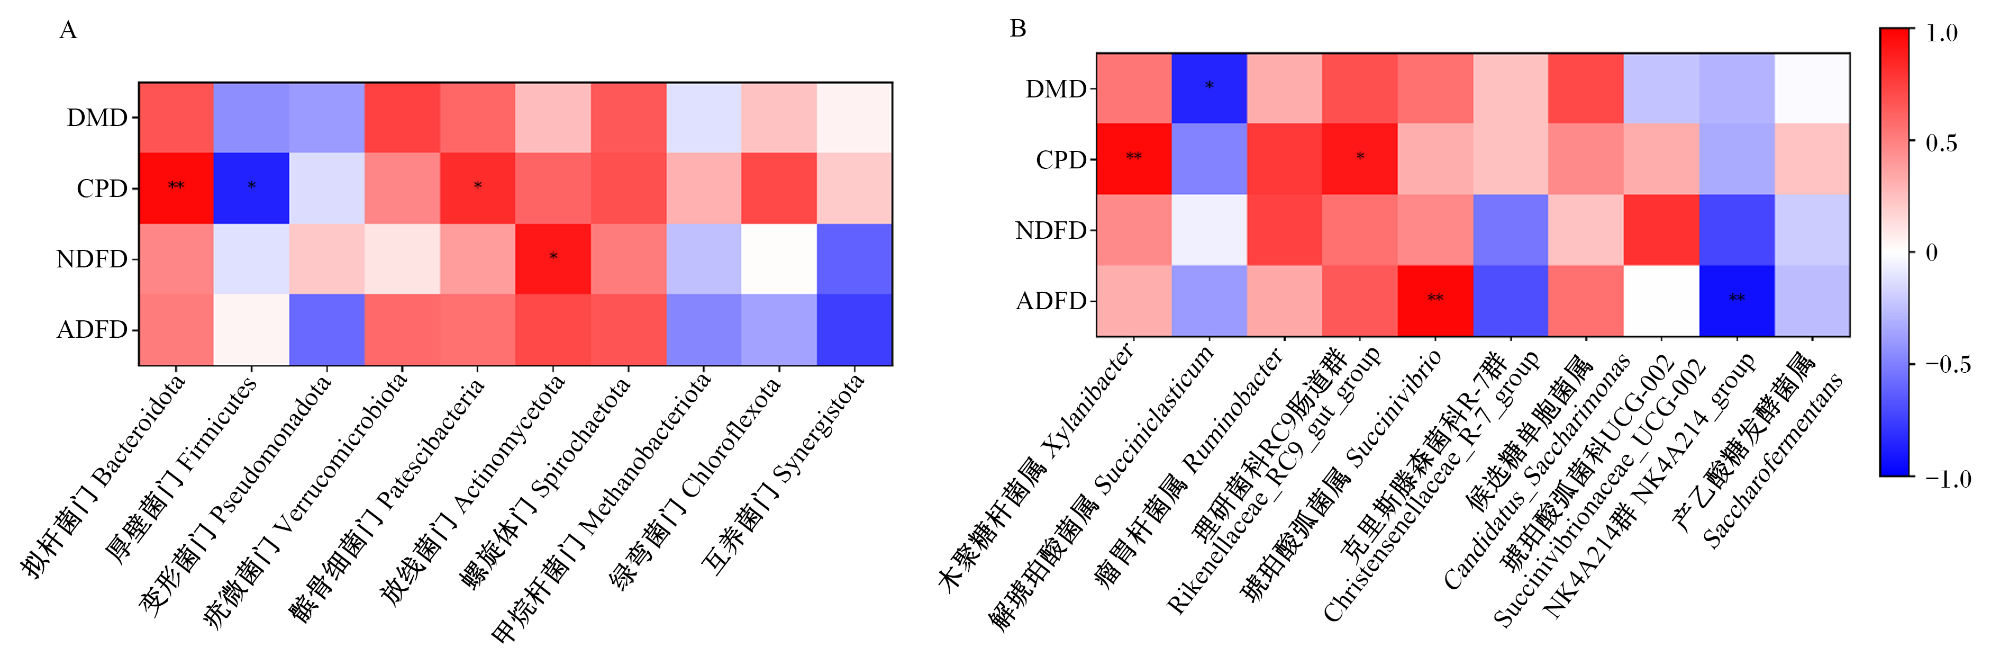
图4可知,在门水平上,拟杆菌门相对丰度与CPD呈极显著正相关(P<0.01),厚壁菌门相对丰度与CPD呈显著负相关(P<0.05),髌骨细菌门相对丰度与CPD呈显著正相关(P<0.05),放线菌门相对丰度与NDFD呈显著正相关(P<0.05);在属水平上,木聚糖杆菌属相对丰度与CPD呈极显著正相关(P<0.01),理研菌科RC9肠道群相对丰度与CPD呈显著正相关(P<0.05),解琥珀酸菌属相对丰度与DMD呈显著负相关(P<0.05),琥珀酸弧菌属相对丰度与ADFD呈极显著正相关(P<0.01),NK4A214群相对丰度与ADFD呈极显著负相关(P<0.01)。
图4 瘤胃菌门(A)和菌属(B)相对丰度与体外养分降解率的相关性分析

DMD:干物质降解率 dry matter degradability;CPD:粗蛋白质降解率 crude protein degradability;NDFD:中性洗涤纤维降解率 neutral detergent fiber degradability;ADFD:酸性洗涤纤维降解率 acid detergent fiber degradability。

红色表示正相关,蓝色表示负相关,颜色深浅表示Spearman相关系数绝对值的大小。*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。Red indicated positive correlation, blue indicated negative correlation, and the depth of the color indicated the absolute value of the Spearman correlation coefficient. * indicated significant correlation (P<0.05), and ** indicated extremely significant correlation (P<0.01).

Fig.4 Correlation analysis of relative abundance of rumen bacterial phyla (A) and genera (B) with in vitro nutrient degradability

2.5 瘤胃菌群功能预测

采用PICRUSt2对滩羊体外瘤胃菌群进行KEGG功能预测。由表7可知,各组瘤胃菌群6类KEGG一级通路(新陈代谢、遗传信息处理、环境信息处理、细胞过程、有机系统、人类疾病)丰度均无显著差异(P>0.05)。由表8可知,KEGG二级通路功能预测结果显示,1.0%组碳水化合物和氨基酸代谢通路丰度显著高于对照组、2.0%组和2.5%组(P<0.05),与0.5%组和1.5%组相比无显著差异(P>0.05);饲粮SRU添加比例对辅因子与维生素代谢、复制与修复、能量代谢、脂质代谢、翻译、核苷酸代谢、信号转导及膜运输通路丰度无显著影响(P>0.05)。
表7 滩羊体外瘤胃菌群KEGG一级通路丰度分析

Table 7 KEGG primary pathway abundance analysis of in vitro rumen microbiota of Tan sheep

KEGG一级通路
KEGG primary
pathways
对照组
Control
group
0.5%组
0.5%
group
1.0%组
1.0%
group
1.5%组
1.5%
group
2.0%组
2.0%
group
2.5%组
2.5%
group
SEM P
P-value
新陈代谢
Metabolism
1 983 343.33 2 188 604.96 2 318 487.51 2 210 466.56 2 172 894.62 2 294 543.61 48 752.616 0.503
遗传信息处理
Genetic information
processing
359 669.17 397 125.22 415 633.17 397 155.99 392 085.49 414 503.32 8 739.788 0.563
细胞过程
Cellular processes
128 258.93 132 652.47 110 661.54 103 195.11 110 467.26 109 429.76 3 316.597 0.056
环境信息处理
Environmental
information
processing
52 035.33 56 771.24 54 354.48 50 369.36 52 625.62 55 348.71 1 395.261 0.866
有机系统
Organismal
systems
11 743.02 12 959.83 12 865.46 12 345.77 12 132.49 12 543.36 243.563 0.796
人类疾病
Human diseases
4 429.20 4 955.64 5 155.38 4 695.04 4 570.04 4 753.75 141.651 0.804
表8 滩羊体外瘤胃菌群KEGG二级通路丰度分析(前10)

Table 8 KEGG secondary pathway abundance analysis of in vitro rumen microbiota of Tan sheep (top 10)

KEGG二级通路
KEGG secondary
pathways
对照组
Control
group
0.5%组
0.5%
group
1.0%组
1.0%
group
1.5%组
1.5%
group
2.0%组
2.0%
group
2.5%组
2.5%
group
SEM P
P-value
辅因子与维生
素代谢
Metabolism of
cofactors and
vitamins
392 539.75 398 650.39 423 236.00 403 193.40 398 614.93 418 604.62 9 227.742 0.570
碳水化合物代谢
Carbohydrate
metabolism
334 582.66c 371 538.46ab 394 764.36a 373 620.03ab 368 864.70b 368 864.70b 8 692.913 0.043
氨基酸代谢
Amino acid
metabolism
331 813.79c 364 751.90ab 376 372.56a 361 423.62ab 354 276.59b 353 753.01b 7 369.234 0.036
复制与修复
Replication
and repair
178 411.53 174 511.92 183 794.27 176 205.44 172 802.54 182 728.19 3 842.443 0.538
能量代谢
Energy
metabolism
139 758.33 154 753.19 165 234.21 157 816.15 154 610.13 162 773.34 3 625.246 0.486
脂质代谢
Lipid metabolism
113 991.94 127 385.71 130 385.59 123 795.62 121 729.72 128 023.65 2 808.357 0.691
翻译
Translation
90 584.01 99 921.53 103 458.58 99 029.70 97 491.10 103 338.31 2 096.797 0.603
核苷酸代谢
Nucleotide
metabolism
52 030.25 57 623.48 61 395.51 58 741.76 57 523.03 60 692.51 1 324.943 0.463
信号转导
Signal
transduction
8 846.32 9 787.45 8 214.35 7 605.84 8 109.03 8 431.37 244.792 0.177
膜运输
Membrane
transport
43 186.12 46 978.95 46 139.17 42 762.33 44 515.65 46 916.56 1 188.808 0.898

3 讨论

3.1 SRU对滩羊体外瘤胃发酵特性的影响

3.1.1 体外产气量和产气参数

产气速率能够反映瘤胃微生物降解饲料的难易程度,其大小受饲料分子结构与营养组成共同影响[14]。研究表明,产气量可直观表征底物可发酵养分含量、发酵程度及瘤胃微生物代谢活性,产气量越高,表明底物可发酵养分越充足、发酵越彻底、瘤胃内微生物活性越强[15]。按照康奈尔净碳水化合物-蛋白质体系,瘤胃降解进程可分为快速降解阶段与慢速降解阶段。其中,快速降解阶段的产气底物以葡萄糖、淀粉等易生物降解的有机物为主;慢速降解阶段的气体则主要来源于纤维素、半纤维素等难降解有机物的代谢转化[16]。李太春等[17]研究发现,在羔羊饲粮中添加1.0%和1.5% SRU,其整个发酵周期累积产气量均高于对照组,且1.0%组累积产气量最高,与本研究结果相似。但安靖[18]研究表明,山羊饲粮中以0.5% SRU替代苜蓿蛋白质最为适宜,可有效提升慢速降解部分产气量、理论最大产气量及产气速率;当替代比例升至1.0%时,其对产气速率的提升效果显著低于0.5%适宜比例组。本试验结果表明,1.0%组、1.5%组、2.0%组和2.5%组体外发酵48 h累积产气量和理论最大产气量显著高于对照组和0.5%组,且产气量随SRU添加比例的升高呈先上升后下降的趋势。上述结果提示,添加适量SRU有利于提高饲粮的总体发酵程度和潜在产气能力。

3.1.2 体外养分降解率

体外养分降解率可反映饲粮养分被消化利用的难易程度及微生物对饲粮的降解效果,其与发酵时间呈正相关,且体外养分降解率越高通常意味着饲粮营养价值越高[19]。王里彦等[20]采用体外瘤胃发酵试验,以SRU替代肉羊饲粮中不同比例的豆粕,结果发现,替代比例为37%时,各养分降解率无显著变化;但当替代比例提高至71%和100%时,DMD和总能降解率显著升高,而CPD、NDFD和ADFD显著降低,表明过高的SRU替代比例可能造成瘤胃可利用氮与发酵能量供应不同步。Alipour等[21]采用RUSITEC人工瘤胃系统,在高精料饲粮中分别以0、0.5%、1.0%和1.75%的SRU替代普通尿素,结果显示,DMD、CPD及有机物降解率未发生显著变化,而NDFD和ADFD随SRU添加比例的升高呈二次变化。上述结果说明,SRU对养分降解的影响具有明显的剂量效应,其作用效果可能取决于氮释放速率与饲粮可发酵能量供应的匹配程度。本试验中,各SRU添加组的DMD和CPD均显著高于对照组,且DMD、CPD及ADFD随SRU添加比例的升高均呈先上升后下降的变化趋势,以1.0%组最高,说明当SRU添加比例达到1.0%后,进一步增加SRU不能带来额外的养分降解优势。因此,在本试验饲粮组成和发酵条件下,1.0%为适宜的SRU添加比例。

3.1.3 体外瘤胃发酵参数

瘤胃内环境稳定是保障营养物质正常消化吸收的必要前提[22]。SRU可通过延缓氮释放速率,促进氮素在瘤胃内被充分利用。研究表明,反刍动物可利用NPN(如SRU)促进瘤胃微生物对氮源的吸收利用,从而提升MCP合成能力[23]。瘤胃pH能够调控微生物增殖,对纤维素分解菌活性尤为关键,当pH低于6.2时纤维消化率会明显降低[24]。反刍动物瘤胃适宜pH通常维持在5.8~6.6[25]。本试验中,各组发酵液pH为6.33~6.40,均处于正常生理范围,说明在本试验设置的SRU添加比例条件下瘤胃内环境未受到破坏。有研究表明,瘤胃中适宜NH3-N含量为5~30 mg/dL,该含量有利于瘤胃微生物的生长繁殖和微生态区系的完善[26]。本试验结果表明,各组发酵液NH3-N含量均处于上述合理区间,说明SRU的添加不会造成瘤胃氨氮蓄积失衡;同时各组间MCP含量无显著差异,说明SRU带来的氮释放模式改变,并未对发酵48 h的MCP含量产生显著影响。但也有研究表明,SRU可调控瘤胃MCP合成过程:Guo等[27]研究发现,饲粮添加0.35% SRU可显著提升安格斯牛体外瘤胃MCP合成效率;Alipour等[21]研究发现,饲粮添加1% SRU相较等量普通尿素能够提高肉牛瘤胃MCP合成量。本试验结果与上述研究存在差异,可能源于SRU添加比例、饲粮组成、动物品种及体内/体外试验条件的不同。VFA作为瘤胃微生物代谢饲粮养分的核心产物,其产量及组成稳定性可反映微生物群落代谢功能的平衡状态[28]。朱志宏等[29]研究发现,荷斯坦奶牛饲粮添加1.0%和1.5% SRU可显著提高瘤胃液TVFA含量,且1.5% SRU组乙酸含量显著高于0.5% SRU组。Xin等[30]以泌乳荷斯坦奶牛饲粮为底物开展体外瘤胃发酵试验,结果表明,添加1.7% SRU后,发酵液TVFA及各VFA含量均未发生显著变化。本试验中,各组发酵液VFA含量及乙酸/丙酸均无显著差异,与Xin等[30]的体外试验结果一致,与朱志宏等[29]的体内试验结果存在差异。这可能是由于体外发酵体系的缓冲效应(人工唾液含缓冲成分)和饲粮精粗比稳定导致碳水化合物发酵底物充足,VFA生成未受氮源供应模式变化影响。

3.2 SRU对滩羊体外瘤胃发酵菌群结构的影响

3.2.1 菌群多样性

饲粮营养组成和结构性碳水化合物含量均会影响瘤胃菌群结构。瘤胃菌群组成复杂多样,与宿主互利共生,可协同降解饲粮并提供机体生长所需能量与营养物质[31]。本试验中,饲粮添加不同水平SRU对瘤胃体外发酵菌群Sobs指数、Simpson指数、Shannon指数、Chao指数均存在显著影响,且PCoA显示各组样品聚类分离明显,表明添加SRU可影响滩羊体外瘤胃菌群结构。结合体外发酵指标综合判断,饲粮添加SRU有助于优化瘤胃微生态,维持发酵功能稳定。

3.2.2 菌群组成与结构分析

本试验结果表明,滩羊体外瘤胃优势菌门为拟杆菌门和厚壁菌门,这与在奶牛[32]、山羊[33]及绵羊[34]上的研究结果基本一致。其中,拟杆菌门相对丰度随SRU添加比例的升高呈先上升后下降的变化趋势,1.0%组和1.5%组显著高于对照组和0.5%组;各SRU添加组厚壁菌门相对丰度则总体低于对照组,其中1.5%组、2.0%组和2.5%组显著低于对照组和0.5%组。上述结果表明,添加不同比例SRU可改变体外瘤胃优势菌门组成。本试验结果表明,在属水平上,木聚糖杆菌属和解琥珀酸菌属为主要优势菌属。木聚糖杆菌属隶属于拟杆菌门普雷沃氏菌科,部分瘤胃来源菌株具有利用半纤维素、果胶等植物多糖的能力[35];解琥珀酸菌属可催化琥珀酸转化为丙酸,参与瘤胃琥珀酸-丙酸代谢途径[36]。本试验中,1.0%组、1.5%组、2.0%组和2.5%组木聚糖杆菌属相对丰度均显著高于对照组和0.5%组,解琥珀酸菌属在各组间无显著差异,说明SRU添加比例达到1.0%后可显著富集木聚糖杆菌属,有利于提升发酵体系对半纤维素、果胶等植物多糖的降解潜力。此外,理研菌科RC9肠道群相对丰度随SRU添加比例的升高呈先上升后下降的变化趋势,以1.5%组最高,并显著高于对照组、0.5%、2.0%和2.5%组。理研菌科RC9肠道群与半纤维素、果胶等复杂植物多糖的降解相关[37],提示SRU添加比例为1.5%时有利于富集碳水化合物降解菌群。综上所述,在本试验条件下,不同SRU添加比例可改变滩羊体外瘤胃菌群组成,其中添加比例为1.0%和1.5%时对部分优势菌群的影响较为明显,但这些变化主要反映菌群相对结构的改变,其代谢功能及体内营养效应仍需进一步验证。

3.2.3 瘤胃菌群与体外养分降解率的相关性分析

本研究相关性分析结果表明,体外养分降解率与瘤胃部分功能性菌群的相对丰度密切相关,其中拟杆菌门相对丰度与CPD呈极显著正相关,而厚壁菌门相对丰度与CPD呈显著负相关,放线菌门相对丰度与NDFD呈显著正相关;属水平上,木聚糖杆菌属和理研菌科RC9肠道群相对丰度与CPD呈显著或极显著正相关,而解琥珀酸菌属和NK4A214群分别与DMD和ADFD呈显著或极显著负相关。SRU的核心特征在于氮释放动力学平缓,可在一定程度上避免氨氮瞬时积累,从而提高碳氮供应同步性[3]。已有研究指出,纤维降解菌对瘤胃内氨氮含量较为敏感,稳定且适宜的NH3-N含量有利于纤维素和半纤维素降解菌群的生长代谢[38]。Yi等[39]研究表明,低蛋白质饲粮中添加SRU能显著提升奶牛纤维消化率、产奶量与饲料利用率,同时降低甲烷排放,其机制与纤维降解菌群富集及瘤胃氢代谢途径调节有关,该结论与本研究纤维降解菌群相对丰度与养分降解率显著相关的结果吻合。据此推测,适宜比例SRU可通过优化氮素供给模式增强纤维降解菌竞争优势,进而提升底物降解潜力。本试验中,各组体外瘤胃发酵参数无显著差异,说明SRU的作用机制可能并非单纯提高氨氮含量,而是通过调节氮释放速率改善碳-氮代谢协同关系,进而优化功能菌群结构和代谢分工。

3.3 滩羊体外瘤胃菌群KEGG代谢通路分析

本研究PICRUSt2功能预测结果显示,1.0%组碳水化合物代谢和氨基酸代谢通路预测丰度显著高于对照组、2.0%组和2.5%组,与0.5%组和1.5%组差异不显著,提示添加适宜比例的SRU可能改变瘤胃微生物群落的相关功能潜力。在碳水化合物代谢方面,1.0%组拟杆菌门(主要降解非结构性碳水化合物)与厚壁菌门(含大量纤维降解菌)的比例适宜,且木聚糖杆菌属等纤维分解菌显著富集,增强了菌群对饲粮NDF、ADF的降解能力,该结果与贾子悦等[40]的研究结果相符,其发现饲喂秸秆发酵饲料可通过富集育成牛瘤胃碳水化合物代谢通路,改善纤维降解效率。在氨基酸代谢方面,1.0%组该通路显著富集与SRU的氮缓释特性密切相关。相较于普通尿素,SRU在瘤胃内持续释放,可提供更稳定的氨氮供应,有利于增强纤维分解菌活性并促进MCP合成[39]。MCP的氨基酸组成稳定、生物效价高,能为滩羊提供生长所需的必需氨基酸。需说明的是,上述菌群代谢功能仅为基于PICRUSt2预测结果的间接推断,后续需结合宏基因组、代谢组学试验进一步验证真实代谢功能。在本试验条件下,添加1.0% SRU表现出较有利的养分降解和功能预测结果,可作为后续动物试验候选剂量,但其豆粕替代效果、氮利用效率与经济效益仍需饲养试验进一步评价。

4 结论

饲粮中添加适宜比例SRU可提升滩羊体外瘤胃发酵产气量和养分降解率,并提高瘤胃菌群多样性和丰富度,优化菌群结构及代谢通路。本试验条件下,饲粮SRU添加比例为1.0%时,滩羊体外瘤胃发酵结果最佳。
[1]
LV G L, FU H, LIAO Y H, et al. Mitigation of odor emissions by replacing soybean meal with unconventional protein ingredients:assessment via in vitro simulated fermentation[J]. Environmental Technology & Innovation, 2026, 41:104749.

[2]
YE Y X, CAI Y F, WANG F, et al. Industrial microbial technologies for feed protein production from non-protein nitrogen[J]. Microorganisms, 2025, 13(4):742.

DOI

[3]
李瑞珍, 马慧敏, 马玲, 等. 缓释尿素在反刍动物生产中的应用效果及其影响因素分析[J]. 中国畜牧杂志, 2025, 61(6):89-95.

LI R Z, MA H M, MA L, et al. Application of slow-release urea in ruminant production and its influencing factors[J]. Chinese Journal of Animal Science, 2025, 61(6):89-95. (in Chinese)

[4]
FAN C, LI H, LI S, et al. Effect of different slow-release urea on the production performance,rumen fermentation,and blood parameter of Angus heifer[J]. Animals, 2024, 14(16):2296.

DOI

[5]
MA Y L, CHEN X, KHAN M Z, et al. Effect of the combining corn steep liquor and urea pre-treatment on biodegradation and hydrolysis of rice straw[J]. Frontiers in Microbiology, 2022, 13:916195.

DOI

[6]
田锦秀, 郑楠, 王加启, 等. 反刍动物包被缓释尿素饲料的研究进展[J]. 动物营养学报, 2021, 33(12):6656-6665.

DOI

TIAN J X, ZHENG N, WANG J Q, et al. Research progress of coated slow-release urea for ruminants[J]. Chinese Journal of Animal Nutrition, 2021, 33(12):6656-6665. (in Chinese)

[7]
MA Y H, CAI G X, CHEN J F, et al. Combined transcriptome and metabolome analysis reveals breed-specific regulatory mechanisms in Dorper and Tan sheep[J]. BMC Genomics, 2024, 25(1):70.

DOI

[8]
MENKE K H, RAAB L, SALEWSKI A, et al. The estimation of the digestibility and metabolizable energy content of ruminant feeding stuffs from the gas production when they are incubated with rumen liquor in vitro[J]. The Journal of Agricultural Science, 1979, 93(1):217-222.

DOI

[9]
沙志行, 苏雪莹, 叶馨媛, 等. 地衣芽孢杆菌和植物乳杆菌复合发酵对蒸汽爆破玉米秸秆营养品质的影响[J]. 动物营养学报, 2025, 37(8):5631-5644.

DOI

SHA Z H, SU X Y, YE X Y, et al. Effects of compound fermentation of Bacillus licheniformis and Lactobacillus plantarum on nutritional quality of steam-exploded corn straw[J]. Chinese Journal of Animal Nutrition, 2025, 37(8):5631-5644. (in Chinese)

[10]
ØRSKOV E R, MCDONALD I. The estimation of protein degradability in the rumen from incubation measurements weighted according to rate of passage[J]. The Journal of Agricultural Science, 1979, 92(2):499-503.

DOI

[11]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 畜牧与饲料科学, 2010, 31(6/7):37.

FENG Z C, GAO M. Improvement of the method for measuring ammonia nitrogen content in rumen fluid by colorimetry[J]. Animal Husbandry and Feed Science, 2010, 31(6/7):37. (in Chinese)

[12]
MAKKAR H P, SHARMA O P, DAWRA R K, et al. Simple determination of microbial protein in rumen liquor[J]. Journal of Dairy Science, 1982, 65(11):2170-2173.

PMID

[13]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[14]
周治宇, 王金泽, 程阳, 等. 肉牛常用精饲料的饲用价值评定及有效降解率预测模型建立[J]. 动物营养学报, 2025, 37(6):4141-4157.

DOI

ZHOU Z Y, WANG J Z, CHENG Y, et al. Evaluation on feeding value and establishing prediction model of effective degradation rate of common concentrate feeds for beef cattle[J]. Chinese Journal of Animal Nutrition, 2025, 37(6):4141-4157. (in Chinese)

DOI

[15]
简仕燕. 红曲米酒糟替代山羊日粮豆粕可行性研究[D]. 硕士学位论文. 贵阳: 贵州大学, 2021.

JIAN S Y.The feasibility evaluation on red yeast rice distiller’s grains in substitution of dietary soybean meal in goats[D].Master’s Thesis. Guiyang: Guizhou University, 2021. (in Chinese)

[16]
SNIFFEN C J, O’CONNOR J D, VAN SOEST P J, et al. A net carbohydrate and protein system for evaluating cattle diets:Ⅱ.Carbohydrate and protein fractionation[J]. Journal of Animal Science, 1992, 70(11):3562-3577.

DOI

[17]
李太春, 宋杰, 单新雨, 等. 羔羊日粮中添加缓释尿素对体外发酵参数及主要营养物质消化率的影响[J]. 中国畜牧杂志, 2024, 60(7):236-241.

LI T C, SONG J, SHAN X Y, et al. Effects of adding slow-release urea in lamb diets on in vitro fermentation parameters and digestibility of major nutrients[J]. Chinese Journal of Animal Science, 2024, 60(7):236-241. (in Chinese)

[18]
安靖. 缓释尿素替代山羊日粮苜蓿蛋白的可行性评价[D]. 硕士学位论文. 贵阳: 贵州大学, 2023.

AN J. Feasibility evaluation on slow-release urea in substitution of dietary alfalfa protein in goat[D]. Master’s Thesis. Guiyang: Guizhou University, 2021. (in Chinese)

[19]
沙志行, 洪海洋, 姜明明, 等. 尿素和玉米浆复合预处理玉米秸秆体外降解率、纤维素酶活性及瘤胃微生物附着的研究[J]. 动物营养学报, 2025, 37(12):8681-8696.

DOI

SHA Z H, HONG H Y, JIANG M M, et al. Study on in vitro degradability,cellulase activities and rumen microbial attachment of corn stover co-pretreated with urea and corn steep liquor[J]. Chinese Journal of Animal Nutrition, 2025, 37(12):8681-8696. (in Chinese)

[20]
王里彦, 纪守坤, 李金辉, 等. 缓释尿素替代不同比例豆粕对瘤胃体外发酵参数的影响[J]. 中国畜牧杂志, 2022, 58(10):300-303.

WANG L Y, JI S K, LI J H, et al. Effects of slow-release urea replacing different proportions of soybean meal on in vitro ruminal fermentation parameters[J]. Chinese Journal of Animal Science, 2022, 58(10):300-303. (in Chinese)

[21]
ALIPOUR D, SALEEM A M, SANDERSON H, et al. Effect of combinations of feed-grade urea and slow-release urea in a finishing beef diet on fermentation in an artificial rumen system[J]. Translational Animal Science, 2020, 4(2):839-847.

DOI

[22]
WANG K X, LEI Q, MA H M, et al. Phloretin protects bovine rumen epithelial cells from LPS-induced injury[J]. Toxins, 2022, 14(5):337.

DOI

[23]
NEWBOLD C J, RAMOS-MORALES E. Review:ruminal microbiome and microbial metabolome:effects of diet and ruminant host[J]. Animal, 2020, 14(Suppl.1):s78-s86.

[24]
GRANT R H, MERTENS D R. Influence of buffer pH and raw corn starch addition on in vitro fiber digestion kinetics[J]. Journal of Dairy Science, 1992, 75(10):2762-2768.

DOI

[25]
DENG J, LIU Y J, WEI W T, et al. Single-cell transcriptome and metagenome profiling reveals the genetic basis of rumen functions and convergent developmental patterns in ruminants[J]. Genome Research, 2023, 33(10):1690-1707.

DOI

[26]
冯仰廉. 反刍动物营养学[M]. 北京: 科学出版社,2004:136-138.

FENG Y L. Ruminator nutrition[M]. Beijing: Science Press,2004:136-138. (in Chinese)

[27]
GUO Y M, XIAO L, JIN L, et al. Effect of commercial slow-release urea product on in vitro rumen fermentation and ruminal microbial community using RUSITEC technique[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):56.

DOI

[28]
申静. 日粮瘤胃可降解淀粉调控奶山羊瘤胃与肝脏代谢的机制[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2020.

SHEN J. Effects of dietary rumen degradable starch on rumen and liver metabolism in dairy goats[D]. Ph.D.Thesis. Yangling: Northwest A&F University, 2020. (in Chinese)

[29]
朱志宏. 缓释尿素的制备及替代日粮中部分豆粕对奶牛生产性能、血液代谢指标和瘤胃发酵参数的影响[D]. 硕士学位论文. 银川: 宁夏大学, 2025.

ZHU Z H. Preparation of slow-release urea and the impact of partial soybean meal replacement in feeds on the performance,blood metabolism indicators,and rumen fermentation parameters of dairy cows[D]. Master’s Thesis. Yinchuan: Ningxia University, 2025. (in Chinese)

[30]
XIN H S, SCHAEFER D M, LIU Q P, et al. Effects of polyurethane coated urea supplement on in vitro ruminal fermentation,ammonia release dynamics and lactating performance of Holstein dairy cows fed a steam-flaked corn-based diet[J]. Asian-Australasian Journal of Animal Sciences, 2010, 23(4):491-500.

DOI

[31]
王振阳, 胡杨恺, 李泽伦, 等. 芦竹叶替代苜蓿干草对奶牛瘤胃体外发酵特性和菌群结构的影响[J]. 动物营养学报, 2024, 36(11):7196-7211.

DOI

WANG Z Y, HU Y K, LI Z L, et al. Effects of giant reed leaves replacing alfalfa hay on rumen fermentation characteristics and microbiota structure of dairy cows in vitro[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7196-7211. (in Chinese)

[32]
JEWELL K A, MCCORMICK C A, ODT C L, et al. Ruminal bacterial community composition in dairy cows is dynamic over the course of two lactations and correlates with feed efficiency[J]. Applied and Environment Microbiology, 2015, 81(14):4697-4710.

DOI

[33]
BELANCHE A, DE LA FUENTE G, NEWBOLD C J. Effect of progressive inoculation of fauna-free sheep with holotrich protozoa and total-fauna on rumen fermentation,microbial diversity and methane emissions[J]. FEMS Microbiology Ecology, 2015, 91(3):26.

[34]
WETZELS S U, MANN E, METZLER-ZEBELI B U, et al. Pyrosequencing reveals shifts in the bacterial epimural community relative to dietary concentrate amount in goats[J]. Journal of Dairy Science, 2015, 98(8):5572-5587.

DOI PMID

[35]
MUROVEC U, ACCETTO T. Transcriptomic analysis of polysaccharide utilization loci reveals substrate preferences in ruminal generalists Segatella bryantii TF1-3 and Xylanibacter ruminicola KHP1[J]. BMC Genomics, 2024, 25(1):495.

DOI

[36]
GYLSWYK N O V. Succiniclasticum ruminis gen.nov.sp.nov.,a ruminal bacterium converting succinate to propionate as the sole energy-yielding mechanism[J]. International Journal of Systematic Bacteriology, 1995, 45(2):297.

DOI

[37]
赵媛媛, 马青, 周路松, 等. 百里香对滩羊生长性能、屠宰性能及瘤胃菌群结构的影响[J]. 动物营养学报, 2025, 37(2):1127-1140.

DOI

ZHAO Y Y, MA Q, ZHOU L S, et al. Effects of thyme on growth performance,slaughter performance and rumen microflora structure of Tan sheep[J]. Chinese Journal of Animal Nutrition, 2025, 37(2):1127-1140. (in Chinese)

[38]
王荣健, 张晓彤, 叶雨彤, 等. 尿素-碳酸氢钠处理对大蒜秸秆与小麦秸秆半干混合青贮品质及体外瘤胃发酵特性的影响[J]. 饲料研究, 2025, 48(22):116-121.

WANG R J, ZHANG X T, YE Y T, et al. Effects of urea-sodium bicarbonate treatment on quality and in vitro ruminal fermentation characteristics of semi-dry mixed silage of garlic straw and wheat straw[J]. Feed Research, 2025, 48(22):116-121. (in Chinese)

[39]
YI S Y, ZHANG X M, ZHANG J J, et al. Supplementation of slow-release urea improves milk performance and reduces methane emissions intensity by regulating ruminal fibrolytic bacteria and hydrogen disposal in dairy cows[J]. Journal of Agriculture and Food Research, 2026, 25:102584.

DOI

[40]
贾子悦, 钟丽媛, 薛茗元, 等. 饲喂含秸秆发酵饲料对育成牛瘤胃微生物组成和功能的影响[J]. 浙江大学学报(农业与生命科学版), 2024, 50(4):517-530.

JIA Z Y, ZHONG L Y, XUE M Y, et al. Effect of feeding straw-containing fermented feed on the composition and function of the rumen microbiota in heifers[J]. Journal of Zhejiang University(Agriculture & Life Sciences), 2024, 50(4):517-530. (in Chinese)

Outlines

/